Teks Konple Dokiman an
Teks ki soti nan dokiman orijinal la pou endeksasyon.
NFIS/C1253 (Fr)
FAO
Circulaire sur les
pêches et l’aquaculture
ISSN 2070-7045
LES PRINCIPALES ESPÈCES MARINES D'HAÏTI
LEURS GRANDS TRAITS ÉCOLOGIQUES, BIOLOGIQUES ET LEURS
INTÉRÊTS POUR LA PÊCHE ARTISANALE
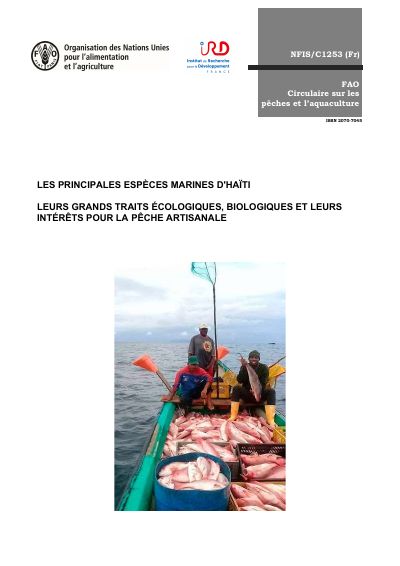
�Photographie de couverture: Retour de pêche au large de Belle-Anse, département du Sud-Est, Haïti, 2019. ©Bill Moïse;
©Samson Jean Marie.
�LES PRINCIPALES ESPÈCES MARINES D'HAÏTI
LEURS GRANDS TRAITS ÉCOLOGIQUES, BIOLOGIQUES ET LEURS
INTÉRÊTS POUR LA PÊCHE ARTISANALE
par
Philippe VENDEVILLE
Institut de recherche pour le développement (IRD), Marseille
Wilson CELESTIN
Université d’État d’Haïti, Port-au-Prince
Henri VALLÈS
Université des West Indies, Bridgetown
et
Samson JEAN MARIE
Université de Bretagne Occidentale, Plouzané
Publié par
l’Organisation des Nations Unies pour l’alimentation et l’agriculture
et
l’Institut de recherche pour le développement
Rome, 2022
�Citer comme suit:
Vendeville, P., Celestin, W., Vallès, H. et Jean Marie, S. 2022. Les principales espèces marines d'Haïti - Leurs grands traits
écologiques, biologiques et leurs intérêts pour la pêche artisanale. FAO, Circulaire sur les pêches et l’aquaculture no 1253. Rome,
FAO and IRD. https://doi.org/10.4060/cc0012fr
Les appellations employées dans ce produit d’information et la présentation des données qui y figurent n’impliquent de la part de
l’Organisation des Nations Unies pour l’alimentation et l’agriculture (FAO) ou l’Institut de recherche pour le développement (IRD) aucune
prise de position quant au statut juridique ou au stade de développement des pays, territoires, villes ou zones ou de leurs autorités, ni
quant au tracé de leurs frontières ou limites. Le fait qu’une société ou qu’un produit manufacturé, breveté ou non, soit mentionné ne
signifie pas que la FAO ou l’IRD approuvent ou recommandent ladite société ou ledit produit de préférence à d’autres sociétés ou produits
analogues qui ne sont pas cités.
Les opinions exprimées dans ce produit d’information sont celles du/des auteur(s) et ne reflètent pas nécessairement les vues ou les
politiques de la FAO ou de l’IRD.
ISBN 978-92-5-136174-0 [FAO]
© FAO et IRD, 2022
Certains droits réservés. Cette œuvre est mise à la disposition du public selon les termes de la Licence Creative Commons AttributionPas d’Utilisation Commerciale-Partage dans les Mêmes Conditions 3.0 Organisations Intergouvernementales (CC BY-NC-SA 3.0 IGO;
https://creativecommons.org/licenses/by-nc-sa/3.0/igo/legalcode.fr).
Selon les termes de cette licence, cette œuvre peut être copiée, diffusée et adaptée à des fins non commerciales, sous réserve que la
source soit mentionnée. Lorsque l’œuvre est utilisée, rien ne doit laisser entendre que la FAO cautionne tels ou tels organisation, produit
ou service. L’utilisation du logo de la FAO n’est pas autorisée. Si l’œuvre est adaptée, le produit de cette adaptation doit être diffusé sous
la même licence Creative Commons ou sous une licence équivalente. Si l’œuvre est traduite, la traduction doit obligatoirement être
accompagnée de la mention de la source ainsi que de la clause de non-responsabilité suivante: «La traduction n’a pas été réalisée par
l’Organisation des Nations Unies pour l’alimentation et l’agriculture (FAO). La FAO n’est pas responsable du contenu ni de l’exactitude
de la traduction. L’édition originale [langue] est celle qui fait foi.»
Tout litige relatif à la présente licence ne pouvant être résolu à l'amiable sera réglé par voie de médiation et d'arbitrage tel que décrit à
l'Article 8 de la licence, sauf indication contraire contenue dans le présent document. Les règles de médiation applicables seront celles
de l'Organisation mondiale de la propriété intellectuelle (http://www.wipo.int/amc/fr/mediation/rules) et tout arbitrage sera mené
conformément au Règlement d'arbitrage de la Commission des Nations Unies pour le droit commercial international (CNUDCI).
Matériel attribué à des tiers. Il incombe aux utilisateurs souhaitant réutiliser des informations ou autres éléments contenus dans cette
œuvre qui y sont attribués à un tiers, tels que des tableaux, des figures ou des images, de déterminer si une autorisation est requise pour
leur réutilisation et d’obtenir le cas échéant la permission de l’ayant-droit. Toute action qui serait engagée à la suite d’une utilisation non
autorisée d’un élément de l’œuvre sur lequel une tierce partie détient des droits ne pourrait l’être qu’à l’encontre de l’utilisateur.
Ventes, droits et licences. Les produits d’information de la FAO sont disponibles sur le site web de la FAO (www.fao.org/publications)
et peuvent être obtenus sur demande adressée par courriel à: publications-sales@fao.org. Les demandes visant un usage commercial
doivent être soumises à: www.fao.org/contact-us/licence-request. Les questions relatives aux droits et aux licences doivent être adressées
à: copyright@fao.org.
�iii
PRÉPARATION DE CE DOCUMENT
Entre 2013 et 2017 le Ministère de l'agriculture, des ressources naturelles et du développement rural
(MARNDR) de la République d'Haïti, engage de profondes réformes dans le but d'améliorer la productivité du
secteur agricole, de la pêche et de l'aquaculture pour répondre à la demande alimentaire nationale et améliorer
l'autosuffisance alimentaire. Ce programme prévoit un plan de développement de la pêche et dans cette
perspective le MARNDR a sollicité l'Institut de recherche pour le développement (IRD) pour réaliser une
expertise sur le secteur de la pêche en Haïti. En réponse à cette demande, l'IRD a proposé de réaliser une
Expertise scientifique collective (ESCI) sur la pêche artisanale d'Haïti1.
Pluridisciplinaire, de grande portée thématique, l’expertise collective fournit des évaluations détaillées de l’état
des connaissances scientifiques pour faire face aux enjeux de développement durable des pays des «Suds».
Elle permet de produire une vision consolidée des enjeux et d’aboutir à des recommandations précises fondées
sur les dernières évidences scientifiques. Elle est réalisée dans le pays en question, en étroite collaboration
avec l’autorité commanditaire et les parties prenantes concernées.
L'expertise collective sur la pêche artisanale financée par le MARNDR, en partenariat avec la Banque
interaméricaine de développement (BID) a pu commencer en 2018. Elle a mobilisé un comité pluridisciplinaire
d’experts scientifiques et professionnels, haïtiens et français, composé d’agronomes, halieutes,
anthropologues, économistes, formateurs, géographes, gestionnaires de l’environnement, etc.
Le document présenté répond plus particulièrement aux questions suivantes: Quelles sont les espèces d'intérêt
pour la pêche présentes en Haïti? Quelles en sont les caractéristiques biologiques, écologiques, leur capacité
à se renouveler, leur résilience face à l'intensité d'exploitation et aux changements environnementaux d'origine
climatique ou anthropiques? Il a été réalisé dans le cadre de l'expertise «Pêche artisanale en Haïti» dont la
synthèse est publiée dans la collection Expertise Scientifique Collective de l'IRD.
1 Pour en savoir plus sur les ESCI: https://www.ird.fr/expertise#60cc843986bc9
�iv
RÉSUMÉ
Un inventaire des macroorganismes marins présents dans la zone économique exclusive (ZEE) d'Haïti et
présentant un intérêt pour la pêche a été établi en privilégiant les espèces d'intérêt commercial. Il compte 1 935
espèces animales réparties en 15 groupes phylogénétiques et 246 espèces de macro-algues. Les espèces ont été
rattachées à 10 peuplements selon leur habitat et leur comportement. Trente trois pour cent des 793 espèces de
poissons appartiennent au peuplement de récifs coralliens. Le phylum des gastéropodes compte 447 espèces.
Les principales informations sur la biologie des espèces ont été présentées (habitat, croissance, reproduction,
etc.), leur intérêt commercial, les moyens de capture utilisés. Les particularités des poissons de récifs coralliens
ont été présentées et discutées (hermaphrodisme séquentiel; agrégations de ponte; toxicité de type ciguatera,
contribution au commerce de poissons d'ornement). Les habitats essentiels au renouvellement des ressources
halieutiques ont été inventoriés en présentant la démarche par zones fonctionnelles d'intérêt halieutique qui
doit s'intégrer à la gestion des ressources halieutiques. Les distributions bathymétriques et spatiales des espèces
présentant le plus grand intérêt commercial et qui font l'objet de déclarations de captures aux instances
régionales de gestion de la pêche, sont présentées. La biodiversité des eaux marines et saumâtres côtières
d'Haïti a été évaluée à 2 584 espèces et 26 genres dont 2 305 et 24 genres pour la macrofaune. L'inventaire des
espèces les plus menacées au niveau mondial et présentes en Haïti a été dressé; l'implication d'Haïti dans la
préservation de la biodiversité a été succinctement présentée.
�v
TABLE DES MATIÈRES
Préparation de ce document.............................................................................................................................. iii
Résumé ............................................................................................................................................................. iv
Remerciements ............................................................................................................................................... xiv
Abréviations, sigles et acronymes ................................................................................................................... xv
Introduction ....................................................................................................................................................... 1
1 Contexte géographique ................................................................................................................................. 2
1.1
Topographie et bathymétrie ............................................................................................................................ 2
1.2
Océanographie, circulation ............................................................................................................................. 3
1.3
1.4
La dissémination des espèces.......................................................................................................................... 4
Géographie politique et juridique ................................................................................................................... 4
2 Méthodologie................................................................................................................................................ 5
2.1
Zone d'étude et zone d'inventaire.................................................................................................................... 5
2.2
2.3
Paramètres et informations répertoriées ......................................................................................................... 6
Biotopes et peuplements ............................................................................................................................... 12
2.4
La distribution spatiale .................................................................................................................................. 12
3 L'inventaire des espèces ............................................................................................................................. 13
3.1
3.2
L'inventaire des espèces dans la littérature sur Haïti et dans les bases de données internationales ......... 13
Le règne animal: distribution par biotopes, comportements et grands groupes faunistiques ................... 17
3.3
Les espèces végétales – les algues ................................................................................................................ 83
4 Focus sur les espèces reconnues d'intérêt pour la pêche, leurs distributions bathymétriques et spatiales .. 88
4.1
4.2
Les déclarations de captures ......................................................................................................................... 88
Les techniques de pêche utilisées ................................................................................................................. 89
4.3
Distributions bathymétriques et spatiales des principales espèces d'intérêt halieutique ........................... 92
5 Spécificités des espèces récifales ............................................................................................................. 117
5.1
5.2
La reproduction ............................................................................................................................................117
Les risques de ciguatera ..............................................................................................................................123
5.3
Le commerce des espèces marines ornementales......................................................................................128
6 Les habitats essentiels des ressources marines ......................................................................................... 130
6.1
Les zones fonctionnelles d'intérêt halieutique ...........................................................................................130
6.2
Les zones fonctionnelles halieutiques d'intérêt majeur en Haïti...........................................................137
7 La préservation de la biodiversité et la protection des espèces menacées ................................................ 146
7.1
La biodiversité marine .................................................................................................................................146
7.2
7.3
La protection des espèces menacées...........................................................................................................146
La Convention sur la diversité biologique (CDB) .....................................................................................149
Discussion...................................................................................................................................................... 157
Conclusion et recommandations .................................................................................................................... 160
Bibliographie ................................................................................................................................................. 162
ANNEXE I .................................................................................................................................................... 172
ANNEXE II ................................................................................................................................................... 220
ANNEXE III .................................................................................................................................................. 221
ANNEXE IV ................................................................................................................................................. 222
�vi
Figures
1.
2.
3.
4.
5.
6.
7.
8.
9.
10.
11.
12.
13.
14.
15.
16.
17.
18.
19.
20.
21.
22.
23.
24.
25.
26.
27.
28.
Délimitation de la zone 31 de la FAO suivie par la COPACO ...........................................................2
Topographie et bathymétrie de la région de l'Atlantique Centre Ouest ..............................................2
Circulation des eaux dans la mer des Caraïbes et le golfe du Mexique ..............................................3
Géographie politique et juridique de la région des Caraïbes et du golfe du Mexique. Répartition
des ZEE ...............................................................................................................................................5
Situation géographique d'Haïti. Bathymétrie; limites des ZEE des pays riverains (en noir),
limites extérieures des eaux territoriales (en bleu) et de la zone contigüe (en rouge) d'Haïti. Ce
rectangle constitue la zone d'étude. .....................................................................................................6
Principales subdivisions de l'habitat marin .........................................................................................7
Croissance théorique d'une crevette (P. subtilis), d'une sardine (S. brasiliensis), d'un vivaneau
(L. synagris) d'un mérou (E. itajara) et d'un thon (T. albacares). L'âge et la taille de maturité
sont indiqués (pointillés). ....................................................................................................................8
Relations entre paramètres démographiques et écologiques de poissons téléostéens de
l'inventaire et leur vulnérabilité: (a) la taille maximale, (b) la taille à la première maturité, (c)
le taux de croissance individuelle en longueur, (d) la longévité, (e) le taux intrinsèque de
croissance de la population, (f) Le niveau trophique. .......................................................................11
Nombres d'espèces inventoriées par grands groupes faunistiques ....................................................15
Nombre d'espèces inventoriées dans OBIS par grands groupes faunistiques ...................................15
Nombre d'espèces d'algues d'intérêt halieutique inventoriées en Haïti .............................................16
Nombre d'espèces de poissons par peuplement des familles de poissons comptant le plus
d'espèces recensées en Haïti. .............................................................................................................18
Cartographie sur l'ensemble de la zone d'étude des occurrences de 140 des 147 espèces du
peuplement de poissons bentho-démersaux côtiers de la zone d'inventaire. .....................................22
Cartographie sur l'ensemble de la zone d'étude des occurrences de 32 des 34 espèces du
peuplement de poissons pélagiques côtiers de la zone d'inventaire.. ................................................24
Cartographie sur l'ensemble de la zone d'étude des occurrences de 255 des 260 espèces du
peuplement de poissons des récifs coralliens de la zone d'inventaire.. .............................................31
Cartographie sur l'ensemble de la zone d'étude des occurrences des 39 espèces du peuplement
de poissons des herbiers, champs d'algues et fonds à éponges de la zone d'inventaire.. ...................34
Cartographie sur l'ensemble de la zone d'étude des occurrences de 117 espèces des 119 du
peuplement de poissons démersaux de bas de plateau et de haut de talus de la zone d'inventaire. ...... 41
Cartographie sur l'ensemble de la zone d'étude des occurrences des 18 espèces du peuplement
de poissons benthiques de bas de plateau et de haut de talus de la zone d'inventaire. ......................42
Cartographie sur l'ensemble de la zone d'étude des occurrences de 63 espèces des 65 du
peuplement de poissons pélagiques néritiques de la zone d'inventaire. ............................................47
Déplacements de deux thonidés dans l'Atlantique. ...........................................................................50
Cartographie sur l'ensemble de la zone d'étude des occurrences des 32 espèces du peuplement
de poissons épipélagiques océaniques de la zone d'inventaire. .........................................................50
Cartographie sur l'ensemble de la zone d'étude des occurrences de 48 espèces des 49 du
peuplement de poissons mésopélagiques océaniques de la zone d'inventaire.. .................................51
Cartographie sur l'ensemble de la zone d'étude des occurrences de 29 espèces des 30 du
peuplement de poissons bathypélagiques, bathyaux et abyssaux de la zone d'inventaire. ................53
Cartographie sur l'ensemble de la zone d'étude des occurrences de 26 des 29 espèces de
mammifères marins de la zone d'inventaire.. ....................................................................................55
Cartographie sur l'ensemble de la zone d'étude des occurrences des six espèces de tortues
marines de la zone d'inventaire. ........................................................................................................58
Cartographie sur l'ensemble de la zone d'étude des occurrences de 28 espèces de crevettes sur
les 32 de la zone d'inventaire.............................................................................................................62
Cartographie sur l'ensemble de la zone d'étude des occurrences des 12 espèces de langoustes,
cigales et langoustines de la zone d'inventaire. .................................................................................64
Cartographie sur l'ensemble de la zone d'étude des occurrences de 102 espèces des 121 espèces
de crabes de la zone d'inventaire.. .....................................................................................................67
�vii
29.
30.
31.
32.
33.
34.
35.
36.
37.
38.
39.
40.
41.
42.
43.
44.
45.
46.
47.
48.
49.
50.
51.
52.
53.
54.
55.
56.
57.
58.
59.
60.
61.
62.
Cartographie sur l'ensemble de la zone d'étude des occurrences de 41 espèces de céphalopodes
sur les 49 de la zone d'inventaire.......................................................................................................70
Cartographie sur l'ensemble de la zone d'étude des occurrences de 157 espèces de bivalves sur
les 187 de la zone d'inventaire...........................................................................................................73
Cartographie sur l'ensemble de la zone d'étude des occurrences de 352 espèces de gastéropodes
sur les 447 de la zone d'inventaire.. ...................................................................................................77
Cartographie sur l'ensemble de la zone d'étude des occurrences des 22 espèces d'oursins de la
zone d'inventaire................................................................................................................................79
Cartographie sur l'ensemble de la zone d'étude des occurrences de 15 des 16 espèces
d'holothuries de la zone d'inventaire. ................................................................................................80
Cartographie sur l'ensemble de la zone d'étude des occurrences de 125 des 137 espèces et
genres d'éponges de la zone d'inventaire. ..........................................................................................82
Cartographie sur l'ensemble de la zone d'étude des occurrences de 67 des 82 espèces d'algues
vertes (Chlorophytes) de la zone d'inventaire.. .................................................................................84
Cartographie sur l'ensemble de la zone d'étude des occurrences de 94 des 129 espèces d'algues
rouges (Rhodophytes) de la zone d'inventaire...................................................................................86
Cartographie sur l'ensemble de la zone d'étude des occurrences de 31 des 38 espèces d'algues
brunes (Ochrophytes) de la zone d'inventaire. ..................................................................................87
Captures en mer déclarées à la FAO en 2016 (en tonnes) par grandes catégories de produits. ........88
Répartition des captures de poissons de mer détaillées dans les déclarations à la FAO de la
République dominicaine et de Cuba en 2016 (en tonnes). ................................................................89
Distributions bathymétriques des vivaneaux commerciaux signalés en Haïti. .................................92
Cartographie sur l'ensemble de la zone d'étude des occurrences des 18 espèces de vivaneaux
de la zone d'inventaire. ......................................................................................................................93
Distributions bathymétriques des mérous et autres Serranidae commerciaux signalés en Haïti .......93
Cartographie sur l'ensemble de la zone d'étude des occurrences des 39 espèces de mérous de
la zone d'inventaire. ...........................................................................................................................94
Distributions bathymétriques des carangues (Carangidae) commerciales signalées en Haïti. ..........94
Cartographie sur l'ensemble de la zone d'étude des occurrences des 26 espèces de carangues
et autres Carangidae de la zone d'inventaire. ....................................................................................95
Distributions bathymétriques des Gorettes et autres Haemulidae commerciaux signalés en
Haïti. ..................................................................................................................................................96
Cartographie sur l'ensemble de la zone d'étude des occurrences des 19 espèces de gorettes et
Haemulidae de la zone d'inventaire. ..................................................................................................96
Distributions bathymétriques des perroquets (Scaridae) commerciaux signalés en Haïti. ................97
Cartographie sur l'ensemble de la zone d'étude des occurrences des 16 espèces de perroquets
de la zone d'inventaire. ......................................................................................................................97
Distributions bathymétriques des acoupas et autres Sciaenidae commerciaux signalés en Haïti......... 98
Cartographie sur l'ensemble de la zone d'étude des occurrences des 14 espèces d'acoupas et
autres Sciaenidae d'intérêt commercial de la zone d'inventaire. .......................................................98
Distributions bathymétriques des rougets signalés en Haïti. .............................................................99
Cartographie sur l'ensemble de la zone d'étude des occurrences de quatre des cinq espèces de
rougets d'intérêt commercial de la zone d'inventaire.........................................................................99
Distributions bathymétriques des blanches (Gerreidae) signalées en Haïti. .....................................99
Cartographie sur l'ensemble de la zone d'étude des occurrences des 11 espèces de blanches et
autres Gerreidae de la zone d'inventaire. .........................................................................................100
Distributions bathymétriques des crossies (Centropomidae) signalés en Haïti. ..............................100
Cartographie sur l'ensemble de la zone d'étude des occurrences des quatre espèces de crossies
ou brochets de la zone d'inventaire. ................................................................................................100
Distributions bathymétriques des mulets signalés en Haïti. ............................................................101
Cartographie sur l'ensemble de la zone d'étude des occurrences de 7 des 10 espèces de mulets
de la zone d'inventaire. ....................................................................................................................101
Distributions bathymétriques des sardines et harengules (Clupeidae) signalés en Haïti. ...............102
Cartographie sur l'ensemble de la zone d'étude des occurrences de neuf des 10 espèces de
sardines et harengules (Clupeidae) de la zone d'inventaire.. ...........................................................102
Distributions bathymétriques des anchois (Engraulidae) signalés en Haïti. ...................................102
�viii
63.
64.
65.
66.
67.
68.
69.
70.
71.
72.
73.
74.
75.
76.
77.
78.
79.
80.
81.
82.
83.
84.
85.
86.
87.
88.
89.
90.
91.
92.
93.
Cartographie sur l'ensemble de la zone d'étude des occurrences de 11 des 12 espèces d'anchois
(Engraulidae) d'intérêt commercial signalées dans la zone d'inventaire. ........................................103
Distributions bathymétriques des raies signalées en Haïti. .............................................................103
Cartographie sur l'ensemble de la zone d'étude des occurrences des neuf espèces de raies
signalées de la zone d'inventaire. ....................................................................................................103
Distributions bathymétriques des requins signalés en Haïti. ...........................................................104
Cartographie sur l'ensemble de la zone d'étude des occurrences des 28 espèces de requins
signalées de la zone d'inventaire. ....................................................................................................105
Distributions bathymétriques des autres poissons côtiers bentho-démersaux signalés en Haïti. ....106
Cartographie sur l'ensemble de la zone d'étude des occurrences de 66 des 68 espèces d'autres
poissons côtiers bentho- démersaux de la zone d'inventaire.. .........................................................107
Distributions bathymétriques des autres poissons pélagiques côtiers signalés en Haïti. .................107
Cartographie sur l'ensemble de la zone d'étude des occurrences des 14 espèces d'autres
poissons pélagiques côtiers de la zone d'inventaire.........................................................................107
Distributions bathymétriques des autres poissons de récifs coralliens signalés en Haïti. ...............108
Cartographie sur l'ensemble de la zone d'étude des occurrences de 130 des 132 espèces d'autres
poissons de récifs coralliens d'intérêt commercial de la zone d'inventaire. ....................................109
Distributions bathymétriques des autres poissons d'herbiers signalés en Haïti. ..............................109
Cartographie sur l'ensemble de la zone d'étude des occurrences des 20 espèces d'autres
poissons des herbiers de la zone d'inventaire. .................................................................................109
Distributions bathymétriques des autres poissons démersaux de bas de plateau et de haut de
talus signalés en Haïti......................................................................................................................110
Cartographie sur l'ensemble de la zone d'étude des occurrences de 46 des 48 espèces d'autres
poissons démersaux de bas de plateau et de haut de talus de la zone d'inventaire. .........................111
Distributions bathymétriques des autres poissons benthiques de bas de plateau et de haut de
talus signalés en Haïti......................................................................................................................112
Cartographie sur l'ensemble de la zone d'étude des occurrences des 13 espèces d'autres
poissons benthiques de bas de plateau et de haut de talus de la zone d'inventaire. .........................112
Distributions bathymétriques des autres poissons néritiques épipélagiques signalés en Haïti........113
Cartographie sur l'ensemble de la zone d'étude des occurrences de 26 des 28 espèces d'autres
poissons néritiques épipélagiques de la zone d'inventaire...............................................................113
Distributions bathymétriques des poissons épipélagiques océaniques signalés en Haïti. ...............114
Cartographie sur l'ensemble de la zone d'étude des occurrences des sept espèces de thons de la
zone d'inventaire..............................................................................................................................114
Cartographie sur l'ensemble de la zone d'étude des occurrences des cinq espèces de makaires
de marlins et de l'espadon de la zone d'inventaire.. .........................................................................115
Distributions bathymétriques des poissons mésopélagiques océaniques signalés en Haïti.............115
Cartographie sur l'ensemble de la zone d'étude des occurrences des 15 espèces de poissons
mésopélagiques océaniques de la zone d'inventaire. .......................................................................115
Distributions bathymétriques des poissons bathypélagiques, bathyaux et abyssaux signalés en
Haïti. ................................................................................................................................................116
Cartographie sur l'ensemble de la zone d'étude des occurrences de 17 des 18 espèces de
poissons bathypélagiques, bathyaux et abyssaux de la zone d'inventaire. ......................................116
Lieux d'agrégations de reproduction du mérou rayé Epinephelus striatus répertoriés depuis
1884 dans les Caraïbes (cercles noirs) et zones de résidence de l'espèce établies à partir des
données de Fishbase (rectangles gris). ............................................................................................120
Situations d'agrégations de reproduction de plusieurs espèces au Belize: (1) Epinephelus
striatus; (2) Mycteroperca bonaci, M. venenosa, M. tigris; (3) Lutjanus jocu; (4) L.
cyanopterus; (5) Lachnolaimus maximus, Lactophrys trigonus, L. triqueter. ................................120
Lieux d'agrégations de reproduction du mérou couronné Epinephelus guttatus, répertoriés
depuis 1884 dans les Caraïbes (cercles noirs) et zones de résidence de l'espèce établies à partir
des données de Fishbase (rectangles gris). ......................................................................................121
Lieux d'agrégations de reproduction du vivaneau sorbe, Lutjanus analis, répertoriés depuis
1884 dans les Caraïbes (cercles noirs) et zones de résidence de l'espèce établies à partir des
données de Fishbase (rectangles gris). ............................................................................................121
Nombre d'espèces par fréquence de signalement de cas de ciguatera selon les peuplements .........124
�ix
Nombre d'espèces par fréquence de signalement de cas de ciguatera selon les familles de
poissons ...........................................................................................................................................124
95. Distribution du nombre d'individus importés aux États-Unis d’Amérique en 2004-2005, par
famille des principales espèces de poissons marins. .......................................................................128
96. Nombre de poissons marins exportés sur le marché aquariophile des États-Unis d’Amérique à
partir d'Amérique centrale, d'Amérique du Sud et des Caraïbes entre 2000 et 2011 ......................129
97. Nombre d'invertébrés marins exportés sur le marché aquariophile des États-Unis d’Amérique
à partir d'Amérique centrale, d'Amérique du Sud et des Caraïbes entre 2008 et 2011 ...................129
98. Relations entre différents habitats de nourriceries et leur connectivité pour les espèces
effectuant des migrations ontogéniques. .........................................................................................131
99. Démarches permettant d'aboutir à l'identification des Zones Fonctionnelles Halieutiques
d'Importance puis de Zones Fonctionnelles Prioritaires et éventuellement des Zones de
Conservation Halieutique ................................................................................................................136
100. Les 10 sites de mise en AMPs: Fort-Liberté (1); Caracol (2); Baie d'Acul (3); GonaïvesGrande saline (4); Arcadins (5); La Gonâve Nord (6); La Gonâve Sud (7); banc de Rochelois
(8); Baradères - Cayemites (9) et Île-à-Vaches -Aquin (10). ..........................................................138
101. Site de Caracol où figurent ses zones de mangroves, d'herbiers et de récifs coralliens. .................138
102. Cartographie sur l'ensemble de la zone d'étude des occurrences de huit espèces constituant les
herbiers et de la fougère des mangroves de la zone d'inventaire.....................................................138
103. Différentes espèces de palétuviers et leurs étages d'occupation......................................................139
104. Cartographie des occurrences de quatre des six espèces constituant les mangroves de la zone
d'inventaire sur l'ensemble de la zone d'étude. ................................................................................140
105. Localisation des principales mangroves d'Haïti; les numérotations (en blanc, de 1 à 10)
renvoient aux sites énoncés au tableau 35. ......................................................................................141
106. Cartographie sur l'ensemble de la zone d'étude des occurrences de 82 des 84 espèces et un
genre de coraux durs de la zone d'inventaire...................................................................................145
107. Évolution du nombre de nouvelles espèces signalées dans les eaux marines et saumâtres
côtières d'Haïti entre 1800 et 2020 de sept grands groupes taxonomiques. ....................................148
108. Nombre annuel d'enregistrements d'occurrences signalées en Haïti dans la base OBIS entre
1866 et 2018. ...................................................................................................................................157
109. Nombre de signalements datés d'espèces par grandes divisions phylogéniques observés dans
la zone d'inventaire. .........................................................................................................................158
110. Cartographie sur l'ensemble de la zone d'étude des occurrences des 15 des 16 espèces
d'isopodes signalées dans la zone d'inventaire. ...............................................................................220
111. Cartographie sur l'ensemble de la zone d'étude des occurrences de 7 des 9 espèces de
stomatopodes de la zone d'inventaire. .............................................................................................220
112. Affiche de campagne de prévention contre les risques de ciguatera diffusée en Guadeloupe. .......221
113. Cartographie sur l'ensemble de la zone d'étude des occurrences de 10 des 11 taxons de
crinoïdes de l'inventaire...................................................................................................................232
114. Cartographie sur l'ensemble de la zone d'étude des occurrences de 27 des 28 espèces d'étoiles
de mer de l'inventaire. .....................................................................................................................232
115. Cartographie sur l'ensemble de la zone d'étude des occurrences de 24 des 25 taxons d'ophiures
de l'inventaire. .................................................................................................................................232
116. Cartographie sur l'ensemble de la zone d'étude des occurrences 11 des 12 taxons de coraux
mous (noirs) de l'inventaire. ............................................................................................................232
117. Cartographie sur l'ensemble de la zone d'étude des occurrences de 18 des 19 taxons
d'anémones de l'inventaire...............................................................................................................233
118. Cartographie sur l'ensemble de la zone d'étude des occurrences de 53 des 62 taxons de
gorgones de l'inventaire...................................................................................................................233
119. Cartographie sur l'ensemble de la zone d'étude des occurrences de 13 des 16 taxons de méduses
de l'inventaire. .................................................................................................................................233
120. Cartographie sur l'ensemble de la zone d'étude des occurrences de 5 des 6 taxons de
bryozoaires de l'inventaire...............................................................................................................233
121. Cartographie sur l'ensemble de la zone d'étude des occurrences de 12 des 15 espèces de
tuniciers de l'inventaire....................................................................................................................234
94.
�x
122. Cartographie sur l'ensemble de la zone d'étude des occurrences de 16 des 26 taxons d'annélides
de l'inventaire. .................................................................................................................................234
123. Cartographie des occurrences de 5 des 11 taxons de cyanophycées de l'inventaire sur
l'ensemble de la zone d'étude. .........................................................................................................234
Photographies
1.
2.
3.
4.
5.
6.
7.
8.
9.
10.
11.
12.
13.
14.
15.
16.
17.
18.
19.
20.
21.
22.
23.
24.
25.
26.
27.
28.
29.
30.
31.
32.
33.
34.
35.
36.
37.
38.
39.
40.
41.
42.
43.
44.
45.
46.
47.
48.
49.
Eucinostomus havana ...................................................................................................21
Albula vulpes ................................................................................................................21
Calamus penna .............................................................................................................21
Bothus robinsi ...............................................................................................................21
Symphurus plagusia......................................................................................................21
Sardinella brasiliensis ..................................................................................................23
Hemiramphus balao .....................................................................................................23
Haemulon plumierii. .....................................................................................................27
Lutjanus synagris..........................................................................................................27
Holocentrus rufus .........................................................................................................27
Myripristis jacobus .......................................................................................................27
Priacanthus arenatus....................................................................................................27
Chaetodon ocellatus .....................................................................................................27
Chaetodon sedentarius .................................................................................................27
Chilomecterus antillarum .............................................................................................27
Diodon hystrix ..............................................................................................................27
Acanthostracion quadricornis ......................................................................................27
Lutjanus purpureus.......................................................................................................37
Anisotremus surinamensis ............................................................................................37
Cynoscion jamaicensis .................................................................................................37
Synodus foetens ............................................................................................................37
Trachinocephalus myops ..............................................................................................37
Fistularia tabacaria......................................................................................................37
Trichiurus lepturus .......................................................................................................41
Etropus crossotus .........................................................................................................41
Cyclopsetta fimbriata ...................................................................................................41
Ophichthus ophis ..........................................................................................................41
Hypanus americanus ....................................................................................................41
Mustelus canis ..............................................................................................................41
Gymnothorax ocellatus .................................................................................................42
Selar crumenophthalmus ..............................................................................................45
Elagatis bipinnulata .....................................................................................................45
Caranx crysos ...............................................................................................................45
Caranx hippos ..............................................................................................................45
Seriola rivoliana ...........................................................................................................45
Selene setapinnis ..........................................................................................................45
Chloroscombrus chrysurus ...........................................................................................46
Auxis rochei rochei .......................................................................................................46
Scomberomorus cavalla ...............................................................................................46
Acanthocybium solandri ...............................................................................................46
Sphyraena guachancho ................................................................................................46
Peprilus paru ...............................................................................................................46
Listao, Katsuwonus pelamis .........................................................................................49
Albacore, Thunnus albacares .......................................................................................49
Thon à nageoires noires, Thunnus atlanticus ...............................................................49
Le germon, Thunnus alalunga ......................................................................................49
Le marlin bleu, Makaira nigricans ...............................................................................49
Tortue caouane juvénile en plongée au large des Açores en 1978 ...............................56
Tortue caouane juvénile au large des Açores en 1978, parasitée par des anatifes........56
�xi
De gauche à droite et de haut en bas: Tortue luth accostant sur la plage; tortues luth
sur le lieu de ponte; tortue luth en ponte et l'auteur; nid et œufs; tortue luth regagnant
la mer après le ponte; jeunes tortues luth (5 à 7 cm) gagnant la mer après l'éclosion.
Photos prises en Guyane en 1981 .................................................................................57
51. Penaeus schmitti. ..........................................................................................................61
52. Penaeus subtilis ............................................................................................................61
53. Panulirus laevicauda ....................................................................................................64
54. Scyllarides aequinoctialis .............................................................................................64
55. Achelous spinimanus ....................................................................................................66
56. Hepatus pudibundus .....................................................................................................66
57. Doryteuthis (Doryteuthis) pleii .....................................................................................69
50.
�xii
Tableaux
Proportions des espèces commercialisables de chaque grand groupe faunistique et végétal et
leurs catégories de valorisation exprimées en pourcentage. Les valeurs absentes équivalent à
des valeurs nulles ..............................................................................................................................17
2. Principales familles de poissons bentho- démersaux côtiers (estuaires, lagune, mangroves,
rivage). Le peuplement compte 147 espèces dont 101 espèces commercialisables. .........................19
3. Principales familles de poissons pélagiques côtiers (d'estuaires, de lagunes, de mangroves et
de rivage). Le peuplement compte 34 espèces toutes commercialisables. ........................................23
4. Principales familles de poissons de récifs coralliens. Le peuplement compte 260 espèces dont
199 commercialisables. .....................................................................................................................25
5. Principales familles de poissons des herbiers, champs d'algues et fonds à éponges. Ce
peuplement compte 39 espèces dont 26 commercialisables..............................................................33
6. Principales familles de poissons démersaux de bas de plateau et de haut de talus. Ce
peuplement compte 119 espèces dont 95 commercialisables............................................................35
7. Principales familles de poissons benthiques de bas de plateau et de haut de talus. Ce
peuplement compte 18 espèces dont 13 commercialisables..............................................................42
8. Principales familles de poissons pélagiques néritiques. Ce peuplement compte 65 espèces dont
58 commerciales................................................................................................................................44
9. Principales familles de poissons épipélagiques océaniques. Ce peuplement compte 32 espèces,
toutes commerciales. .........................................................................................................................48
10. Nombre d'occurrences des espèces de Scombridae, Istiophoridae et Xiphidae signalées dans
la zone d'étude dans les bases OBIS, GBIF, VertNet le 24/06/2021 et fréquence d'occurrence
de chaque espèce dans l'ensemble de la famille. ...............................................................................48
11. Principales familles de poissons mésopélagiques océaniques. Ce peuplement compte 49
espèces dont 15 sont signalées comme commerciales. .....................................................................51
12. Principales familles de poissons bathypélagiques, bathyaux et abyssaux. Ce peuplement
compte 30 espèces dont 19 sont signalées comme commerciales. ....................................................52
13. Les 29 espèces de mammifères marins signalées dans la ZEE d'Haïti dont une espèce a été
éradiquée (†)......................................................................................................................................54
14. Les six espèces de tortues marines signalées dans la ZEE d'Haïti. ...................................................56
15. Principales familles de crustacés qui comptent 253 espèces dont 55 sont signalées comme
commerciales.....................................................................................................................................59
16. Principales familles de céphalopodes qui comptent 49 espèces dont 29 sont signalées comme
commerciales.....................................................................................................................................68
17. Principales familles de bivalves qui comptent 187 espèces dont 47 sont signalées comme
commerciales.....................................................................................................................................71
18. Principales familles de gastéropodes qui comptent 447 espèces dont 43 sont signalées comme
commerciales.....................................................................................................................................74
19. Principales familles d'échinodermes, oursins et holothuries, qui comptent 38 espèces dont huit
sont signalées d'intérêt commercial. ..................................................................................................78
20. Principales familles de porifères Demospongiae, Calcarea et Homoscleromorpha (éponges)
qui comptent 131 espèces et cinq genres dans la zone. .....................................................................81
21. Principales familles d'algues vertes (Chlorophytes) qui comptent 82 espèces dans la zone. ............83
22. Principales familles d'algues rouges (Rhodophytes) qui comptent 129 espèces dans la zone
d'inventaire. .......................................................................................................................................85
23. Principales familles d'algues brunes (Ochrophytes) qui comptent 38 espèces dans la zone
d'inventaire. .......................................................................................................................................86
24. Fréquences (%) des techniques de pêche ciblant les poissons par groupes d'espèces (Cf texte).
...........................................................................................................................................................90
25. Fréquences des techniques de pêche ciblant les invertébrés par groupes d'espèces exprimées
en pourcentage (Cf texte §4.2.1); nr = non renseigné. ......................................................................91
26. Espèces hermaphrodites recensées dans l'inventaire des poissons téléostéens d'Haïti. Chez
toutes ces espèces il s'agit de protogynie; lorsqu'il a pu être renseigné le type est monandrique
(m) ou diandrique (d), sinon séquentiel (séq); le type (hs) correspond à des hermaphrodites
synchrones. La taille de changement de sexe est indiquée. .............................................................118
1.
�xiii
27. Espèces de poissons de l'inventaire établi, formant des agrégations en période de reproduction.
Type: agrégation résidente (AR); agrégation transterritoriale (AT); agrégation non confirmée
(?). Les peuplements (Pplt) sont ceux identifiés dans l'inventaire des poisons ...............................119
28. Inventaire des espèces ciguatogènes signalées par Fishbase et par Bagnis en 1978 (Bagnis,
1981). ..............................................................................................................................................125
29. Liste des espèces sujettes à des agrégations de reproduction transterritoriales dans la zone
d'étude.. ...........................................................................................................................................132
30. Espèces de poissons utilisant les frayères résidentes, caractéristiques, localisation et effectifs
des agrégations de ponte ................................................................................................................133
31. Distribution entre cinq habitats de nourriceries d'espèces d'intérêt halieutique recensées aux
Antilles françaises et présentes en Haïti .........................................................................................134
32. Les huit espèces constitutives des herbiers signalées en Haïti. .......................................................137
33. Les cinq espèces de palétuviers signalées en Haïti. ........................................................................140
34. Évolution des surfaces de 5 mangroves de la côte nord d'Haïti entre 1978 et 1989 . .....................140
35. Surfaces et états des principales Mangroves d'Haïti ......................................................................140
36. liste des 85 espèces et 1 genre de coraux durs signalés en Haïti et limites de leurs distributions
bathymétriques. ...............................................................................................................................142
37. Surfaces et états des récifs coralliens des 10 sites d'AMP; les N° correspondent aux n° de sites
adoptés précédemment (figure 105) ................................................................................................145
38. Nombres d'espèces animales et végétales des eaux marines et saumâtres côtières signalées en
Haïti depuis 1800. ...........................................................................................................................147
39. Inventaire des espèces menacées inscrites sur la liste rouge de l'IUCN et leurs statuts en janvier
2020. ................................................................................................................................................150
�xiv
REMERCIEMENTS
L'étude présentée dans ce document n'aurait pu être réalisée sans l'engagement et le soutien du Ministère de
l'agriculture, des ressources naturelles et du développement rural (MARNDR) qui a initié l'Expertise
scientifique collective sur la pêche artisanale en Haïti, avec l'appui financier de la Banque interaméricaine de
développement (BID).
Sans l'aide efficace de notre collègue de l’Institut français de recherche pour l'exploitation de la mer (Ifremer),
Tarek Hattab, cet exposé n'aurait pas pu bénéficier de l'apport de restitutions sous forme cartographique des
occurrences des différentes espèces et de leurs peuplements; Bernard de Mérona, collègue de l'IRD, en
autorisant l'usage des clichés réalisés sur les échantillons ramenés de la campagne GREEN réalisée en Guyane
en avril 1999, a permis d'illustrer la biodiversité marine; Jacques Dietrich par sa relecture critique et par ses
avis, suggestions et ses conseils, a apporté tout au long de la rédaction de cette contribution à l'expertise une
aide précieuse; tous nos collègues du collège d'experts, en particulier son Président, Gilbert David ainsi que
l'équipe de la Mission Expertise et Consultance de l' Institut de recherche pour le développement (IRD), qui
par leurs lectures et relectures attentives, leurs conseils et leurs critiques constructives, ont contribué à la
finalisation de ce document; les pêcheurs et les communautés de pêcheurs d'Haïti, pour leur collaboration
efficace et chaleureuse dans les enquêtes et les entretiens avec notre équipe et enfin Monica Barone, pour son
travail d'édition réalisé en étroite collaboration avec les auteurs, qu'ils en soient tous chaleureusement
remerciés ici.
�xv
ABRÉVIATIONS, SIGLES ET ACRONYMES
AFS
AMP
ARS
BID
CICTA
CITES
CMS
COPACO
CRFM
DCP
DL
FAO
GBIF
GEBCO
IDA
Ifremer
IUCN
IRD
LM
LT
MARNDR
NMFS
NOAA
NSF
OBIS
ONG
UWI
WoRMS
ZEE
ZFHI
ZIC
American Fisheries Society
Aire marine protégée
Agences régionales de santé
Banque interaméricaine de développement
Commission internationale pour la conservation des thonidés de l'Atlantique
Convention sur le commerce international des espèces de faune et de flore sauvages menacées
d'extinction
Convention sur la conservation des espèces migratrices appartenant à la faune sauvage
Commission des pêches pour l'Atlantique Centre-Ouest
Caribbean Regional Fishery Mechanism
Dispositif de concentration de poissons
Dose létale
Organisation des Nations Unies pour l’alimentation et l’agriculture
Global Biodiversity Information Facility
General Bathymetric Chart of the Oceans
Association internationale de développement
Institut français de recherche pour l'exploitation de la mer
Union internationale pour la conservation de la nature
Institut de recherche pour le développement
Longueur du manteau (ou ML en anglais)
Longueur totale (ou TL en anglais)
Ministère de l'agriculture des ressources naturelles et du développement rural
National Marine Fisheries Service
National Oceanic and Atmospheric Administration
Fondation nationale pour la science
Système d’information biogéographique océanique
Organisation non gouvernementale
Université des West Indies
Registre mondial des espèces marines [World Register of Marine Species]
Zone économique exclusive
Zone fonctionnelle d'intérêt halieutique d'importance
Zone intertropicale de convergence des alizés
��1
INTRODUCTION
Les informations sur les espèces capturées par la pêche artisanale en Haïti ou susceptibles de l’être sont peu
abondantes dans la littérature. Si la pêche en Haïti a donné lieu à une littérature abondante, les différents
rapports et articles traitent principalement du « système pêche»: la population de pêcheurs et son organisation;
les moyens de production (embarcations, types d’engins de pêche); la filière commerciale de la pêche (Damais
et al., 2007; Macias, Wilner et Pérez-Nievas; 2014; MARNDR, 2010; CRFM, 2010; Mateo et Haughton, 2003;
Valles et Wilner, 2009; Breuil, 1999).
La composition spécifique des captures de la pêche et plus généralement celle de la biodiversité marine d'Haïti
reste peu documentée, or ces informations sont nécessaires à l'élaboration d'un plan de réforme de la pêche
incluant sa réorganisation et sa restructuration, sa réglementation, son accompagnement par un suivi quantitatif
et qualitatif des captures et par l'évaluation des populations des principales espèces exploitées, son
aménagement [par exemple, mises en place de l’ aire marine protégées (AMP)] de fermetures saisonnières de
la pêche, de régulation des engins de capture, de protection des espèces menacées), son intégration dans les
organisations régionales des pêches par une participation aux groupes de travail et par une contribution aux
données de captures et d'effort de pêche.
Un premier inventaire de la faune marine avait été établi en 2005 par des scientifiques de République
dominicaine. Il totalisait 1 057 espèces, sans critère d'intérêt pour la pêche, dressé par phylum, subphylum,
classe et ordre, sans toutefois prendre en compte les mammifères marins ni les tortues marines et sans fournir
une liste détaillée des espèces (Herrera-Moreno et Betancourt-Fernández, 2005). Les principales espèces
marines signalées en Haïti seront inventoriées en s’appuyant sur les articles scientifiques, sur les documents
sur la pêche en Haïti, et sur les informations fournies par les ORGP (Organisations régionales de gestion de la
pêche) comme les documents édités par l’Organisation des Nations Unies pour l’alimentation et l’agriculture
(FAO) pour l'Atlantique Centre- Ouest (Cervigón et al., 1993; FAO, 1978, 2002a, 2002b, 2002c) croisées avec
celles des bases de données internationales de Fishbase (Froese et Pauly, 2019) pour les poissons et celles de
Sealifebase (Palomares et Pauly, 2019) pour les autres organismes marins. Ces informations seront complétées
par les données géo référencées d’occurrences des grandes bases de données internationales du Système
d’information biogéographique océanique (OBIS) (2019), du Global Biodiversity Information Facility GBIF
(2019) ou de VertNet (2019), une base de données collaborative sur les vertébrés créée sous l'impulsion de la
Fondation nationale pour la science (NSF). Ces trois dernières sources ont été utilisées en complément des
deux premières, l’inventaire se voulant couvrir en priorité les espèces présentant un intérêt pour la pêche et/ou
celles nécessitant des dispositions réglementaires particulières visant à leur protection conformément aux
conventions internationales et non de décrire la biodiversité marine dans son intégralité.
La taxonomie est vérifiée et actualisée à partir de la base de données du World Register of marine species
(WORMS) (Worms Editorial Board, 2019). Un simple inventaire des espèces ne répondrait pas à l'attente des
décideurs en charge de la réforme de la pêche; cette étude devait apporter des informations sur leur biologie et
leur écologie. Ainsi le milieu marin exploité par la pêche artisanale haïtienne héberge plusieurs biotopes
abritant de nombreuses espèces qui diffèrent par leurs peuplements. Aux trois écosystèmes majeurs qui
caractérisent les milieux insulaires de la mer des Caraïbes (Augier, 2010): mangroves, récifs coralliens et
herbiers qui occupent la partie haute du plateau, s'ajoutent les écosystèmes benthiques et démersaux de bas de
plateau- talus continental, les écosystèmes pélagiques côtiers, néritiques et hauturiers, les espèces
mésopélagiques et les espèces bathypélagiques et bathyales. Les espèces ichtyques seront répertoriées selon
ces écosystèmes.
L'inventaire faunistique s'accompagnera d'informations sur l'espèce: son biotope (substrat, sonde), son régime
alimentaire et la composition de ses aliments et de ses proies; précisera son niveau trophique; sa reproduction,
notamment les cas d’hermaphrodisme, les périodes de ponte lorsqu’elles sont connues ou peuvent être
transposables d'autres pays à la zone d’Haïti car les variations sont sensibles entre les différentes parties de la
grande zone Caraïbes- golfe du Mexique- Floride-nord-Amérique du Sud, la fécondité. L'inventaire fournira
des indications sur la taille des espèces (i.e. taille commune, taille maximale, taille à la première maturité). Les
données sur la vitesse de croissance des individus ou des populations seront collectées ainsi que des paramètres
rendant compte de la résilience des espèces face aux risques de forte réduction, voire de disparition de leur
population. La vulnérabilité est un indicateur synthétique élaboré à partir des premiers constats d’érosion de
la biodiversité (Cheung, Pitcher et Pauly, 2005). Ce paramètre basé sur une échelle de 0 à 100 est estimé à
partir de caractéristiques du trait de vie et de l’écologie des espèces. Il prend en compte la taille maximale des
�2
espèces, leur taille de maturité, le taux de croissance individuel, la fécondité mais également des paramètres
de population comme la mortalité naturelle et le taux de croissance de la population.
1
Contexte géographique
Le milieu marin d'Haïti doit être remis dans son contexte régional. L'échelle qui parait la plus appropriée à
appréhender ses relations avec l'environnement est une région correspondant globalement à la zone 31 de la
FAO dont la Commission des Pêches pour l'Atlantique Centre-Ouest (COPACO) assure le suivi des pêcheries:
la région de l'océan Atlantique délimitée par la côte des Amériques à l'ouest et par le méridien de 40°ouest à
l'est et au sud par le parallèle de 5°nord et au nord par le parallèle de 35°nord (figure 1).
1.1
Topographie et bathymétrie
La région est particulièrement accidentée, comprenant de nombreuses émergences formant des îles et îlets:
l'arc antillais à l'est et les grandes Antilles au sud et sud-est de la Floride, formées des îles de Cuba, d'Hispaniola
(Haïti, République dominicaine), les Îles Caïmanes, de Jamaïque et de Porto Rico. Le relief sous-marin est
limité à l'est par la dorsale médio Atlantique, une cordillère sous-marine qui culmine à 2 350 m au-dessus du
plancher océanique et qui dans cette zone s'infléchit vers le sud-ouest (figure 2).
Figure 1. Délimitation de la zone 31 de la FAO suivie par la COPACO
Source: (FAO, 2002a).
Figure 2. Topographie et bathymétrie de la région de l'Atlantique Centre Ouest
Source: (FAO, 2002a).
�3
Dans sa partie nord-est, on trouve les plaines abyssales de Nares, la plus profonde, et d'Hatteras, où émergent
les Bermudes. Au nord-ouest, délimité par la Floride à l'est, s'étend le golfe du Mexique avec un large plateau
continental dans sa partie est, au large de la Floride, au nord et à l'est de la Baie de Campeche, à la limite du
détroit de Yucatan qui sépare l'isthme Centre-Américain et l'île de Cuba. La partie centrale et occidentale est
constituée de plusieurs bassins entourés de fosses ou de crêtes: le bassin de Yucatan et la fosse des Caïmans;
le bassin de Colombie séparé par la crête de Beata du bassin du Venezuela, lui-même séparé par la crête Aves
du bassin de Grenade. La mer des Caraïbes constitue une grande mer marginale de l'Atlantique, deux fois plus
étendue que la mer Méditerranée, et ouverte sur l'océan par le détroit de Floride, les passages du Vent
(Windward passage) d'une profondeur de 1 540 m, celui de Mona, profond de 400 à 500 m et ceux d'Anegada
et de Jungfern, profonds de 1 910 m et de 1 815 m. La mer des Caraïbes est reliée au golfe du Mexique par le
détroit de Yucatan d'une profondeur de 2 040 m.
1.2
Océanographie, circulation
La mer des Caraïbes est une mer semi-fermée. Les échanges avec l'océan Atlantique sont conditionnés par les
seuils2 présents dans l'arc antillais qui empêchent les eaux profondes de pénétrer. Ainsi les eaux profondes de
l'Antarctique, les eaux les plus denses des océans mondiaux, restent au fond des plaines abyssales de Nares et
d'Hatteras. Sur ses 1 200 premiers mètres de profondeur, la mer des Caraïbes est fortement stratifiée; elle est
peu stratifiée entre 1 200 et 2 000 m et homogène en-dessous de 2 000 m.
Des eaux profondes d'Atlantique-Nord pénètrent par le bassin des Îles Vierges britanniques et le passage du
Vent. La couche d'eau superficielle pénètre essentiellement dans la mer des Caraïbes par le courant des
Guyanes à travers divers détroits entre les îles et va se partager en une branche nord, le courant nord-équatorial
et une branche sud, le courant des Caraïbes (figure 3).
Figure 3. Circulation des eaux dans la mer des Caraïbes et le golfe du Mexique.
Source : Pinot, 1969 (Encyclopaedia Universalis, 2020)
2 Les seuils sont des formations topographiques où les fonds remontent rapidement vers la surface, constituant des obstacles à la
circulation des eaux en profondeur.
�4
Le courant des Caraïbes va traverser les Caraïbes, passer par le détroit de Yucatan puis passer par le détroit de
Floride pour rejoindre le courant nord-équatorial à l'ouest de la mer des Sargasses pour alimenter le Gulf
Stream. Le courant des Guyanes est alimenté par les apports de l'Amazone et de l'Orénoque et à son départ par
le courant nord-Brésil qui subit au cours des oscillations nord-sud de la zone intertropicale de convergence des
alizés (ZIC) une rétroflexion qui va générer des gyres qui vont se répercuter dans la mer des Caraïbes, favorisés
par la géomorphologie des fonds. Plusieurs de ces gyres ont été identifiés dans Les Caraïbes et le golfe du
Mexique, les principaux sont: les tourbillons panaméen, haïtien, cubain, de Campeche, texan et floridien. Le
gyre texan concentre des eaux surchauffées en été (29°C), c'est un tourbillon cyclonique. Mais, en dehors de
ces gyres majeurs il existe de nombreux tourbillons de petites tailles de durées de vies variables dans toutes
les Caraïbes.
1.3
La dissémination des espèces
La Fao s'est intéressée à la dissémination des espèces et constatait que sur les 1 172 espèces répertoriées dans
son guide (FAO, 2002a, 2002b, 2002c), 23 pour cent étaient endémiques de territoires restreints. Il n'y a donc
pas de connectivité généralisée sur l'ensemble de la région Caraïbes-golfe du Mexique. Certaines espèces sont
localisées sur des espaces réduits et par là-même leurs populations sont plus vulnérables à leurs survies. La
région de la Floride a la plus forte biodiversité spécifique. Les scientifiques ont tenté de comprendre
l'interconnexion des territoires par la partition en écorégions, sans atteindre les objectifs attendus. Il est clair
que la circulation des eaux joue un rôle essentiel dans la dispersion et la dissémination des œufs et larves. Les
gyres et tourbillons réduisent l'aire de répartition. Les passages où la circulation est contrainte dans la largeur
(détroit) et en profondeur (seuils), contribuent à créer des frontières à la dissémination; c'est notamment le cas
du passage de Mona entre Porto Rico et l'île d'Hispaniola.
On peut toutefois penser que dans le cas d'Haïti, la partie nord sera plus influencée par les communautés de
Floride alors que la partie sud sera plus influencée par celles des bassins colombien et vénézuélien.
1.4
Géographie politique et juridique
La région des Caraïbes et du golfe du Mexique est une mosaïque d'États souverains ou de régions rattachées à
des pays souverains. On y compte 42 unités juridictionnelles mises en place après la signature de la convention
des Nations Unies sur le Droit de la Mer de Montego Bay (1982) qui a permis la mise en place des zone
économique exclusives (ZEE) (figure 4). Cela implique que les diverses entités souveraines harmonisent leurs
actions dans leur environnement commun. La Convention pour la protection et la mise en valeur du milieu
marin dans la région des Caraïbes ou Convention de Carthagène signée en 1983, est une initiative favorisant
la coopération régionale dans cette partie du monde. La mise en place des ZEE se fait par des accords bilatéraux
ou multilatéraux et dans les Caraïbes plusieurs cas de délimitation des ZEE sont encore en litige. Les ZEE
d'Haïti, de Cuba, de Jamaïque et de l'enclave des États-Unis d’Amérique de l'île de Nasave en font partie. L'île
de la Navase est située au Sud-ouest d'Haïti, à 50 km au large d'Anse-d'Ainault. C'est un îlot inhabité de 5,2
km² de surface, annexé par les États-Unis d’Amérique en 1857 dans le cadre du Guano Act, un an après son
adoption. Le Guano Act autorisait tout citoyen américain à réclamer, au nom des États-Unis d’Amérique, toute
île inhabitée et non revendiquée susceptible de contenir du guano. L’île de la Navase Phosphate Company de
Baltimore a extrait environ 1 000 000 tonnes d'engrais et a abandonné l'exploitation en 1898. En 1917 les
américains y ont érigé un phare. En 1997 l'îlot a été confié à la gestion du ministère de l'intérieur qui a chargé
ensuite le National Marine Fisheries Service (NMFS) de la National Oceanic and Atmospheric Administration
(NOAA) d'organiser des campagnes scientifiques dès 1998 (Grace, Bahnick et Jones, 2000). En 1999, l'île de
la Navase a alors été déclarée Réserve Nationale de la Faune Sauvage, incluant une bande maritime de 12
milles autour de l'île (Miller, 2003). Actuellement l'îlot est sous administration américaine mais reste
revendiqué par Haïti qui le considère comme faisant partie de son territoire et conteste les limites de la ZEE;
Cuba et La Jamaïque soutiennent la revendication de l'État haïtien. Le litige porte sur le tracé des frontières
des ZEE d'Haïti, de Cuba, de Jamaïque et des États-Unis d’Amérique (Fournier, 2012). Dans la pratique une
petite flottille de pêche haïtienne implantée dans le département de la Grande Anse pratique épisodiquement
une pêche autour de l'îlot.
�5
2
Méthodologie
2.1
Zone d'étude et zone d'inventaire
Haïti dispose d'un littoral de 1 977 km (FAO, 2005)3 et d'une ZEE de 103 818 km² (Flanders Marine Institute,
2018)4 dont 5 857 km² de plateau continental (FAO, 2005). Les fonds de la ZEE sont compris entre 0 et
4 440 m avec une profondeur médiane de 2 726 m (GEBCO Compilation Group, 2014). La zone des eaux
territoriales qui s'étend à 12 milles nautiques5 de la ligne de base droite (la laisse de basse mer, dans le cas
d'Haïti), couvre 26 283 km², soit 25 pour cent de la surface de la ZEE. Sa profondeur est comprise entre 0 et
4 293 m d'après les données du General Bathymetric Chart of the Oceans (GEBCO), avec pour profondeur
médiane 831 m (figure 5). Il est à noter que la grande majorité de la flottille de pêche haïtienne a un rayon
d'action réduit et opère essentiellement dans les eaux territoriales; seules quelques embarcations motorisées
qui se rendent aux abords de l'île de la Navase vont au-delà de cette limite. La zone contigüe, zone où s'exercent
les législations douanières et dans certains cas policières (par exemple, lutte contre le narcotrafic et la traite
d'êtres humains), s'étend de la limite des eaux territoriales à 24 milles nautiques de la ligne de base droite; sa
surface est de 18 944 km².
La zone d'inventaire se focalisera sur la ZEE d'Haïti et de celle de l'enclave de la Navase où les espèces marines
se rencontrent également en Haïti. Les restitutions cartographiques des distributions spatiales des espèces
seront étendues au rectangle où s'inscrivent les ZEE de Cuba, des Îles Caïmanes, de La Jamaïque, de l'enclave
États-Unis d’Amérique de l’île de la Navase, d'Haïti et de la République dominicaine, soit la zone comprise
entre 14,0833° et 25,2246° de latitude Nord et 65,8219° et de 86,9397° de longitude Ouest, qui correspondra
à notre zone d'étude. Les limites de ces ZEE et la limite des eaux territoriales d'Haïti seront toujours
matérialisées.
Figure 4. Géographie politique et juridique de la région des Caraïbes et du golfe du Mexique. Répartition des ZEE
Source: FAO (2002a).
3 Selon les sources, les valeurs peuvent différer: la longueur du littoral serait de 1 771 km (source: CIA World Factbook:
https://www.cia.gov/library/publications/the‐world‐factbook/)
4 Surface ne comprenant pas la partie rattachée à l'île de la Navase sous souveraineté des États-Unis dont la ZEE actuelle est de 13 934 km².
L'institut marin flamand Vlaams Instituut voor de Zee (VLIZ) fait internationalement autorité en matière de limites des zones de droit
maritime.
Selon la FAO la superficie de la ZEE d'Haïti serait de 86 398 km² (FAO, 2005), de 123 525 km² selon Sea around US
(http://www.seaaroundus.org/data/#/eez/332?chart=catch-chart&dimension=taxon&measure=tonnage&limit=10 ) et de 126 760 km² selon le
site Wikipédia https://fr.wikipedia.org/wiki/Zone_%C3%A9conomique_exclusive
5 12 milles nautiques = 22,224 km
�6
2.2
Paramètres et informations répertoriées
L'inventaire des espèces marines exploitées ou valorisables d'Haïti s'est restreint aux macroorganismes du
règne animal et du règne végétal. Seules les espèces présentes dans les ZEE d'Haïti et de l’île de la Navase ont
été inscrites à cet inventaire.
2.2.1
L'identification des espèces
L'identification taxonomique: le Phylum, le nom scientifique (genre, espèce, nom de l'auteur et année de sa
première description) et la famille sont vérifiés dans la base internationale Registre mondial des espèces
marines (WoRMS) (WoRMS Editorial Board, 2019); lorsqu'il s'agit d'un synonyme, le nom scientifique
accepté (valide) de la base WoRMS est adopté. L'identifiant de l'espèce (n° ID) est également collecté; ce
paramètre est utilisé dans les programmes faisant appel aux principales bases de données écologiques.
Le nom vernaculaire en français ou le cas échéant en anglais et lorsque l'information n'était disponible dans
aucune de ces deux langues, laissé en «blanc»; le nom vernaculaire en créole haïtien: repris des tableaux des
documents et articles sur Haïti (Wilner, 2004; Favrelière, 2008; Morain, 2016; Vallès, 2018) ou le nom
vernaculaire français en usage en Haïti selon la FAO et fourni dans Fishbase le cas échéant. Un travail de
référencement des noms en créole est en cours actuellement, mais en l'état actuel, l'information concerne une
minorité des espèces recensées. Pour une même espèce plusieurs noms vernaculaires peuvent être utilisés dans
une langue donnée et inversement un même nom vernaculaire peut désigner plusieurs espèces. Dans la majorité
des cas le nom vernaculaire français adopté par la FAO ou celui utilisé en Martinique ou en Guadeloupe sera
retenu; en anglais ce sera celui de la FAO ou celui de l’American Fisheries Society (AFS).
Figure 5. Situation géographique d'Haïti. Limites des ZEE des pays riverains (en noir), limites extérieures des eaux
territoriales (en bleu) et de la zone contigüe (en rouge) d'Haïti (Flanders Marine Institute, 2018). Ce rectangle
constitue la zone d'étude.
Bathymétrie : GEBCO Compilation Group (2014).
�7
2.2.2
Les données et informations sur l'écologie de l'espèce
Des données sur l'habitat, qui incluent le type d'eau (eau marine et saumâtre pour les espèces euryhalines ou
sténohalines, eau douce pour des espèces anadromes ou catadromes). On distinguera les espèces benthiques,
en étroite relation avec le fond, les espèces démersales vivant à proximité du fond; les espèces pélagiques
vivant en pleine eau. Chez ces dernières on distinguera les espèces épipélagiques occupant les 200 premiers
mètres sous la surface; les espèces mésopélagiques de la couche d'eau située entre 200 et 1 000 m sous la
surface et enfin les espèces bathypélagiques dans la couche d'eau située entre 1 000 et 4 000 m sous la surface
(figure 6).
On distinguera également différents domaines: le domaine littoral ou côtier sous l'influence directe des eaux
continentales avec ses sous-domaines de la zone supratidale, de la zone intertidale et de la zone subtidale; pour
les espèces benthiques et démersales, le plateau continental qui s'étend de la côte à l'isobathe des 200 m et le
talus continental entre les isobathes de 200 m et de 4 000 m; pour les espèces pélagiques, le domaine néritique
correspondant à la couche d'eau au-dessus du plateau continental et le domaine océanique situé au large du
domaine néritique. Chez les espèces benthiques et démersales, le substrat constituant le fond joue un rôle
essentiel dans leur distribution spatiale: vase, sable, gravier, débris coquilliers, roches, coraux, fonds à éponges,
à oursins, à anémones, etc.; les fonds à herbiers, les champs d'algues ou chez les espèces démersales ou
pélagiques, les objets flottants inertes ou constitués d'algues (par exemple, certaines sargasses).
Le régime alimentaire: les informations sur le régime alimentaire, sur la nature des proies ainsi que sur la
nature des prédateurs de l'espèce seront collectées ainsi que la valeur estimée de son niveau trophique. Ce
dernier paramètre permet de situer l'espèce dans la chaîne alimentaire; les producteurs primaires ont le niveau
trophique le plus bas, les consommateurs (herbivores, carnivores et les décomposeurs) les niveaux plus élevés
(par exemple le niveau trophique des Scaridae ou perroquets, herbivores, est de 2,0; celui des thons, prédateurs
supérieurs, est de 4,5 et celui du grand requin marteau est de 4,9).
Figure 6. Principales subdivisions de l'habitat marin
Source: FAO (2002b)
�8
2.2.3
Les données démographiques et écologiques
Ces données sont essentielles dans les évaluations des dynamiques des populations. Elles concernent des
données générales telles que la taille maximale, la taille de première maturité (taille minimale à laquelle
50 pour cent de la population de l'espèce est mature6), la longévité. Quand les informations existent, les
paramètres de croissance ont été collectés.
Lors des évaluations de populations exploitées, le modèle le plus utilisé pour décrire la croissance individuelle
en longueur est celui de Von Bertalanffy (Laurec et Le Guen, 1981; Cadima, 2002):
Lt = L∞.[1-e^(-K.(t-t_0))]
où Lt est la longueur à l'âge t, L∞ la longueur asymptotique (longueur maximale théorique), K le coefficient
de croissance exprimé en an-1 et t_0 l'âge théorique où la longueur est nulle. Des exemples de croissances
théoriques sont donnés sur des espèces de tailles, croissances et longévités très différentes (figure 7) D'autres
modèles ont été développés prenant en compte des variations saisonnières de croissance ou chez les crustacés,
le phénomène de mues. Les paramètres de l'équation de Von Bertalanffy sont estimés sur une gamme de tailles
donnée et en toute rigueur ne s'appliquent que dans l'intervalle de longueurs correspondant.
La relation entre le poids individuel et la longueur est modélisée sous la forme:
Wt =a.〖L_t〗^b
où Wt est le poids individuel à l'âge t, Lt est la longueur individuelle à l'âge t et 𝑎 et 𝑏 sont deux constantes.
Ces deux constantes propres à chaque espèce, ont été également collectées. À noter que la combinaison des
deux équations précédentes fournit un modèle de croissance pondérale individuelle.
La longévité est également un paramètre important dans le profil démographique d'une espèce mais il est
rarement renseigné. Il est possible d'en obtenir une approximation à partir de la taille maximale observée et du
modèle de croissance de l'espèce.
Figure 7. Croissance théorique d'une crevette (P. subtilis), d'une sardine (S. brasiliensis), d'un vivaneau (L.
synagris) d'un mérou (E. itajara) et d'un thon (T. albacares). L'âge et la taille de maturité sont indiqués (pointillés).
Modèles de croissance
200
180
160
Longueur (cm)
140
Penaeus subtilis (LT)
120
Sardinella brasiliensis (LT)
100
Lutjanus synagris (LF)
80
Epinephelus itajara (LT)
60
Thunnus albacares (LF)
40
20
0
0
5
10
15
âge (années)
20
25
30
6 Chez certaines espèces les tailles de maturité peuvent différer selon les sexes: cas des espèces présentant un dimorphisme sexuel par
la taille (par exemple, les crevettes pénéides chez lesquelles les femelles grandissent plus vite que les mâles) ou cas des espèces
présentant un hermaphrodisme séquentiel, cas fréquents chez les poissons de récifs coralliens (Cf. § 3.2.1.3. et § 5.1.1).
�9
Des données sur la dynamique des populations sont répertoriées. Elles sont rarement renseignées car les
estimations de ces paramètres nécessitent une quantité importante de données et leur coût d'acquisition est très
élevé. Le paramètre qui rend compte de la capacité d'une population d'une espèce donnée à se reconstituer est
le «taux intrinsèque de croissance», noté 𝑟 et exprimé en an-1:
1 𝑑𝑁
.
𝑁 𝑑𝑡
où 𝑁 est le nombre d'individus de la population et 𝑡 le temps.
𝑟=
Une attention a été portée sur la reproduction, son mode et ses saisons. Nous verrons que pour une espèce
donnée les périodes de reproduction diffèrent énormément d'une région à l'autre y compris au sein de la zone
mer des Caraïbes- golfe du Mexique. Enfin, Enfin, la fécondité absolue, un paramètre essentiel, sera prise en
compte7.
2.2.4
Les données sur la toxicité et la dangerosité des espèces pour l'homme
On distinguera la dangerosité de l'espèce selon qu’il s’agisse de risques de morsure (par exemple, attaque de
requin) de risques d'intoxications par piqûre venimeuse ou de chair vénéneuse inhérentes à l'espèce qui
métabolise ses substances toxiques et la toxicité acquise par les espèces, notamment celles responsables de la
ciguatera (Cf. § 5.2).
2.2.5
Les informations sur les usages et le potentiel commercial
L'intérêt commercial de l'espèce est notifié en plusieurs degrés: espèce hautement commerciale, commerciale,
d'intérêt commercial potentiel, commerciale mineure, vivrière, sans intérêt; et selon leur usage: appât,
aquaculture, marché de l'aquariophilie, pêche sportive. Chez certaines espèces des informations sur des usages
particuliers seront collectées (par exemple, médecine traditionnelle, fourrage, etc.).
Certaines espèces apparaitront comme ne présentant aucun intérêt commercial, pour autant elles peuvent
contribuer à la biodiversité de certains milieux comme les récifs coralliens, contribuant ainsi à l'attractivité de
ces milieux et à leur valorisation (tourisme écologique, spot de plongée sous-marine) ou non recensées comme
d'intérêt pour l'autoconsommation (sans pêche ciblée) mais consommables et le plus probablement
consommées.
2.2.6
Les techniques de capture
Lorsque l'information est disponible, les techniques de pêche utilisées pour la capture des espèces seront
inventoriées. Il s'agira de techniques utilisées dans le monde, revêtant un caractère général, certaines pouvant
ne pas s'appliquer au cas précis d'Haïti (par exemple, le chalutage de fond).
2.2.7
Les indicateurs sur la résilience des populations
Un des objectifs de cet inventaire est de fournir des éléments d'information sur la fragilité des populations des
organismes marins aux diverses pressions d'origine anthropique (par exemple, la pêche, réduction ou
disparition d'habitats essentiels) ou naturelles (par exemple, cyclones, séismes, changement climatique).
Deux types de paramètres sont répertoriés: le statut de l'espèce vis-à-vis du risque d'extinction et la
vulnérabilité de l'espèce.
Le statut de l'espèce est répertorié selon son classement dans les listes de l’Union internationale pour la
conservation de la nature (IUCN), dans les annexes de la Convention sur le commerce international des espèces
de faune et de flore sauvages menacées d'extinction (CITES) et dans les annexes de la Convention sur la
conservation des espèces migratrices appartenant à la faune sauvage (CMS) (Cf. § 7.2).
7 Nombre d'ovocytes murs immédiatement avant la ponte. Pour une espèce qui n'a qu'une ponte annuelle, la fécondité absolue est
également la fécondité annuelle.
�10
Il sera fait souvent référence au statut de l'espèce dans la liste rouge de l'IUCN par la suite. Les différents
statuts sont:
•
EX: extinct (disparition au niveau mondial)
•
EW: extinct in the wild (disparition à l'état sauvage)
•
CR: critically endangered (en danger critique)
•
EN: endangered (en danger)
•
VU: vulnerable (vulnérable)
•
NT: near threatened (quasi menacé)
•
LC: least concern (Préoccupation mineure)
La vulnérabilité est un paramètre intrinsèque à l'espèce transcrivant sa situation vis-à-vis du risque d'extinction.
Il a été élaboré sur la base des observations faites sur les espèces victimes d'extinction dans le monde. Il est
communément admis qu'une espèce de grande taille présente davantage de risque d'extinction par la pêche
qu'une espèce de petite taille, de même qu'une espèce à faible fécondité ou qu'une espèce à croissance lente ou
qu'une espèce tributaire d'un biotope fragile. Mais un seul paramètre contribuant à augmenter le risque
d'extinction (Vs résilience) ne suffit pas à rendre compte de ce risque et ne permet pas des comparaisons entre
différentes espèces. La vulnérabilité est construite par un système expert prenant en compte des paramètres
propres au trait de vie et à l'écologie de l'espèce (Cheung, Pitcher et Pauly, 2005). Pour simplifier la
vulnérabilité est une fonction de la forme:
𝑉 = 𝑓(𝐿𝑚𝑎𝑥 , 𝑇𝑚 , 𝑇𝑚𝑎𝑥 , 𝐾, 𝑀, 𝐹é𝑐, 𝐶𝑠)
où 𝐿𝑚𝑎𝑥 est la taille maximale, 𝑇𝑚 l'âge de première maturité, 𝑇𝑚𝑎𝑥 la longévité, 𝐾 le taux de croissance de
l'équation de Von Bertalanffy, 𝑀 le coefficient de mortalité naturelle, 𝐹é𝑐 la fécondité annuelle, 𝐶𝑠 un
paramètre de comportement spatial et territorial de l'espèce selon que son périmètre de déplacement est étendu
ou restreint, selon que son comportement est agrégatif pour s'alimenter ou bien que son comportement agrégatif
s'exprime au moment de la reproduction.
La vulnérabilité varie de 0 à 1 et est exprimée en pourcentage. Une espèce sera d'autant plus vulnérable à
l'extinction que sa vulnérabilité se rapprochera de 100 pour cent. En résumé les espèces peuvent être classées
en sept classes selon leur vulnérabilité:
•
Vulnérabilité basse: moins de 24 pour cent (espèces de tailles réduites à croissance
individuelle rapide, à fécondité élevée et au taux de croissance intrinsèque de la population
élevé, souvent avec un régime alimentaire constitué de plancton ou herbivore, cas des
anchois et des sardines).
•
Vulnérabilité basse à modérée: de 25 à 34 pour cent.
•
Vulnérabilité modérée: de34 à 45 pour cent.
•
Vulnérabilité modérée à haute: de 46 à 54 pour cent.
•
Vulnérabilité haute: de 55 à 65 pour cent.
•
Vulnérabilité haute à très haute: de 66 à 75 pour cent (prédateurs supérieurs, par exemple,
certaines murènes, le mérou géant, le thon rouge).
•
Vulnérabilité très haute: supérieure ou égale à 76 pour cent (par exemple, certains requins
comme le requin citron, le requin bouledogue ou le requin baleine dont les vulnérabilités
dépassent 85 pour cent).
Quelques exemples de relations entre des paramètres démographiques et écologiques permettent de mieux
appréhender ce paramètre de vulnérabilité (figure 8).
�11
Figure 8. Relations entre paramètres démographiques et écologiques de poissons téléostéens de l'inventaire et leur
vulnérabilité: (a) la taille maximale, (b) la taille à la première maturité, (c) le taux de croissance individuelle en
longueur, (d) la longévité, (e) le taux intrinsèque de croissance de la population, (f) Le niveau trophique.
400
R² = 0.6654
n = 676
300
200
100
Taille de maturité (cm)
Longueur maximale (cm)
250
(a)
500
(b)
200
n = 169
150
R² = 0.4319
100
50
0
0
0
20
40
60
80
0
100
20
Vulnérabilité (%)
3.5
3
2.5
2
1.5
1
R² = 0.5563
0.5
0
80
100
(d)
50
n = 98
40
30
R² = 0.4572
20
10
0
0
20
40
60
80
100
0
20
1.4
5
(e)
n = 47
60
80
100
(f)
n = 674
4.5
1
0.8
0.6
R² = 0.5673
0.4
Niveau trophique
1.2
40
Vulnérabilité (%)
Vulnérabilité (%)
Taux intrinséque de croissance
r de la population (an-1)
60
60
(c)
n = 185
Longévité (année)
Taux de croissance en
longueur (an-1)
4
40
Vulnérabilité (%)
4
R² = 0.1382
3.5
3
2.5
2
0.2
1.5
0
0
20
40
60
Vulnérabilité (%)
80
100
0
20
40
60
Vulnérabilité (%)
80
100
�12
2.3
Biotopes et peuplements
Le peuplement est constitué d'un ensemble d'espèces coexistant dans un même habitat. Dans un souci de clarté,
les espèces inventoriées ont été affectées à 10 peuplements tenant compte des habitats (Cf § 2.2.2) et des
comportements (par exemple, pélagique, benthique, démersal, etc.):
•
Pélagique: qui vit et se nourrit dans la colonne d'eau entre 0 et 200 m, et ne se nourrit pas
d'organismes benthiques.
•
Démersal: qui vit et se nourrit sur ou à proximité du fond, entre 0 et 200 m.
•
Benthopélagique: qui vit et/ou se nourrit à proximité du fond aussi bien que dans la colonne d'eau
entre 0 et 200 m.
•
Récifal: qui vit et se nourrit dans les récifs coralliens ou à proximité, entre 0 et 200 m.
•
Bathypélagique: qui vit et se nourrit dans la colonne d'eau en-dessous de 200 m, et ne se nourrit pas
d'organismes benthiques.
•
Bathydémersal: qui vit et se nourrit sur ou à proximité du fond en-dessous de 200 m.
Dans la mesure où les informations sur l'écologie de l'espèce le permettaient, à chaque espèce est affecté un
peuplement correspondant à un habitat et à un comportement. Dans de nombreux cas, l'espèce peut occuper
plusieurs habitats ou changer de comportement (par exemple, selon le stade dans le cycle vital, selon les
rythmes nycthéméraux ou saisonniers), alors le peuplement correspondant à l'habitat prépondérant lui sera
affecté. Dans certains cas, les informations disponibles ne permettront pas de rattacher l'espèce à un
peuplement (cas fréquent chez les invertébrés).
Compte tenu des biotopes et des comportements de la macrofaune marine en Haïti, 10 peuplements ont été
définis:
p1: peuplement bentho-démersal côtier (estuaires, lagunes, mangroves et rivage des fonds jusqu'à 10 m,
parfois plus).
p2: peuplement pélagique côtier (estuaires, lagunes, mangroves et rivage au-dessus des fonds de 10 m,
parfois plus).
p3: Peuplement des récifs coralliens.
p4: Peuplement des herbiers, des champs d'algues, des fonds à éponges.
p5: Peuplement démersal de bas de plateau et de haut de talus.
p6: Peuplement benthique de bas de plateau et de haut de talus.
p7: Peuplement pélagique néritique épipélagique.
p8: Peuplement épipélagique océanique.
p9: Peuplement mésopélagique océanique.
p10: Peuplement bathypélagique bathyal et abyssal.
Auquel s'ajoute:
ppa: Peuplement parasitaire dont l'habitat dépendra de l'espèce hôte.
2.4
La distribution spatiale
La distribution géographique des différents peuplements et grands groupes phylogéniques sera restituée sous
forme de cartes où figureront les positions des observations des espèces signalées dans les grandes bases de
données internationales sur la biodiversité (OBIS, GBIF, VerNet).
Le fond de carte est réalisé à partir des données bathymétriques de GEBCO (GEBCO Compilation Group,
2014), des données sur les limites des régions maritimes (Flanders Marine Institute, 2018), des données sur
les limites des terres émergées du package «rworldmap» du logiciel R (South, 2011).
�13
Certains signalements n'ont pas été géo référencés mais signalés par un lieu (pays, province, département,
commune), ils sont alors positionnés au centre géographique du lieu, parfois à l'intérieur des terres. Dans le
cas d'espèces amphibiotiques (eaux marines, eaux saumâtres, eaux continentales), certains signalements sont
positionnés à l'intérieur des terres (lacs, cours d'eau). Afin de ne pas s'éloigner du sujet de cette étude portant
sur les espèces des eaux marines et saumâtres, les points situés à l'intérieur des terres ont été masqués, seuls
ceux correspondant à des points de débarquement, proches de la côte ont été conservés (c'est ainsi que
fréquemment le site de Port-au-Prince figure dans les lieux d'occurrence).
Enfin, ces bases de données font l'objet de mises à jour en continu. Il importait donc que les consultations de
ces bases à des fins de restitutions cartographiques soient réalisées dans un laps de temps le plus réduit
possible pour permettre des comparaisons pertinentes. La date de consultation des bases de données au cours
de l'exécution des programmes de cartographie sera indiquée.
3
L'inventaire des espèces
3.1
L'inventaire des espèces dans la littérature sur Haïti et dans les bases de données
internationales
3.1.1
La faune marine
Dans quelques rapports, des informations détaillées sur la composition des captures sont apportées: une
synthèse sur la pêche dans le département du Sud-Est (Favrelière, 2008), fournit les noms vernaculaires en
français et en créole haïtien et les familles de 27 appellations commerciales de poissons, quatre de crustacés,
deux de mollusques, deux de céphalopodes, deux d'échinodermes et une d'algues, ces dénominations
recouvrent souvent plusieurs espèces comme les mérous, les sardines, les vivaneaux ou les perroquets; une
étude sur l'environnement marin de la Cité Soleil (Morain, 2016) présente 22 des principales espèces
débarquées par les pêcheurs de cette localité proche de Port-au-Prince en y indiquant les noms vernaculaires
en français et en créole haïtien ainsi que les noms scientifiques d'espèce ou de genre, elle compte 14
appellations de poissons, trois de coquillages et cinq de crustacés.
Quelques articles scientifiques fournissent des informations plus détaillées sur les espèces présentes en Haïti.
Une étude des populations de poissons sur deux récifs coralliens de l'île de La Gonâve a été réalisée à partir de
captures au casier et par observation visuelle (Ferry et Kohler, 1987). La description reste néanmoins succincte,
s'arrêtant au niveau taxonomique de la famille (19 taxons) ou du genre (23 taxons).
Les études les plus abondantes et détaillées ont été réalisées par des campagnes scientifiques d'observation par
plongée, par pêche expérimentale au casier, à la ligne ou à la palangre régulièrement organisées à l’île de la
Navase et ont permis d'établir un inventaire détaillé des espèces présentes autour de l'îlot (Miller et Gerstner,
2002; Miller, Mc Clellan et Bégin, 2003; Karnauskas et al., 2011; Grace, Bahnick et Jones, 2000; Miller, 2003;
Miller et al., 2005; Piniak et al., 2006; Miller et al., 2007; Miller et al., 2008). Les campagnes du navire Oregon
II en 1997 et 1998 (Grace, Bahnick et Jones, 2000) et celle du navire Coral Reef II en 2002 (Miller, 2003) ont
fourni les inventaires les plus complets sur la faune et la flore marine dans cette région avec 79 espèces de
poissons pour les premières et 146 pour l'autre. L'apport des études dans la réserve de l'île de la Navase est
significatif mais les observations qui y sont faites concernent essentiellement les écosystèmes coralliens et les
fonds durs, elles ont été réalisées en observation directe, en plongée ou au moyen de caméras digitales, à des
profondeurs ne dépassant pas 35 m, ou par capture à la palangre de fond à des profondeurs comprises entre
220 et 275 m; elles ne reflètent donc pas l'ensemble des écosystèmes marins de la ZEE haïtienne.
Quelques études ont fourni des inventaires détaillés des espèces, soit à partir de données de débarquement de
la pêche artisanale (Wilner, 2004; Vallès, 2018), soit dans le cadre d'études de sites particuliers (Bouchon et
al., 2006, Bouchon-Navaro et al., 2006; Louis et al., 2006; ReefCheck, 2013; Kramer et al., 2016).
Enfin, des études très complètes ont été réalisées sur l'ensemble d'Hispaniola par des équipes dominicaines,
distinguant les observations réalisées en République dominicaine et en Haïti (Herrera- Moreno et BetancourtFernández, 2002, 2003, 2004, 2005; Alvarado, 2011; Herrera-Moreno, 2014).
�14
Une étude prospective visant à estimer les captures réelles, réalisée par le «Fisheries Centre Research» de
l'université de Colombie Britannique (Ramdeen et al., 2012a, 2012b) doit également être mentionnée dans ce
tour d'horizon. Elle se veut corriger les déclarations des captures de la pêche maritime aux instances
internationales, dont la FAO. L'estimation des volumes de captures qui en résulte s'appuie sur des estimations
par interpolations linéaires du nombre de pêcheurs, des captures par unité d'effort (kg/ pêcheur/ an), de la
consommation en poisson, à partir d'un nombre limité de valeurs de référence. La composition des captures
par espèces a été estimée à partir de deux études, l'une sur la pêche côtière à Lully et l'autre sur les captures en
pélagiques sous dispositif de concentration de poissons (DCP). Compte tenu du faible nombre de valeurs et
d'études qui ont servi de base aux estimations de volume de capture sur la période de 1950 à 2010 et des
hypothèses fortes sur lesquelles elles s'appuient, ces estimations doivent être considérées avec la plus grande
circonspection.
Dans l'ensemble de la littérature consultée l'identification des espèces est soit complète (nom scientifique du
genre et de l'espèce) soit s'est arrêtée au nom de genre, soit s'est arrêtée au nom de la famille ou au phylum
(MdE, 2016, 2019).
À l'issue de ce premier examen dans la littérature, 262 noms d'espèces de poissons téléostéens ont été recensés;
quatre noms d'espèces et un nom de genre de raies et cinq noms d'espèces de requins.
Face aux lacunes constatées par la recherche bibliographique sur les espèces de macroorganismes marins
présents dans les ZEE d'Haïti et de l’île de la Navase, il a fallu faire appel aux bases de données internationales.
Il s'agit des données de la FAO (FAO, 1978; Cervigón et al., 1993; FAO, 2002a, FAO, 2002b, FAO, 2002c),
de Fishbase (Froese et Pauly, 2019) et Sealifebase (Palomares et Pauly, 2019) qui fournissent des informations
sur l'habitat, la distribution géographique, la biologie et l'écologie des espèces, leur usage commercial et parfois
les moyens de capture utilisés; des bases mondiales de données d'occurrences créées dans le cadre du suivi de
la biodiversité: OBIS (OBIS, 2019), GBIF (GBIF, 2019) et VertNet (VertNet, 2019).
L'inventaire qui a été dressé recense les espèces qui ont donné lieu à un signalement dans la ZEE d'Haïti ou de
L’île de la Navase. Il appelle quelques remarques:
•
Il ne concerne pas exclusivement les espèces signalées d'intérêt commercial dans Fishbase,
Sealifebase ou par la FAO (pêche, aquariophilie, pêche sportive et récréative, aquaculture).
•
Des espèces signalées par le passé sont susceptibles de ne plus être présentes actuellement du fait de
l'érosion de la biodiversité.
•
Il ne fournit pas d'informations quantitatives sur les abondances des différentes espèces.
•
Les occurrences ne sont pas systématiquement géo référencées, elles peuvent être rattachées à un
pays (i.e. une ZEE) ou un lieu (par exemple, proximité d'une commune) sans coordonnées
géographiques.
Cet inventaire n’a pas la prétention d’être exhaustif. Les espèces ayant un intérêt comme ressource vivrière ou
comme produit de la pêche commercialisable pour l’alimentation, l’aquariophilie privée ou publique ou la
pêche sportive ont été retenues en priorité.
Il est apparu opportun, dans la perspective d’élaboration de réglementations contraignantes imposées par les
conventions internationales, d’y incorporer deux groupes qui ne figuraient pas dans le document de Favrelière:
les mammifères marins (cétacés et pinnipèdes) et les tortues marines (superfamille des Chelonioidea).
Le groupe des poissons osseux compte le plus grand nombre d’espèces avec 756 espèces (figure 9), dont 475
explicitement signalées dans la ZEE haïtienne dans Fishbase, 262 signalées dans la zone d'inventaire dans la
base OBIS et 580 dans la base GBIF.
Le nombre d’espèces de poissons (raies et requins inclus) inventoriées est de 793 espèces dont 592 présentent
un intérêt commercial reconnu. Cet effectif total est supérieur à celui des 528 espèces répertoriées en Haïti par
Fishbase et très supérieur à celui fourni par OBIS qui n'en comptait que 281 en 2018 (figure 10) mais qui ne
recense que les espèces ayant donné lieu à des signalements. Les observations enregistrées auprès d’OBIS et
de GBIF visant à faire un inventaire de la biodiversité, indépendamment d’un intérêt commercial ou vivrier
est tributaire des institutions ou des scientifiques en capacité de faire des signalements détaillés, il est
sensiblement différent de celui qui a été réalisé dans l'étude des espèces d'intérêt pour la pêche.
�15
Après les poissons, les gastéropodes représentent le groupe le plus important avec 447 espèces, puis les
crustacés avec 248 espèces suivi de près par les bivalves avec 187 espèces; les céphalopodes ne comptent que
49 espèces.
Chez les poissons osseux, les familles présentant un intérêt pour la pêche les mieux représentées en nombres
d’espèces sont les Serranidae, les Carangidae, les Haemulidae, les Lutjanidae et les Labridae. Les familles des
Gobiidae et des Labrissomidae comptent également de nombreuses espèces mais celles-ci ne présentent pas
d'intérêt commercial hormis pour certaines d'entre elles, le commerce d'aquariophilie.
Cet inventaire de la faune marine d'Haïti compte 1 9358 espèces auxquelles s'ajoutent les 86 espèces de coraux
durs (Cf § 6.2.3 et l'inventaire détaillé, annexe I). Il a servi de base pour faire un bilan sur la biodiversité de la
faune marine qui s'établirait à 2 305 espèces, 24 genres et deux familles (Cf § 7.1 et annexe IV). Un des
premiers inventaires de la faune marine d'Haïti9, sinon le premier, a été réalisé sur l'île d'Hispaniola en 2005,
en distinguant chacun des deux pays, Haïti et la République dominicaine; il comptait 1 057 espèces (HerreraMoreno et Betancourt-Fernández, 2005).
Figure 9. Nombres d'espèces inventoriées par grands groupes faunistiques
Figure 10. Nombre d'espèces inventoriées dans OBIS par grands groupes faunistiques (le 2/07/2018)
8 Sur les 1 935 taxons pris en compte (figure 9), l'identification s'est arrêtée au genre pour 6 d'entre eux et à la famille pour l'un.
9 L'inventaire de 2005 ne prenait en compte ni les mammifères marins ni les tortues marines et ne fournissait pas de liste détaillée des
espèces.
�16
3.1.2
La flore marine
Les algues depuis des temps reculés étaient utilisées en Asie pour l'alimentation humaine et animale ou pour
des applications diverses (par exemple, médecine traditionnelle, cosmétique, etc.). Ces dernières décennies
leur valorisation a été étendue au reste du monde. Leur intérêt commercial incontestable a justifié d'étendre cet
inventaire des macroorganismes marins aux trois grands groupes d'algues valorisables: les algues vertes ou
Chlorophytes, les algues brunes ou Phaeophytes et les algues rouges ou Rhodophytes (Cervigón et al., 1993).
L'identification des espèces par leurs noms scientifiques a suivi les mêmes règles que l'inventaire faunistique,
mais en complément de la base WoRMS, l'inventaire des algues a fait appel à la base mondiale AlgaeBase
(Guiry et Guiry, 2019) spécifique à ce phylum et de fait actualisée dans certains cas à une fréquence plus
élevée.
Dans la littérature sur Haïti, les algues sont les parents pauvres des inventaires, elles sont rarement
mentionnées. Elles le sont par le terme générique «algues» (Favrelière, 2008) ou au niveau du genre à l’île de
la Navase, tris à quatre (Grace et al., 2000, Miller et Gerstner, 2002), puis 16 (Piniak et al., 2006). Plus
récemment une étude sur le potentiel en mariculture de la région des trois baies au nord d'Haïti, mentionne
quatre espèces d'algues rouges (Miller, 2018).
L'inventaire de notre étude s'est appuyé essentiellement sur les bases de données internationales de la
biodiversité OBIS et GBIF. Les espèces d'algues rouges sont les plus nombreuses, puis les algues vertes et
enfin les algues brunes (figure 11).
3.1.3
Les espèces commerciales
Les 2 181 espèces que compte cet inventaire de la faune et de la flore marine, au premier abord, ne présentent
pas toutes un grand intérêt commercial (Cf. § 2.2.5), d'autant que les sources d'information sur cette question
sont inégalement renseignées. Ces informations ne sont pas systématiquement renseignées dans Fishbase, elles
le sont très partiellement dans Sealifebase (invertébrés et flore); les informations de la FAO sont factuelles
reflétant les déclarations des pays aux périodes de leurs publications (FAO, 1978; Cervigón et al., 1993; FAO,
2002a, 2002b, 2002c) et depuis 2002 les consommations et les productions ont subi des modifications, sans
compter l'impact des déclarations incomplètes de la part de certains pays aux périodes couvertes par ces
inventaires mondiaux ou régionaux. Il en résulte un panorama largement en-deçà du potentiel valorisable des
ressources que représentent les espèces répertoriées (tableau 1).
Figure 11. Nombre d'espèces d'algues d'intérêt halieutique inventoriées en Haïti
�17
3.2
Sans intérêt
Commerciale
mineure
Commerciale
potentielle
Commerciale
Hautement
commerciale
Appât
Commerce
aquariophile
Pêche sportive,
récréative
Aquaculture
Total commercial
Total commercial
hors ornement
Poissons téléostéens
Requins
Raies
Tortues marines
Cétacés
Crevettes
Homards, langoustes,
cigales
Crabes
Autres crustacés
Céphalopodes
Gastéropodes
Bivalves
Oursins
Holothuries
Éponges
Algues vertes
Algues rouges
Algues brunes
Total inventaire
Vivrière
alimentaire
Tableau 1. Proportions des espèces commercialisables de chaque grand groupe faunistique et végétal et leurs
catégories de valorisation exprimées en pourcentage. Les valeurs absentes équivalent à des valeurs nulles
6%
7%
8%
11%
11
-
24%
21%
67%
8%
1%
17%
13%
57%
22%
83%
100%
56%
-
4%
4%
17%
33%
6%
11%
7%
3%
-
35%
4%
11%
17
13%
-
15%
54%
22%
-
2%
3%
-
74%
100%
100%
100%
100%
66%
67%
59%
100%
89%
100%
100%
56%
67%
1%
2%
4%
14%
5%
2%
5%
2%
1%
12%4%
5%
18%
1%
10%
12%
1%
11%
2%
16%
8%
18%
5%
38%
9%
14%
15%
14%
1%
2%
1%
2%
3%
1%
13%
6%
-2%
13%
1%
19%
3%
59%
10%
25%
5%
44%
0%
10%
15%
15%
38%
18%
3%
59%
10%
25%
5%
44%
0%
10%
15%
15%
33%
Le règne animal: distribution par biotopes, comportements et grands groupes
faunistiques
L'inventaire sera présenté par grands groupes systématiques et dans certains cas en distinguant des groupes
faunistiques rattachés à des appellations de produits commerciaux différenciés (par exemple, langoustes,
crevettes chez les crustacés, poulpes, calmars chez les céphalopodes). Lorsque les informations le permettent,
les espèces ou familles seront rattachées à un des peuplements précédemment définis.
Une cartographie de chacun de ces peuplements ou de ces groupes systématiques a été dressée à partir des
données géo référencées d'occurrence des espèces enregistrées dans les bases de données OBIS et GBIF ainsi
que, pour les vertébrés, VertNet. Le nombre d'occurrences enregistrées dans la ZEE d'Haïti sensu stricto s'étant
révélé faible, la zone cartographiée a été étendue aux ZEE voisines (Cuba, République dominicaine, Jamaïque
et Îles Caïmanes) afin de mieux appréhender les facteurs géographiques qui déterminent les distributions
spatiales. Le nombre d'occurrences indiqué dans la légende s'applique à cette zone d'étude (Cf. § 2.1). La limite
des eaux territoriales d'Haïti a été matérialisée car elle représente également la limite du rayon d'action de la
majorité des embarcations haïtiennes exerçant la pêche.
3.2.1
Les poissons
L'inventaire des poissons recouvre les poisons osseux ou téléostéens ou ostéichtyens et les poissons
cartilagineux ou sélaciens ou chondrichtyens ou élasmobranches (raies, requins).
Il sera présenté par peuplements tels qu'ils ont été définis plus haut. Le classement d’une espèce dans un groupe
déterminé est parfois arbitraire, une espèce pouvant partager plusieurs biotopes soit au cours des stades
successifs de son développement, soit pour un même stade en fonction du rythme circadien ou en lien avec sa
reproduction, soit qu’il s’agisse d'une espèce migratrice. Le peuplement retenu correspondra à l'habitat le plus
longuement fréquenté.
Afin de disposer d’un panorama de la diversité spécifique dans les eaux marines d’Haïti et leur répartition, les
espèces de poissons d’intérêt halieutique ont été regroupées par biotope et comportement (figure 12).
•
La famille des Serranidae compte le plus d'espèces qui sont majoritairement rattachées au milieu des
récifs coralliens et à un moindre degré au peuplement démersal de bas de plateau et de haut de talus.
�18
•
•
•
Les familles des Gobiidae et des Labrissomidae, au faible intérêt commercial direct en dehors du
commerce de poissons d'ornements, contribuent fortement à la biodiversité des récifs coralliens.
La famille des Carangidae s'ancre en majorité dans le peuplement des pélagiques néritiques.
Haemulidae, Labridae, Lutjanidae, Pomacentridae et Scaridae sont des composantes importantes des
récifs coralliens tout en étant des poissons prisés par les consommateurs.
Figure 12. Nombre d'espèces de poissons par peuplement des familles de poissons comptant le plus d'espèces
recensées en Haïti.
�19
3.2.1.1
Le peuplement de poissons bentho-démersaux côtiers (d'estuaires, de lagunes, de mangroves et de
rivage)
Il s’agit d’espèces benthopélagiques et démersales et d'espèces amphidromes soit diadromes, soit catadromes.
Les Mugilidae, Gerreidae et Gobiidae sont les familles les plus représentées avec 42 espèces sur les 147 que
compte ce peuplement (tableau 2).
Tableau 2. Principales familles de poissons bentho- démersaux côtiers (estuaires, lagune, mangroves, rivage). Le
peuplement compte 147 espèces dont 101 espèces commercialisables.
Nom français (FAO)
Sole
Banane
Anguille américaine
Athérine
Rombou
Carangue quatre
Brochet de mer,
crossie
Blennie
Cichlidé, Tilapia
Langues
Carpe
Pétote
Pastenague
Dormeur
Guinée machète,
Tarpon
Portugaise
Blanche
Nom créole
banane
Zangi
piskèt
bwochè
pwason ré
mile
Wodo, labou, fjol,
pave
Clingfish (En)
Gobie
Blennie
Mulet
Rouget
Poisson chauve-souris
Serpenton
Marionnette
Rombou, Cardeau
Guppy, Molly
Barbure
Demoiselle
Pastenague chupare
Poisson-scie
Tambour
Turbot de sable
Hamlet et savon
Sar salème
Requin-marteau
tiburo
Syngnathe,
Hippocampe
Poisson lézard
Compère
Raie
pwason re
Famille
(n esp comm/n esp)
Achiridae (2/2)
Albulidae (1/1)
Anguillidae (1/1)
Blenniidae (5/5)
Bothidae (3/3)
Carangidae (1/1)
Centropomidae (4/4)
Profondeur Côtier Plateau Talus Abysses Domaine Domaine
(m)
littoral
néritique océanique
0-20
0-84
0-464
0-50
0-110
0-36
0-28
Chaenopsidae (1/4)
Cichlidae (4/4)
Cynoglossidae (5/6)
Cyprinidae (1/1)
Cyprinodontidae (2/2)
Dactyloscopidae (0/3)
Dasyatidae (2/2)
Eleotridae (7/7)
Elopidae (1/1)
0-32
0-20
0-183
0-29
0-2
0-31
1-10
0-10
0-50
Ephippidae (1/1)
Gerreidae (10/11)
2-40
0-70
Gobiesocidae (0/8)
Gobiidae (9/23)
Labrisomidae (0/2)
Microdesmidae (0/2)
Moringuidae (0/1)
Mugilidae (10/10)
Mullidae (1/1)
Ogcocephalidae (0/1)
Ophichthidae (1/2)
Ophidiidae (2/2)
Opistognathidae (2/2)
Paralichthyidae (3/3)
Poeciliidae (7/7)
Polynemidae (2/2)
Pomacentridae (1/1)
Potamotrygonidae (1/1)
Pristidae (1/1)
Sciaenidae (1/1)
Scophthalmidae (1/1)
Serranidae (0/2)
Sparidae (2/2)
Sphyrnidae (1/1)
0-8
0-82
0-30
3-82
1-30
0-125
20-60
0-70
0-186
0-75
0-44
0-183
0-3
0-55
0-3
1-25
0-88
1-50
1-110
0-15
1-87
0-80
Syngnathidae (1/6)
0-72
Synodontidae (0/1)
Tetraodontidae (3/4)
Urotrigonidae (1/1)
0-120
0-48
1-160
�20
Les Gerreidae (photo 1) se rencontrent dans les eaux peu profondes, en estuaire et pour la plupart de ces onze
espèces, aux abords des mangroves et dans les lagunes. Leur régime est davantage orienté sur le macrobenthos
(vers polychètes, crustacés, mollusques), leur niveau trophique est de 2,20 à 3,50: leurs principaux prédateurs
sont les barracudas, les mérous et le tarpon. Leur vulnérabilité est faible à moyenne, de 15 à 36 pour cent.
Une espèce de Carangidae fréquente ce biotope: le Pompaneau guatie, Trachinotus goodei, ou Carangue quatre
de Martinique et de Guadeloupe. De taille moyenne (50 cm au maximum pour à peine 600 g), l'espèce se
rencontre dans les eaux peu profondes des plages de sable, se nourrissant de crustacés, de vers polychètes, de
mollusques, de poissons mais aussi d’insectes. Son niveau trophique est de 4,3 et sa vulnérabilité de 32 pour
cent.
Ces espèces de rivage comptent comme prédateur la Guinée machète, parfois appelée tarpon, Elops saurus, un
Elopidae dont la taille peut atteindre 1 m pour 10 kg, prisé par la pêche sportive. Il est omnivore se nourrissant
d’insectes, de stomatopodes (squilles), de crabes, de crevettes, de calmars et de poissons; son niveau trophique
est de 3,5 et sa vulnérabilité de 35 pour cent.
Font également partie de ce groupe quatre espèces de brochet de la famille des Centropomidae. Centropomus
undecimalis est l'espèce la plus grande, sa taille atteint 1,40 m pour 24,3 kg. Ces prédateurs se nourrissent de
zoobenthos, de crustacés benthiques, de poissons démersaux et de petits pélagiques comme les Engraulidae et
les Clupeidae, leur niveau trophique est élevé, entre 4,0 et 4,2. Leur vulnérabilité de 27 à 55 pour cent.
La banane, Albula vulpes, (photo 2) est la seule espèce d'Albulidae signalée sur Haïti et dans la région. C'est
une espèce commune, de couleur argentée, de forme allongée, d'une longueur maximum de 104 cm et d'un
poids pouvant atteindre 10 kg, elle se rencontre de la côte aux fonds de 84 m souvent en banc. Elle est capturée
à l'épervier, à la seine ou au filet maillant. C'est une espèce d'intérêt commercial pour un marché local mais
elle a été signalée dans des cas de ciguatera. Elle se nourrit sur le fond de zoobenthos, de vers, de crevettes et
de petits poissons mais également de céphalopodes; son niveau trophique est de 3,73 et sa vulnérabilité de 43
pour cent. L'espèce est considérée comme quasi-menacée (statut NT de la liste rouge de l'IUCN).
Les Sparidae sont représentés par deux espèces d'intérêt commercial: le Daubenet bélier, Calamus penna,
(photo 3) et le Sar salème, Lagodon rhomboides. Contrairement aux autres espèces de cette famille, inféodées
aux récifs coralliens, ces deux Sparidae se rencontrent jusqu'à 87 m de profondeur sur des fonds meubles
(sable, vase) et sur des roches, occasionnellement sur des herbiers. Leur taille maximale est de 40 à 46 cm.
Leur régime alimentaire est constitué de zoobenthos, d'éponges et de zooplancton. Leur niveau trophique est
de 4,4 et leur vulnérabilité de 26 et 34 pour cent.
Les rombous, ou soles, des Bothidae, sont représentés par trois espèces: le rombou tacheté, Bothus maculiferus,
le rombou ocellé, B. ocellatus, et le rombou noir, B. robinsi,(photo 4). Ce sont des espèces de haute valeur
marchande, prisées des consommateurs et recherchées par les restaurateurs. Leur taille maximale est située
entre 18 et 25 cm. Elles se rencontrent dans les 40 premiers mètres de profondeur mais deux d'entre elles
peuvent se rencontrer jusqu'à 100 à 110 m. Leur niveau trophique est entre 3,7 et 3,8. Leur vulnérabilité est de
31 à 35 pour cent.
Les Cynoglossidae, autres poissons plats, de forme plus allongée, sont présents par six espèces dont cinq
d'intérêt commercial. Elles se rencontrent sur des fonds meubles (sable, vase) de la côte à 183 m de profondeur
pour l'espèce la plus profonde, Symphurus plagiusa (photo 5). Leur régime est constitué de copépodes,
d'amphipodes, de vers et de crustacés benthiques; leur niveau trophique est entre 3,1 et 3,6. Leur vulnérabilité
est faible à moyenne de 10 à 32 pour cent.
�21
Photo 1. Eucinostomus havana © de Mérona B. (IRD)
Photo 2. Albula vulpes © de Mérona B. (IRD)
Photo 3. Calamus penna © de Mérona B. (IRD)
Photo 4. Bothus robinsi © de Mérona B. (IRD)
Photo 5. Symphurus plagusia © de Mérona B. (IRD)
Les hippocampes, Syngnathidae, comptent six espèces dans ce peuplement. Ils se rencontrent de la côte
jusqu'aux fonds de 72 m. Leur régime est constitué de zooplancton, de vers et crustacé benthiques. Leur niveau
trophique est de 3,2 à 3,3. Leur reproduction présente la particularité que l'incubation des œufs se fait dans une
poche ventrale du mâle. Leur vulnérabilité est de 10 à 22 pour cent. Ces espèces sont victimes de la surpêche
et de la dégradation de leurs habitats. Bien qu'une seule espèce de ces six soit indiquée d'intérêt commercial,
ces espèces sont connues pour être prisées sur les marchés asiatiques. La CITES agit pour faire interdire le
commerce de toutes les espèces d'hippocampes et l'IUCN lui a emboité le pas lors de son congrès en 2020 à
Marseille.
Parmi les espèces de ce peuplement, figurent 15 espèces amphidromes appartenant à cinq familles;
•
L'anguille Anguilla rostrata est rattachée à ce peuplement bien qu'elle puisse se rencontrer jusqu'à
484 m de profondeur. Les adultes vivent en eau douce ou en eau saumâtre dans les estuaires. C'est une
espèce nocturne au régime varié, se nourrissant de crustacés benthiques, de mollusques bivalves, de
gastéropodes, de vers, de poissons et d'insectes. Son niveau trophique est de 3,83. L'espèce est
catadrome: les anguilles matures migrent en automne vers les eaux marines et gagnent la mer des
Sargasses où elles frayent en fin d'hiver- début de printemps. Les reproducteurs meurent peu
longtemps après; l'anguille n'a qu'une seule reproduction tout le long de sa vie. Les œufs donnent
naissance à des larves leptocéphales qui se déplacent passivement par les courants. Lorsqu'elles
arrivent sur le plateau continental, elles se métamorphosent en anguilles juvéniles ou civelles et
migrent vers les eaux intérieures. Lors de leur migration, les civelles font l'objet d'une pêche
importante du fait de leur haute valeur marchande notamment sur le marché européen (Espagne) et
asiatique. Sa Vulnérabilité est très élevée, 83 pour cent; l'espèce figure dans la liste rouge de l'IUCN
avec le statut d'espèce en danger (EN).
•
Les Cichlidae comptent deux espèces de tilapias, Oreochromis mossambicus et O. niloticus, et deux
espèces de cichlidés, Nandopsis haitiensis et N. tetracanthus. Ces espèces diadromes se rencontrent
surtout en eau- douce mais peuvent également se rencontrer dans les marais côtiers saumâtres et les
lagunes. Les tilapias sont les plus grands, d'une taille maximale de 50 à 60 cm et un poids maximal de
3,3 à 4,3 kg. Ils présentent un intérêt pour la pêche et l'aquaculture. Majoritairement herbivores, leur
�22
niveau trophique est faible, se situant entre 2,0 et 2,2. Les cichlidés sont de plus petite taille, entre 21,5
et 24 cm de longueur maximale. Leur régime alimentaire constitué d'algues mais aussi de crustacés et
de mollusques benthiques, d'insectes et de poissons leur confère un niveau trophique plus élevé, situé
entre 2,9 et 3,7. Ils présentent un intérêt pour le commerce de poissons d'aquarium d'eau-douce.
•
Les Poeciliidae comptent sept espèces diadromes. Ce sont les guppies et les mollies, très répandus en
aquariophilie d'eau douce. Ces poissons de petites tailles, de 6 à 10 cm de longueur maximale, se
rencontrent parfois dans les estuaires et dans les chenaux côtiers. Leur régime est constitué de détritus,
de vers, d'insectes et de crustacés benthiques et leur niveau trophique est compris entre 2,9 et 3,2.
L'espèce Gambusia dominicensis est inscrite sur la liste rouge de l'IUCN comme en danger (EN).
•
Les trois dernières espèces diadromes sont la carpe commune, Cyprinus carpio, un Cyprinidae, et les
Pétotes, Cyprinodon bondi, et C. variegatus, deux Cyprinodontidae. La carpe peut se rencontrer en
eaux saumâtres dans les estuaires; sa taille maximale est de 120 cm pour un poids de 40 kg. Elle
présente un intérêt pour la pêche, l'aquaculture et le commerce aquariophile. Les pétotes sont de petite
taille, 10 cm au maximum, et présentent un intérêt pour le commerce aquariophile ou comme appât.
Outre ces espèces d'intérêt commercial, se rencontrent des vives et des gobies (Blenniidae, Gobiesocidae,
Gobiidae) de peu d'intérêt pour la pêche comme produit alimentaire mais pour certaines présentant un réel
intérêt pour le commerce aquariophile. L'espèce Coryphopterus thrix, Gobiidae, est inscrite comme vulnérable
(VU) dans la liste rouge de l'IUCN.
Enfin six espèces d'élasmobranches font partie de ce peuplement: cinq espèces batoïdes et un requin.
Dans ce biotope se rencontrent cinq espèces de raies dont deux pastenagues de la famille des Dasyatidae, la
pastenague chupare de la famille des Potamotrygonidae, la raie ronde, de la famille des Urotrigonidae et le
poisson-scie, de la famille des Pristidae. Les raies et les pastenagues sont des espèces benthiques se nourrissant
de crustacés benthiques, de bivalves et de poissons démersaux. Leur niveau trophique est de 3,6 à 3,8. Ce sont
des espèces ovovivipares. Un de leurs prédateurs est le requin bouledogue (Carcharhinus leucas). La
vulnérabilité des Dasyatidae est de 67 à 68 pour cent, mais celle de la pastenague chupare est très élevée, de
90 pour cent. La raie ronde, Urobatis jamaicensis, de la famille des Urotrigonidae, est une raie de taille
modeste, d’une envergure maximale de 76 cm, elle se rencontre sur les fonds des plages sableuses jusqu'à une
profondeur de 25 m. Elle se nourrit de vers, de bivalves, de crevettes et de petits poissons. Son niveau trophique
est de 3,6. C’est une proie du mérou rayé. Elle est ovovivipare. Sa vulnérabilité est faible à modérée, de 31
pour cent. Son aiguillon caudal peut infliger de graves blessures.
Figure 13. Cartographie sur l'ensemble de la zone d'étude des occurrences de 140 des 147 espèces du peuplement
de poissons bentho-démersaux côtiers de la zone d'inventaire.
Bathymétrie: GEBCO; 80 286 occurrences: OBIS, GBIF, VertNet du 24/06/2021.
La présence du poisson-scie a été signalée entre l'Île-de-la-Tortue et Port-de-Paix dans la base OBIS; le
signalement n'est pas daté. Cette espèce a été décimée par les pêches au filet maillant dans la plupart des
régions où elle était présente. Encore fréquente en Guyane au début des années 1980s, elle y a complétement
�23
disparu. Elle reste présente en Floride et en Louisiane grâce à une interdiction stricte des captures et la mise
en place d'aires marines protégées. L'espèce est inscrite sur la liste rouge de l'IUCN comme en danger critique.
Elle se rencontre près des côtes, en estuaire, sur des fonds meubles. Sa taille maximale est de 150 cm pour un
poids de 11 kg. Son régime est constitué de macro-algues, de crustacés, de céphalopodes et de poissons. Son
niveau trophique est de 3,9 et sa vulnérabilité est de 50 pour cent. L'espèce est le plus probablement absente
aujourd'hui en Haïti. Le requin marteau tiburo, Sphyrna tiburo, se rencontre de la côte jusqu'à 80 m et dans les
estuaires, sur des fonds de sable ou de vase. Il est également fréquent sur les récifs coralliens. C'est le plus
côtier et le plus petit des quatre requins marteau présents dans la zone, les 3 autres espèces sont pélagiques
océaniques. Sa taille maximale est de 150 cm pour un poids de 10,8 kg. Il se nourrit de macro-algues, de
crustacés, de céphalopodes et de poissons. Son niveau trophique est de 3,9 et sa vulnérabilité de 50 pour cent.
Il est vivipare avec 6 à 9 petits par portée. Les jeunes mesurent de 35 à 40 cm à la naissance.
La distribution spatiale montre un adossement marqué de ce peuplement au trait de côte (figure 13).
3.2.1.2
Le peuplement de poissons pélagiques côtiers (d'estuaires, de lagunes, de mangroves et de rivage)
Les Anchois et les sardines regroupent plus de la moitié des espèces de ce peuplement (tableau 3).
Tableau 3. Principales familles de poissons pélagiques côtiers (d'estuaires, de lagunes, de mangroves et de rivage).
Le peuplement compte 34 espèces toutes commercialisables.
Nom français (FAO)
Nom créole
Athérine
Orphie, Aiguillette
Sardine, Harengule,
Alose
Anchois
Balaou
Tarpon
poisson-papier dentu
jofi, balaou
sadin, haran
Famille
(n esp comm/n esp)
Atherinidae (2/2)
Atherinopsidae (1/1)
Belonidae (4/4)
Clupeidae (8/8)
janchwa
Engraulidae (12/12)
balaou
Hemiramphidae (5/5)
grand-écaille, Gran kal Megalopidae (1/1)
Pristigasteridae (1/1)
Profondeur Côtier Plateau Talus Abysses Domaine Domaine
littoral
néritique océanique
0-30
0-5
0-5
0-60
0-70
0-5
0-30
0-40
Les anchois, Engraulidae, se nourrissent essentiellement de zooplancton et de phytoplancton, leur niveau
trophique se situe entre 2,1 et 3,4. Leur vulnérabilité est de 13 à 44 pour cent.
Le régime alimentaire des Clupeidae est composé de zooplancton, d’invertébrés, de crustacés benthiques et de
jeunes poissons et leur niveau trophique est de 3,1 à 4,5. Leur vulnérabilité est de 10 à 24 pour cent. Les
principaux prédateurs de ces espèces sont les oiseaux (sternes et anous) mais également les orphies, le thazard,
des vivaneaux et des mérous qui pénètrent dans ce milieu pour s’y nourrir.
Les marlins et les daurades coryphènes sont des prédateurs de la sardinelle du Brésil, Sardinella brasiliensis
(photo 6), Clupeidae dont la distribution s’étend plus au large. L'harengule camomille, Harengula humeralis,
est signalée vénéneuse au Venezuela (Cervigón et al., 1993).
Photo 6. Sardinella brasiliensis © de Mérona B. (IRD
Photo 7. Hemiramphus balao © de Mérona B. (IRD
�24
L'alose à museau court, Clupanodon thrissa, a été signalée pour la ciguatera. L'anchois Anchoa choerostoma
figure comme «en danger» (EN) sur la liste rouge de l'IUCN.
Le Balaou, Hemiramphus balao, (photo 7) est un Hemiramphidae; de taille modeste (maximum de 40 cm) son
régime est constitué de plancton, d'invertébrés et de petits poissons; son niveau trophique est de 3,9. Sa
vulnérabilité est de 18 pour cent.
Quatre autres espèces d'Hemiramphidae appartiennent à ce peuplement dont H. brasiliensis et H. unifasciatus
qui ont des régimes plus herbivores et leurs niveaux trophiques respectifs sont de 2,0 et 2,3. La vulnérabilité
des Hemiramphidae est de 15 à 32 pour cent.
Les Atherinidae constituent la « pisquette »; ce sont des poissons de 7 à 10 cm de long, leur régime est constitué
de plantes (algues) et de zoobenthos en particulier de vers polychètes et de crevettes. Leur niveau trophique
est de 3,0 à 3,5. Ces espèces se rencontrent en grands bancs au bord des plages. Leur vulnérabilité est de 27
pour cent. Ils sont capturés par des seines de plage de très petit maillage (inférieur à 10 mm).
Les deux dernières familles regroupent des prédateurs: des orphies et le tarpon.
Les orphies, de la famille des Belonidae, comptent dans ce groupe quatre espèces. Elles se rencontrent très
près du rivage, sur des fonds de moins de 3 m. L’orphie Ablennes hians peut atteindre une longueur de 140 cm.
Elles se nourrissent principalement de Clupeidae et d’Engraulidae, leur niveau trophique est de 4,5. Leur
vulnérabilité est de 38 à 58 pour cent. Leurs prédateurs sont les oiseaux marins (sternes et anous) et les
barracudas.
Le tarpon d’Atlantique ou grand-écaille, Megalops atlanticus, se rencontre de la côte jusqu’aux fonds de 30 m.
C'est une espèce euryhaline, tolérant des eaux douces et des eaux de salinités supérieures à 45‰. L'espèce est
également tolérante aux eaux pauvres en oxygène, dotée d'une vessie natatoire très vascularisée qui fonctionne
comme un organe respiratoire, c'est une des rares espèces de poissons à venir respirer en surface. Ce poisson
prisé de la pêche sportive peut atteindre une longueur de 2,50 m pour un poids de 161 kg et sa longévité est
estimée supérieure à 50 ans. Il se nourrit de sardines, d’anchois, de mulets et de crustacés benthiques; son
niveau trophique est élevé, de 4,5. La ponte a lieu en mer de juin à août dans le golfe du Mexique, d’avril à
mai en Colombie. Sa fécondité est estimée à 12 millions d’œufs, les larves leptocéphales gagnent la côte puis
se développent en eaux saumâtres. Les jeunes se développent en lagune ou dans des marais côtiers peu
profonds et migrent en mer à la taille de 40 cm. Sa vulnérabilité est très élevée, de 76 pour cent. L’espèce est
inscrite sur la liste rouge de l’IUCN comme vulnérable. De rares cas de ciguatera ont été signalés avec cette
espèce. La distribution spatiale des occurrences des espèces de ce peuplement est beaucoup plus dispersée que
celle des espèces du peuplement précédent (figure 14).
Figure 14. Cartographie sur l'ensemble de la zone d'étude des occurrences de 32 des 34 espèces du peuplement de
poissons pélagiques côtiers de la zone d'inventaire.
Bathymétrie: GEBCO; 13 105 occurrences, OBIS, GBIF, VertNet du 24/06/2021.
�25
3.2.1.3
Le peuplement des poissons des récifs coralliens
Ce groupe réunit le plus grand nombre d'espèces: 260 réparties dans 45 familles (tableau 4). Toutes ces espèces
ne présentent pas un intérêt commercial alimentaire. Sur les 45 familles inventoriées dans ce groupe, 10 d’entre
elles sont typiquement coralliennes et rassemblent la moitié des espèces: les mérous (Serranidae), les blennies
(Labrisomidae), les chauffets (Pomacentridae), les cardinaux (Apogonidae), les gorettes (Haemulidae), les
labres (Labridae), les perroquets (Scaridae), les vivaneaux (Lutjanidae), les marignons (Holocentridae) et les
poissons-papillons (Chaetodontidae). Mises à part les Labrisomidae, les Apogonidae et les Chaetodontidae
dont certaines espèces alimentent le marché des poissons d'ornement, les espèces des sept autres familles
présentent un intérêt commercial très important. D'autres espèces emblématiques des milieux coralliens
figurent dans ce peuplement. Elles se caractérisent par leurs colorations vives comme les demoiselles
(Pomacanthidae), les beauclaires (Priacanthidae), les coffres (Ostraciidae) et les gobies (Gobiidae) qui
comptent ici 20 espèces mais des espèces de la même famille participent à deux autres peuplements.
Tableau 4. Principales familles de poissons de récifs coralliens. Le peuplement compte 260 espèces dont 199
commercialisables.
Nom français (FAO)
Nom créole
Chirurgien
Sijen, Soujen
Antennaire
Cardinaux
Trompette
Baliste
Aiguille
Blennie
Rombou lune
Brotules
Requin
Vive
Poisson papillon
Poisson crapaud
Trompèt
bousse
jofi
sôl
reken
Grimpeur
Porc-épines
Gobie
Gorette
crocro gueule rouge, palriot,
caco gris, kwoko
Marignon
Calicagère
Labre
Blennie
Vivaneau
kadino
bata lake, kaptenn
vivano , kola, ajante, sad
Bourse
Murène
Serpentine
Brotule
Marionnette
Coffre
Demoiselle
Chauffet, castagnole
Beauclaire
Perroquet
Évêque
Rascasse (Lionfish)
Mérou
Daubenet
Hippocampe
Compère
jwif, lougawou
pawoket, boutou, potpot
pirampi, grandyèl, nèg
fenfen, vièj
djol pave
Famille
(n esp comm/n esp)
Acanthuridae (5/5)
Anomalopidae (1/1)
Antennariidae (2/3)
Apogonidae (2/13)
Aulostomidae (1/1)
Balistidae (5/5)
Belonidae (2/2)
Blenniidae (1/1)
Bothidae (1/1)
Bythitidae (2/8)
Carcharhinidae (3/3)
Chaenopsidae (4/13)
Chaetodontidae (6/6)
Chlopsidae (0/2)
Cirrhitidae (1/1)
Diodontidae (4/4)
Gobiesocidae (0/1)
Gobiidae (16/20)
Grammatidae (3/3)
Haemulidae (13/13)
Profondeur Côtier Plateau Talus Abysses Domaine Domaine
littoral
néritique océanique
0-100
25-200
0-73
0-262
2-50
0-275
0-13
0-70
0-120
0-55
0-92
0-109
0-250
0-160
1-46
0-200
8-20
0-130
1-180
0-110
Holocentridae (5/8)
Kyphosidae (2/2)
Labridae (13/13)
Labrisomidae (6/18)
Lutjanidae (10/10)
Microdesmidae (0/1)
Monacanthidae (5/5)
Muraenidae (2/2)
Ophichthidae (1/1)
Ophidiidae (1/1)
Opistognathidae (1/1)
Ostraciidae (5/5)
Pempheridae (1/1)
Pomacanthidae (5/5)
Pomacentridae (12/14)
Priacanthidae (2/2)
Scaridae (13/13)
Sciaenidae (3/3)
Scorpaenidae (2/3)
Serranidae (26/31)
0-550
0-40
0-275
0-70
0-400
0-30
0-150
0-230
0-9
3-15
2-50
0-80
2-30
1-170
0-152
3-300
0-110
2-230
0-185
0-402
Sparidae (6/6)
Symphysanodontidae
(0/1)
Syngnathidae (2/4)
Tetraodontidae (1/1)
Tripterygiidae (3/3)
0-200
101-476
0-375
1-85
0-25
�26
Les mérous sont des espèces de tailles diverses; leur taille maximale est comprise entre 13 et 15 cm chez les
hamlets du genre Hypoplectrus; elle peut atteindre 2,50 m chez le mérou géant, Epinephelus itajara, pour un
poids maximum de 455 kg. Ce sont des espèces le plus souvent territoriales, solitaires, elles se cachent le jour
dans des anfractuosités et chassent la nuit à l’exception du mérou rayé, Epinephelus striatus, diurne et qui peut
se rassembler parfois en bancs importants en période de reproduction. Le régime des mérous se compose de
poissons, d’invertébrés benthiques (crevettes, crabes), de vers polychètes, de céphalopodes, voire de jeunes
tortues marines chez le mérou géant. Leur niveau trophique s’échelonne de 3,2 à 4,5.
Les mérous sont hermaphrodites et la protogynie10 y est fréquente (Heemstra et Randall, 1993b), ainsi chez la
badèche tigre, Mycteroperca tigris, tous les individus de moins de 37 cm sont femelles et tous ceux de plus de
45 cm sont mâles; chez le mérou rouge, Epinephelus morio, dont la longévité est estimée à 25 ans, les femelles
se transforment en mâles entre 7 et 14 ans; chez le coné ouatalibi, Cephalopholis fulva, dont la longueur
maximale observée est de 41 cm, les femelles se transforment en mâles à partir de 20 cm.
Les espèces protogynes comme le sont la plupart des Serranidae, se sont révélées être plus vulnérables à la
surpêche car le sexe ratio peut rapidement être déséquilibré, les mâles plus âgés et plus grands étant plus
vulnérables à certains engins de pêche (Harris et Collins, 2000; Huntsman et Schaaf, 1994).
Bien que solitaires, certaines espèces de mérous se rassemblent en période de ponte (C. fulva, M. bonaci, etc.)
constituant des agrégations pouvant compter jusqu'à 50 000 à 100 000 individus chez le mérou rayé,
E. striatus. Ce comportement confère à la population de l'espèce une grande vulnérabilité faisant alors l'objet
de pêches ciblées lors des périodes de reproduction, ce qui devra être pris en compte dans les mesures de
gestion de la pêche à des fins de durabilité (Sadovy de Mitcheson, 2016; Coleman et al., 2000).
Les hamlets, du genre Hypoplectrus, au nombre de neuf espèces, sont des hermaphrodites synchrones (Barlow,
1975); chacun des deux sexes pouvant s'exprimer. En outre, chez ces espèces des cas d'hybridation ont pu être
observés en milieu naturel (Domeier, 1994). Ces espèces sont sensibles aux conditions environnementales,
ainsi une étude menée à Porto Rico a montré que la population d'hamlet queue jaune, Hypoplectrus chlorurus,
a vu sa population augmenter de plus de 30 pour cent entre 2000 et 2017 en raison d'une augmentation de la
turbidité des eaux côtières, condition préférentielle à cette espèce (Hench et al., 2017). Les populations de
mérous sont fragiles, leur vulnérabilité est estimée entre 11 pour cent chez les espèces les plus résistantes et
70 pour cent chez les espèces les plus vulnérables. Six espèces sont inscrites sur la liste rouge des espèces
menacées de l’IUCN en 2020. Le mérou rayé, E. striatus, est considéré comme en danger critique; Le mérou
géant, E. itajara, le mérou rouge, E. morio, et la badèche gueule jaune, M. interstitialis, comme vulnérables;
la badèche Bonaci, M. bonaci, et la badèche de roche, M. venenosa, comme quasi-menacées. Des cas de
ciguatera impliquant 11 espèces de Serranidae de ce peuplement sur les 31 qui y sont répertoriées, ont été
signalés et quatre espèces sont considérées comme présentant des risques élevés. Le mérou rouge, E. morio,
présente un autre risque d'intoxication: il est signalé comme pouvant ingérer le dinoflagellé Karenia brevis
produisant des brévétoxines qui sont des neurotoxines pouvant en théorie affecter le consommateur en
concentrations élevées mais qui, en pratique, affectent surtout les poissons.
La famille des Haemulidae regroupe 12 espèces de gorettes du genre Haemulon et le lippu rondeau du genre
Anisotremus. Ce sont des espèces de tailles moyennes, leurs tailles maximales allant de 23 à 79 cm pour un
poids maximum de 7,1 kg. Elles sont le plus souvent en bancs, sur des fonds de moins de 60 m à l’exception
de la gorette rayée, H. striatum, plus profonde qui peut se rencontrer sur les fonds de 100 m. La plupart de ces
espèces sont nocturnes se nourrissant de zoobenthos, d'échinodermes, de vers polychètes, de bivalves, de
crabes, de crustacés benthiques et de petits poissons. Les sexes sont séparés avec monogamie. La période de
ponte dure de 2 à 6 mois autour de juin dans la région des Caraïbes et du golfe du Mexique.
La gorette margate, H. album, fait exception, sa ponte a lieu toute l’année dans les eaux cubaines. Les œufs
sont pélagiques. Les juvéniles se développent dans les herbiers de Thalassia testudinum. Leur niveau trophique
est compris entre 2,2 et 4,4. Leur vulnérabilité est faible à moyenne, s’échelonnant de 27 à 45 pour cent à
l’exception de la gorette blanche ou croco, H. plumierii, (photo 8) où elle est de 62 pour cent. Sur les 13 espèces
d'Haemulidae, sept pourraient présenter des risques de ciguatera.
10 Chez une espèce protogyne, les gonades femelles sont les premières à être fonctionnelles, les gonades mâles le seront plus tard.
�27
Photo 8. Haemulon plumierii © Vendeville P./IfremerIRD)
Photo 9. Lutjanus synagris © de Mérona B. (IRD)
Photo 10. Holocentrus rufus © de Mérona B.
(IRD)
Photo 11. Myripristis jacobus © de Mérona B.
(IRD)
Photo 12. Priacanthus arenatus © de Mérona B. (IRD)
Photo 13. Chaetodon ocellatus © de Mérona B. (IRD)
Photo 14. Chaetodon sedentarius © de Mérona B.
(IRD)
Photo 15. Chilomecterus antillarum © de Mérona B.
(IRD)
Photo 16. Diodon hystrix © de Mérona B. (IRD)
Photo 17. Acanthostracion quadricornis © de Mérona
B. (IRD)
�28
Les vivaneaux, Lutjanidae, sont des espèces inféodées aux fonds durs. Parmi elles, une dizaine d’espèces ont
été identifiées comme ayant une relation plus étroite avec les milieux coralliens. Les vivaneaux se rencontrent
jusqu’à 400 m de profondeur, souvent en fortes concentrations notamment en période de reproduction à
l’exception du vivaneau chien, Lutjanus jocu, solitaire et territorial. Leurs tailles maximales s’échelonnent de
16 à 160 cm pour un poids maximal de 57 kg. Ils sont pour la plupart nocturnes, leur régime est composé de
vers polychètes, de tuniciers, d’invertébrés, de mollusques divers dont les gastéropodes, de crabes, de crevettes,
de céphalopodes, de poissons; leur niveau trophique est de 3,1 à 4,4. Leurs principaux prédateurs sont les
murènes, les barracudas, les carangues, les mérous et les thazards. La vulnérabilité de leurs populations
s’échelonne de 32 à 68 pour cent. Le vivaneau ambigu, L. ambiguus, a longtemps été considéré comme une
espèce à part entière; les spécimens capturés étaient rares et localisés au sud de la Floride et plus tard à Cuba
(Allen, 1985; Cervigón et al., 1993). Une étude tend à montrer qu'il s'agirait d'un hybride sauvage du vivaneau
rayé, L. synagris, et du vivaneau queue jaune, Ocyurus chrysurus (Loftus, 1992). Une a utre étude a montré
que l'hybride de ces deux espèces de vivaneau obtenu en laboratoire présentait les mêmes caractéristiques que
L. ambiguus (Domeier et Clarke, 1992)
Trois de ces 10 espèces figurent sur la liste rouge de l’IUCN en 2020: la population de vivaneau cubéra, L.
cyanopterus, est considérée comme vulnérable et les populations du vivaneau sorbe, L. analis, et du vivaneau
gazou, L. synagris (photo 9), comme quasi menacées. Neuf des 10 espèces présentent des risques de Ciguatera
avec pour cinq d’entre elles, un risque plus élevé.
Les labres, Labridae, sont des espèces inféodées au milieu corallien, 13 espèces sont signalées en Haïti et
inféodées aux fonds coralliens, deux autres espèces sont rattachées aux herbiers, toutes présentent un intérêt
commercial. Elles se rencontrent entre 7 et 120 m de profondeur à l'exception du labre à bandes vertes,
Halichoeres bathyphilus, qui peut être rencontré jusqu'à 275 m de profondeur. Lorsque les labres partagent
d’autres milieux, il s’agit essentiellement d’herbiers ou de fonds sableux. Ce sont des espèces de tailles
moyennes, avec des tailles maximums de 13 à 91 cm pour un poids maximum de 11 kg. Leur régime se
compose de zoobenthos, de méduses, d’étoiles de mer, de tuniciers, de détritus, de larves d’invertébrés,
d’oursins, d’ophiures, de petits bivalves, de gastéropodes, de crabes, de crustacés benthiques et de petits
poissons; leur niveau trophique se situe entre 3,3 et 4,2. La majorité de ces espèces sont hermaphrodites
protogynes (Warner et Robertson, 1978). La ponte a lieu de jour, toute l’année. Leur vulnérabilité se situe pour
la plupart entre 20 et 48 pour cent. Le labre capitaine, Lachnolaimus maximus, présente une vulnérabilité forte
à très forte, de 67 pour cent; c’est la seule des 13 espèces figurant sur la liste rouge de l’IUCN, sa population
étant considérée comme vulnérable. Trois espèces présentent des risques de ciguatera, dont deux pour des cas
fréquents. Leurs principaux prédateurs sont la trompette, Aulostomus maculatus, les mérous, les vivaneaux,
les carangues et les thazards.
La famille des perroquets, Scaridae, compte 13 espèces dans ce groupe. On les rencontre jusqu’à 110 m de
profondeur. Leur taille maximale va de 28 à 120 cm pour un poids maximal de 20 kg. Ces espèces sont
herbivores, elles se nourrissent de phytoplancton, de plantes, d’algues et de coraux morts. Elles jouent un rôle
important dans le maintien de la santé des coraux en procédant à leur nettoyage des algues qui réduisent leur
accès à la lumière. Leur niveau trophique est de 2,0. Leurs principaux prédateurs sont les carangues, les
vivaneaux, les mérous. Toutes ces espèces présentent un hermaphrodisme protogyne prenant parfois la forme
de protogynie diandrique11, avec des mâles primaires issus des stades juvéniles et des mâles secondaires issus
de la transformation de femelle en mâle (Robertson et Warner, 1978), comme chez le perroquet rayé, Scarus
iseri. Chez plusieurs espèces l’hermaphrodisme séquentiel a pour conséquence la constitution de groupes
permanents formés d’un seul mâle entouré par un harem de jeunes femelles. La vulnérabilité de ces espèces
est faible à modérée, 12 à 43 pour cent. Le perroquet arc-en-ciel, Scarus guacamaia, est inscrit comme quasi
menacé par l’IUCN. La majorité de ces espèces présentent des risques de ciguatera (9/13), mais ces risques
sont moins élevés que chez les vivaneaux ou chez les mérous.
La famille des marignons et des cardinaux, Holocentridae (photo 10 et photo 11), est une famille caractéristique
des milieux coralliens. Elle réunit huit espèces qui sont sur les fonds de 0 à 550 m. Leur taille maximale varie
de 15 à 61 cm. Ce sont des espèces nocturnes agrégatives qui se cachent le jour dans les anfractuosités des
récifs coralliens et qui vont se nourrir la nuit sur les fonds sableux, les herbiers ou sur les fonds rocheux plus
profonds. Leur régime est constitué de zoobenthos, d'oursins, de zoanthaires, de mollusques dont les
11 Chez certains individus les gonades mâles sont les premières à être fonctionnelles (mâles primaires) alors que chez la majorité des
individus, les gonades femelles s'expriment d'abord, puis les gonades mâles s'expriment (mâles secondaires).
�29
gastéropodes, de crustacés benthiques dont les crabes et les crevettes, de juvéniles de poissons. Leur niveau
trophique varie de 3,1 à 3,6. Leurs principaux prédateurs sont la trompette, Aulostomus maculatus, les
vivaneaux, les mérous, les oiseaux marins, les daurades coryphènes.
Ces espèces présentent une vulnérabilité faible à modérée, de 12 à 35 pour cent. Seules trois espèces présentent
des risques modérés de ciguatera.
La famille des Sparidae est représentée par six espèces: les rondeaux, les sars et les daubenets. De tailles
moyennes, leur taille maximale varie de 30 à 76 cm pour un poids maximal de 10,6 kg. On les rencontre sur
des fonds de 0 à 85 m et jusqu’à 200 m pour le plus profond, le daubenet trembleur, Calamus bajonado. Ces
espèces présentent un intérêt pour la pêche à usage alimentaire. À noter que l’espèce, Sparus aurata, signalée
par Morain en Haïti (2016), est en Atlantique- Est et en Méditerranée, mais absente en Atlantique- Ouest. Ces
espèces fréquentent également des fonds de sable, de roches et des herbiers. Leur régime est varié:
phytoplancton, zoobenthos, plantes, oursins, étoiles de mer, mollusques dont les bivalves, les invertébrés
benthiques comme les crabes et les bernard-l’hermite. Leur niveau trophique se situe entre 2,9 et 4,4. Les sexes
sont séparés. La période de ponte du rondeau brème, Archosargus rhomboidalis, est signalée avoir lieu en mars
en Haïti. Leur vulnérabilité est faible à haute, entre 26 et 56 pour cent. Aucune de ces espèces ne figure dans
la liste rouge de l’IUCN. Des cinq espèces, quatre présentent des risques de ciguatera.
La famille des Pomacentridae est représentée par 14 espèces de chauffets, demoiselles, castagnoles et du
sergent. Ce sont des poissons de tailles modestes, de 10 à 25 cm de taille maximum. On les trouve de la côte
jusqu’à 152 m de profondeur. Elles se nourrissent d’algues, de plantes, de cnidaires, de méduses, d'anémones,
de zooplancton, de vers polychètes, d’invertébrés, parfois de copépodes et autres petits crustacés, de larves de
poissons. Souvent à côté des poissons chirurgiens, elles nettoient les coraux. Leur niveau trophique est de 2,00
à 3,82. Leurs prédateurs sont des mérous, le cobia, des vivaneaux, des thazards et des carangues. Leur
vulnérabilité se situe entre 21 et 37 pour cent.
Les beauclaires, famille des Priacanthidae (photo 12), sont également d’un intérêt commercial pour
l’alimentation. D’un rouge vif, les deux espèces identifiées dans le milieu corallien d'Haïti sont de taille
moyenne, leur taille maximale est de 50 cm. On les rencontre sur des fonds de 3 et 300 m. Nocturnes, ils se
nourrissent de zooplancton, de vers polychètes, de pieuvres, de crustacés benthiques et de petits poissons. Leur
niveau trophique est de 3,6 à 4 ,0. Parmi leurs prédateurs on compte les oiseaux de mer (sternes, anous), les
daurades coryphènes, les mérous, les thons, les sérioles et les requins de récif. Les cas de ciguatera existent
mais sont rares. La vulnérabilité de ces espèces est faible à modérée, de 25 et 30 pour cent.
Les chirurgiens, famille des Acanthuridae, qui ne compte ici que cinq espèces, sont propres aux milieux
coralliens. On les rencontre sur les fonds de 2 à 100 m, ce sont des poissons de tailles modestes, au maximum
de 40 cm. Leur régime herbivore constitué essentiellement d’algues et de plantes leur confère un niveau
trophique bas, de 2,0 à 3,4. Ce sont des espèces diurnes qui se déplacent en groupes de cinq à six individus.
Leur vulnérabilité est de 23 à 59 pour cent. Les deux épines situées de part et d’autre de leur pédoncule caudal
peuvent occasionner des blessures très douloureuses. Trois de ces espèces présentent des risques modérés de
ciguatera et le chirurgien bleu, Paracanthurus hepatus, est venimeux.
Chez les balistes ou bourses, famille des Balistidae, espèces des milieux coralliens, cinq espèces sont présentes.
Les balistes se rencontrent sur les fonds de 0 à 275 m. Leurs tailles maximales vont de 25 à 60 cm. Le baliste
noir, Melichthys niger, se nourrit de végétaux (algues calcaires, phytoplancton), de zooplancton, de petits
invertébrés, de petits poissons. Son niveau trophique est de 2,4. Les autres espèces consomment des oursins,
des méduses, des éponges, des vers polychètes, des crustacés benthiques, des invertébrés benthiques
(gastéropodes) et des larves de poissons; leurs niveaux trophiques sont plus élevés (3,5 à 4,1). Leurs prédateurs
sont les makaires, les daurades coryphènes, les thons, les vivaneaux et les mérous. Leurs vulnérabilités sont
faibles à modérées, de 28 à 49 pour cent.
Le baliste commun, Balistes capriscus, figure comme espèce vulnérable (VU) et le baliste royal, Balistes
vetula, comme espèce quasi menacée (NT) sur la liste rouge de l’IUCN. Cette dernière espèce comporte des
risques élevés de ciguatera et bien que sa chair soit excellente, des intoxications sont souvent signalées,
imputées également à des toxines produites dans le foie.
�30
Certaines espèces d’un intérêt mineur ou nul pour la pêche vouée à l’alimentation présentent un intérêt pour le
commerce de poissons d'ornement. Parmi celles-ci, signalées en Haïti, figurent les cardinaux12, de la famille
des Apogonidae dont 13 espèces font partie de ce peuplement. Ce sont des poissons de petites tailles, de 4,3 à
13 cm maximum, leur régime est constitué de zooplancton, d'algues et d'invertébrés, leur niveau trophique est
de 3,4 à 3,6 et leur vulnérabilité est faible: de 10 à 14 pour cent.
Les poissons papillons, Chaetodontidae (photo 13 et photo 14), sont également des espèces recherchées pour
le commerce de poissons ornementaux. Six espèces font partie de ce peuplement. Ce sont des poissons de
petites tailles (maximum de 10 et 20 cm) vivant de la côte jusqu'à 55 m de profondeur à l'exception d'une
espèce qui peut être rencontrée sur les fonds de 60 à 250 m. Leurs régimes consistent en des proies de petites
tailles: œufs de poissons, vers polychètes, zoobenthos, petits invertébrés marins, amphipodes. Leur niveau
trophique est compris entre 2,9 et 3,9 et leur vulnérabilité entre 10 et 15 pour cent. Chaetodon sedentarius a
donné lieu à de rares signalements de ciguatera.
Les poissons porcs-épines ou porcs épics, Diodontidae, sont également des produits du commerce
aquariophile. Ces poissons à l'instar des Tetraodontidae ont la particularité de se gonfler d'eau lorsqu'ils sont
en danger, permettant d'augmenter leur volume et de se hérisser d'épines comme chez Chilomecterus
antillarum (photo 15) appelé poisson-lampe car il faisait l'objet de naturalisation pour confectionner des
luminaires ou le diodon porc-épic, Diodon hystrix (photo 16). Leur taille maximale varie de 35 à 91 cm. Ces
espèces se rencontrent sur les fonds durs de roches ou de coraux, entre 1 et 200 m. Leur régime est constitué
de zoobenthos, de crevettes, d'oursins, de bivalves, de vers et d'autres invertébrés benthiques. Leur niveau
trophique est compris entre 3,6 et 3,9 et leur vulnérabilité de 16 à 48 pour cent. Bien que ces espèces soient
rarement consommées, l'une d'entre elles, Diodon holocanthus a occasionnellement été signalée dans des cas
de ciguatera.
Les bourses de la famille des Monacanthidae, font également partie de cette catégorie avec cinq espèces dont
quatre sont prisées en aquariophilie publique. Leurs tailles maximales sont de 19 à 110 cm pour un poids
maximal de 2,7 kg. Elles sont sur les fonds de 0 à 150 m. Leurs régimes se composent d’éponges,
d’hydrozoaires, de gorgones, d’algues, de coraux, d’anémones et de tuniciers, mais l'espèce Aluterus
monoceros consomme également du zoobenthos et des crustacés benthiques et de jeunes poissons. Leur niveau
trophique s’établit entre 2,6 et 3,8. Leurs prédateurs sont les thons et les daurades coryphènes. De rares cas de
ciguatera ont été signalés avec la bourse écriture, Aluterus scriptus et la bourse pintade, Cantherhines pullus.
Leurs vulnérabilités sont modérées à très hautes, 25 à 69 pour cent.
Les poissons-coffres, Ostraciidae, sont des espèces coralliennes prisées dans le commerce aquariophile (photo
17). On en compte cinq espèces en Haïti qui sont toutes rattachées à ce peuplement. Leur taille maximale varie
de 47 à 55 cm. Ils se rencontrent sur des fonds de 0 à 80 m. Leur régime composé d’éponges, de tuniciers,
d’anémones, de vers, de petits mollusques, de crustacés dont des crevettes leur confère un bas niveau trophique,
compris entre 2,0 et 3,3.
Ce sont des espèces résistantes avec une vulnérabilité faible à moyenne de 25 à 32 pour cent. Ces cinq espèces
qui pourtant ne sont pas dédiées à l’alimentation ont fait l’objet de signalements occasionnels pour la ciguatera.
Deux familles occupent une place importante dans ce peuplement par le nombre d'espèces qu'elles regroupent
mais ne présentent aucun intérêt commercial hormis le secteur aquariophile: les blennies, Labrissomidae, et
les gobies, Gobiidae, avec respectivement 17 et 19 espèces présentes dans ce milieu. Ce sont des poissons de
petites tailles: de 2,2 à 23 cm maximum chez les blennies et de 2 à 6 cm chez les gobies. Ces espèces se
rencontrent sur des fonds durs de roches ou de coraux, parfois sur des fonds de sable ou de débris coquilliers,
mais toujours dans des eaux claires, les blennies entre 0 et 50 m et les gobies entre 0 et 130 m. Leur régime
consiste en zoobenthos, vers polychètes, copépodes, amphipodes, parfois des oursins et chez les gobies des
algues. Le niveau trophique des blennies est de 3,1 à 3,8, celui des gobies de 2,0 à 3,5. Leurs vulnérabilités
sont faibles: de 10 à 12 pour cent chez les blennies et de 10 à 13 pour cent chez les gobies. Chez les gobies,
cinq espèces figurent comme vulnérables (VU) sur la liste rouge de l'IUCN (Coryphopterus eidolon, C.
hyalinus, C. lipernes, C. personatus et Elacatinus prochilos) et l'espèce Elacatinus atronasus, comme en
danger (EN).
12 Traduction de
«cardinalfish», à ne pas confondre avec les Holocentridae: cardinaux ou marignons.
�31
Les rascasses, Scorpaenidae, présentent un intérêt pour le commerce aquariophile mais sont également
consommées. Ce peuplement compte trois espèces dont le laffe volant ou lionfish, Pterois volitans, une espèce
invasive originaire de la zone Indopacifique qui s’est répandue dans tout le golfe du Mexique et les Caraïbes
au milieu des années 80s, provenant probablement d'aquariums. Les trois espèces se rencontrent entre 0 et
185 m de profondeur. Leurs longueurs maximales sont comprises entre 12 à 45 cm, elles se nourrissent de
zoobenthos, de crabes, de crevettes, de céphalopodes et de petits poissons et leur niveau trophique se situe
entre 3,6 et 4,4. Leurs vulnérabilités sont faibles à hautes de 28 à 57 pour cent. Ces espèces possèdent des
épines pectorales vénéneuses qui paralysent leurs proies, ce qui a valu au lionfish une extension rapide et
spectaculaire de sa distribution. Les prédateurs de la «rascasse noire» ou «vingt-quatre heures », Scorpaena
plumieri, sont les vivaneaux et les raies pastenagues. S. plumieri est signalée comme pouvant être à l’origine
de ciguatera, ses épines sont venimeuses.
Enfin, quatre espèces d'hippocampes figurent dans ce peuplement. Ce sont des espèces prisées en
aquariophilie. L'hippocampe à queue tigrée, Hippocampus comes, figure comme espèce vulnérable (VU) sur
la liste rouge des espèces menacées de l'IUCN et l'hippocampe long nez, H. reidi, comme espèce quasi menacée
(NT). Ces deux espèces sont inscrites à l'annexe II de la CITES qui souhaite accentuer les restrictions sur le
commerce de tous les hippocampes. Pour cet organisme, toutes les espèces d'hippocampe doivent être
interdites à la vente (CITES, 2019a). Les hippocampes sont également très recherchés pour leur utilisation en
médecine traditionnelle chinoise ce qui a contribué à fragiliser leurs populations; ils sont alors commercialisés
sous forme séchée (Lourie et al., 2004)13. Ces quatre espèces se rencontrent entre 0 et 55 m de profondeur à
l'exception de Cosmocampus elucens signalée jusqu'à la profondeur de 375 m. Leur taille maximale est
comprise entre 15,0 et 18,7 cm. Leur régime est constitué de zooplancton, de crustacés benthiques (crabes,
crevettes) et leur niveau trophique est compris entre 3,3 et 3,4. Leur vulnérabilité est comprise entre 10 et 12
pour cent. Chez les hippocampes, la femelle dépose ses œufs dans une poche ventrale située sous la queue du
mâle qui les garde à incuber pendant 20 à 21 jours.
L'antennaire ou laffe, Antennarius multiocellatus est le poisson crapaud le plus commun des Antilles. On le
rencontre de la côte aux fonds de 66 m sur les fonds coralliens mais également sur les fonds à éponges. De
petite taille, 20 cm au maximum, il est peu consommé mais présente un intérêt pour le commerce
d’aquariophilie. C’est une espèce prédatrice de poissons qui consomme également des crabes et des
stomatopodes. Son niveau trophique est élevé, de 4,3. Sa vulnérabilité est faible, de 10 pour cent.
Figure 15. Cartographie sur l'ensemble de la zone d'étude des occurrences de 255 des 260 espèces du peuplement
de poissons des récifs coralliens de la zone d'inventaire.
Bathymétrie: GEBCO; 1 408 328 occurrences: OBIS, GBIF, VertNet du 24/06/2021.
13 Cet ouvrage est également un guide de détermination des hippocampes auquel on pourra se référer.
�32
En marge de ces dernières espèces prisées pour le commerce d’aquariophilie qui sera développé ultérieurement
(Cf. § 5.3), quatre espèces appartenant à deux familles différentes doivent être signalées. Le rombou lune,
Bothus lunatus, de la famille des Bothidae, la sole la plus commune rencontrée dans et autour des récifs
coralliens, sur des fonds de moins de 20 m. De taille modeste, au maximum 46 cm, elle présente un intérêt
alimentaire et pour le commerce d’aquariophilie. Elle se nourrit de crustacés benthiques, de mollusques dont
des octopodes et de petits poissons. Son niveau trophique est estimé à 4,5. Sa vulnérabilité est élevée, de 55
pour cent. Les trois autres espèces sont des Sciaenidae: l’évêque étoilé, Equetus punctatus, l'évêque couronné,
Equetus lanceolatus, et le dragonnet, Pareques acuminatus. Les espèces de cette famille se rencontrent
communément sur des fonds meubles, plutôt vaseux; ces trois espèces y font exception. Avec leurs livrées
brunes à bandes blanches tranchées, elles se distinguent des autres Sciaenidae aux couleurs uniformes et ternes.
De tailles modestes (maximum de 25 à 27 cm) elles présentent un intérêt pour l’alimentation et l’aquariophilie.
Elles se nourrissent de zoobenthos et d’invertébrés. Leurs niveaux trophiques sont de 3,4 à 3,6 et Leurs
vulnérabilités de 20 à 23 pour cent.
Pour clore le panorama de cette communauté corallienne d’une riche diversité spécifique, trois familles
réunissent les espèces prédatrices attachées à ce biotope. La trompette, Aulostomus maculatus, de la famille
des Aulostomidae, qui a été mentionnée comme prédateur à plusieurs reprises. De forme allongée, sa taille
peut atteindre 100 cm. Elle se nourrit de zooplancton, des stades jeunes de poissons, de poissons adultes
comme les anchois, les rougets, les gorettes, les marignons, etc. Son niveau trophique est de 4,3. Ses prédateurs
sont les vivaneaux et les mérous de grandes tailles. Cette espèce n’a pas donné lieu à des signalements de cas
de ciguatera. Sa vulnérabilité est moyenne à haute, 50 pour cent. Ensuite viennent 2 espèces de la famille des
Belonidae: l’aiguille voyeuse, Tylosurus acus acus, et l’aiguille crocodile, Tylosurus crocodilus crocodilus.
La première se rencontre sur des fonds de 25 à 80 m, la seconde jusqu’à des profondeurs de 457 m. Leur taille
maximale est de 150 cm pour un poids de 6,4 kg. Leur régime est constitué de crevettes et principalement de
poissons: anchois, harengules, mulets et ainsi que d’aiguilles. Leur niveau trophique est de 4,4 à 4,5. Les thons
sont leurs principaux prédateurs identifiés. Ces deux espèces présentent un danger pour leurs morsures. Seule
l’aiguille crocodile est signalée comme présentant un risque de ciguatera.
Enfin trois espèces de requins de la famille des Carcharhinidae sont inféodées aux récifs coralliens: le requin
nez noir, Carcharhinus acronotus; le requin de récif, Carcharhinus perezii et le requin citron, Negaprion
brevirostris. Ce sont des requins côtiers qui se rencontrent sur des fonds de 0 à 92 m. Le requin de récif et le
requin citron sont considérés comme dangereux. Leurs tailles maximales sont de 200 à 340 cm pour des poids
maximaux de 19 à 184 kg. Outre l’usage alimentaire, ces espèces présentent un intérêt commercial pour la
pêche sportive. Leur régime est constitué principalement de poissons osseux mais aussi de crustacés
benthiques, de mollusques et d’oiseaux. Ce sont des espèces vivipares avec une fécondité absolue de 4 à 6
chez le requin nez noir, de 4 à 17 chez le requin citron. Leurs niveaux trophiques se situent entre 4,3 et 4,5. La
vulnérabilité de ces espèces est élevée à très élevée, de 70 à 87 pour cent. Les trois espèces sont inscrites sur
la liste rouge de l’IUCN sous le statut d‘espèces quasi menacées.
La distribution spatiale de ce peuplement montre des agglomérations à proximité des côtes ou peu distantes
des côtes et des sites de récifs coralliens. Les points les plus au large correspondant à des espèces à plus large
distribution s'étendant au-delà de la limite du talus, ayant colonisé des sites de récifs fossiles.
La cartographie des principales espèces de ce peuplement (figure 15) se juxtapose à celle des espèces de coraux
construits (Cf. § 6.2.3).
3.2.1.4
Peuplement des herbiers, champs d'algues et fonds à éponges
Ce groupe compte 11 familles dont certaines sont également des composantes importantes des communautés
coralliennes (tableau 5). Contrairement aux espèces de ces familles abordées précédemment qui peuvent
fréquenter alternativement le milieu corallien et les herbiers, celles-ci se rencontrent plus rarement dans les
récifs coralliens.
Ainsi trouve-t-on trois espèces de perroquets, Scaridae, de petites à moyennes tailles, leurs longueurs
maximales étant comprises entre 13 à 30 cm. Elles sont sur des fonds de 0 à 80 m. Leur régime se compose
d’algues et de plantes telles que Thalassia testudinum (Cf. § 6.2.1). Leurs niveaux trophiques sont bas, de 2,0.
Comme cela a été déjà indiqué, l’hermaphrodisme protogyne est fréquent chez ces espèces (Robertson et
Warner, 1978), c’est le cas du perroquet à lévare bleu, Cryptotomus roseus, la plus petite des trois espèces,
chez qui les femelles se transforment en mâles à partir de 5,75 cm; chez le perroquet aile-noire, Sparisoma
radians, on observe des mâles primaires en minorité chez les individus les plus petits et des mâles secondaires,
�33
plus grands et plus actifs dans la reproduction tandis que chez le perroquet émeraude, Nicholsina usta, les
sexes sont séparés.
Tableau 5. Principales familles de poissons des herbiers, champs d'algues et fonds à éponges. Ce peuplement
compte 39 espèces dont 26 commercialisables.
Nom français (FAO)
Nom créole
Antennaire
Baliste
Labre
bata lake
Bourse
Serpentine
Perroquet
Mamselle
Vingt-quatre heures
Varech
Hippocampe
Compère
pawoket, boutou,
potpot
Famille
(n esp comm/n esp)
Antennariidae (1/1)
Apogonidae (0/1)
Balistidae (1/1)
Blenniidae (1/1)
Callionymidae (1/1)
Chaenopsidae (1/1)
Chlopsidae (1/1)
Dactyloscopidae (1/1)
Labridae (5/5)
Labrisomidae (3/8)
Monacanthidae (1/2)
Mullidae (1/1)
Ophichthidae (1/2)
Scaridae (2/3)
Profondeur Côtier Plateau Talus Abysses Domaine Domaine
littoral
néritique océanique
0-5
0-15
5-70
0-35
1-91
0-11
2-450
1-27
1-110
0-24
1-90
0-110
0-150
0-80
Sciaenidae (2/2)
Scorpaenidae -0/1)
Serranidae (1/2)
Syngnathidae (2/4)
Tetraodontidae (1/1)
1-35
1-30
0-165
0-73
2-70
La vulnérabilité de ces trois Scaridae est très basse, entre 12 et 27 pour cent. Seul le perroquet aile-noire,
Sparisoma radians, présente des risques de ciguatera.
Les labres, Labridae, sont représentés par cinq espèces; de tailles modestes, la taille maximale de quatre d'entre
elles est comprise entre 9,4 à 20 cm; elles se rencontrent entre 1 et 54 m de profondeur, la taille de la dernière
espèce, Xyrichtys novacula, atteint 38 cm et elle est signalée jusqu'à 110 m de profondeur. Leur régime est
plus varié comprenant du zooplancton et du zoobenthos. Leur niveau trophique est compris entre 3,2 et 3,7.
Comme la plupart des Labridae, elles sont hermaphrodites protogynes (Warner et Robertson, 1978). Ces
espèces présentent une vulnérabilité basse à modérée, de 16 à 36 pour cent. Appartenant à une autre de ces
familles, le baliste, Canthidermis sufflamen se rencontre sur les fonds de 5 à 60 m; d’une longueur maximale
de 65 cm pour 6 kg, il se nourrit de méduses, de cnidaires, d’oursins, de gastéropodes, d’invertébrés benthiques
dont des crabes. Son niveau trophique est de 3,5. Ses principaux prédateurs sont les carangues, les thons et les
makaires. Sa vulnérabilité est de 50 pour cent.
La famille des Serranidae compte deux espèces. Seul le varech, Alphestes afer présente un intérêt pour la
pêche. Il est diurne, sa taille maximale est de 33 cm et il se rencontre entre 2 et 35 m de profondeur. C'est un
hermaphrodite séquentiel, sa protogynie reste à confirmer (Sadovy de Mitcheson et Liu, 2008). Il se nourrit
d'invertébrés benthiques et de poissons; son niveau trophique est de 3,6. Sa vulnérabilité est de 33 pour cent.
Les blennies, Labrissomidae, sont représentées par huit espèces dont trois font l'objet de commerce
aquariophile. Ce sont des poissons de petites tailles (2,3 à 8,2 cm), des fonds de 0 à 24 m, se nourrissant de
zoobenthos (vers, crustacés benthiques). Leur niveau trophique se situe entre 3,1 et 3,7 et leur vulnérabilité est
de 10 pour cent.
Le rouget barbé tacheté, Pseudupeneus maculatus, de la famille des Mullidae appartient à ce groupe. Sa taille
maximale est de 30 cm, il se rencontre jusqu’à 90 m de profondeur. Il se nourrit de vers polychètes, de petits
invertébrés et de crustacés benthiques. Son niveau trophique est de 3,7. Ses prédateurs sont les oiseaux de mer,
la trompette, des carangues, des vivaneaux, des mérous et le requin de récif. Sa vulnérabilité est modérée, de
35 pour cent. De rares cas de ciguatera ont été signalés.
Deux espèces de Sciaenidae figurent dans ce peuplement: la mamselle bleue, Corvula batabana, et la mamselle
caimuire, Corvula sanctaeluciae. De tailles modestes, communes à 20 cm et au maximum de 26 cm, elles se
rencontrent sur les fonds sableux à herbiers entre 3 et 35 m. Leur régime est constitué de zoobenthos, de
crevettes, d'amphipodes et d'isopodes, leur niveau trophique est de 3,4 à 3,6, leur vulnérabilité de 21 à 22 pour
cent.
�34
Quatre espèces d'hippocampes, Syngnathidae, se rencontrent dans ce milieu jusqu'à une profondeur de 73 m.
Leurs captures sont destinées au commerce aquariophile. Leur régime est constitué de zooplancton dont les
crustacés planctoniques, de zoobenthos, en particulier de crevettes. Leur niveau trophique est de 3,3 à 3,5. La
vulnérabilité de l'hippocampe rayé, Hippocampus erectus, est de 31 pour cent, celle de Syngnathus pelagicus,
de 17 pour cent. L'hippocampe rayé est inscrit sur la liste rouge de l'IUCN sous le statut de vulnérable (VU),
il figure avec l'hippocampe moucheté, H. guttulatus, à l'annexe II de la CITES.
L'antennaire des Sargasses, Histrio histrio, est un Antennariidae benthopélagique. Il se rencontre souvent sous
des objets flottants ou des sargasses, à proximité des récifs coralliens. C'est un carnivore qui se nourrit de
crustacés benthiques, de poissons et de zooplancton. Son niveau trophique est de 3,93. Sa vulnérabilité est
faible, de 10 pour cent. Il est consommé mais également commercialisé comme poisson d'ornement.
Deux espèces présentant des risques pour le consommateur doivent être signalées:
• La rascasse Poisson scorpion à tentacules ou Plumed scorpionfish (En), Scorpaena grandicornis, est le
seul Scorpaenidae présent dans ce peuplement. L'espèce possède des épines venimeuses dont les piqûres
sont extrêmement douloureuses mais non létales. Elle se rencontre dans les fonds de 1 à 30 m. Sa taille
maximale est de 30 cm. Son régime est constitué de crustacés benthiques et de poissons, c'est une proie
des requins. Son niveau trophique est de 3,7. Sa vulnérabilité est de 41 pour cent.
• Le compère collier, Sphoeroides spengleri, est le seul Tetraodontidae rattaché à ce peuplement. Sa chair
est toxique, en particulier les viscères, contenant de la Tétrodotoxine (TTX), une neurotoxine puissante,
amine perhydroquinozoline dont la dose létale (DL) est de 10 µg/kg (Hommel et al., 1992), il est appelé
aussi le poison du fugu en référence au plat traditionnel japonais. Le décès survient entre 6 et 24h après
l'ingestion, suite à la paralysie de la musculature respiratoire. Le tétrodon entre dans la préparation du plat
haïtien « Zombi coffre ». Il se rencontre entre 2 et 70 m de profondeur. Sa taille maximale est de 30 cm.
Il se nourrit d'oursins, de crustacés benthiques, de mollusques et d'autres invertébrés benthiques; son
niveau trophique est de 3,3. Sa vulnérabilité est de 25 pour cent. La distribution spatiale de ce peuplement
est plus diffuse que celles des peuplements précédents (figure 16).
Figure 16. Cartographie sur l'ensemble de la zone d'étude des occurrences des 39 espèces du peuplement de
poissons des herbiers, champs d'algues et fonds à éponges de la zone d'inventaire.
Bathymétrie: GEBCO; 57 152 occurrences: OBIS, GBIF, VertNet du 24/06/2021.
3.2.1.5
Peuplement des poissons démersaux de bas de plateau et de haut de talus
Les espèces démersales sont des espèces nageuses, vivant au-dessus du fond, très mobiles, elles dépendent des
ressources fixées au fonds d’où elles tirent leur nourriture. Dans ce groupe ont été inventoriées 119 espèces de
poissons appartenant à 42 familles dont 95 espèces signalées d'intérêt commercial (tableau 6).
�35
On y trouve huit espèces de vivaneaux, Lutjanidae. Si une dizaine d’espèces de cette famille sont nettement
inféodées aux récifs coralliens, les autres se rencontrent sur des fonds rocheux ou sableux. Les espèces de plus
petites tailles atteignent un maximum de 50 cm tandis que les plus grandes peuvent atteindre 1,0 m de long.
Elles se rencontrent sur des fonds de 12 à 650 m. Toutes présentent un intérêt pour la pêche commerciale à
vocation alimentaire. Leur niveau trophique est élevé, de 3,9 à 4,5. Elles se nourrissent selon leur taille de
tuniciers, d’invertébrés benthiques, de crustacés benthiques comme les crabes et les crevettes, de céphalopodes
et de poissons. Les espèces de plus grandes tailles, inféodées aux fonds rocheux ou à des récifs coralliens
fossiles, sont sédentaires et territoriales. Celles qui vivent sur les fonds sableux se rencontrent plus souvent en
bancs. Les sexes sont séparés. Leur vulnérabilité est modérée à haute, entre 28 et 62 pour cent.
Tableau 6. Principales familles de poissons démersaux de bas de plateau et de haut de talus. Ce peuplement compte
119 espèces dont 95 commercialisables.
Nom français (FAO)
Laffe cinq doigts
Argentine
Ariomme
Crapaud tacheté
Rombou
Brotule
Requin bouledogue
Langue fil noir
Poule de mer,
hirondelle
Pastenague
Sagre
Poisson trompette
Gobie
Grondeur, Croupia
Labre rouge
Baudroie, lotte
Vivaneau
Vive
Bourse
More têtard
Rouget
Aigle de mer
Chauve-souris de mer
Serpenton
Brotule
Donzelle
Limande
Chien de mer
Gobie
Poisson chèvre
Raie blanc-nez
Verrue, Acoupa
Rascasse
Mérou, serran, coné
etc.
Pagre rouge
Aiguillat
Poisson lézard, Anoli
Hoplostète argenté
Emissole
Poisson sabre
Grondin
Nom créole
reken
crocro
vivano
balbaren
pwason ré
Ré
grandyèl
Kwokwo
reken
Famille
(n esp comm/n esp)
Acropomatidae (0/1)
Antennariidae (0/1)
Argentinidae (1/2)
Ariommatidae (2/2)
Batrachoididae (1/1)
Bothidae (1/1)
Bythitidae (1/1)
Carcharhinidae (2/2)
Cynoglossidae (1/1)
Dactylopteridae (1/1)
Profondeur Côtier Plateau Talus Abysses Domaine Domaine
littoral
néritique océanique
183-658
0-219
92-458
0-640
1-200
73-550
64-210
0-280
6-263
1-100
Dasyatidae (2/2)
Etmopteridae (2/2)
Fistulariidae (1/1)
Gobiidae (1/2)
Haemulidae (6/6)
Labridae (1/1)
Lophiidae (1/1)
Lutjanidae (8/8)
Malacanthidae (2/2)
Monacanthidae (3/3)
Moridae (1/1)
Mullidae (3/3)
Myliobatidae (1/1)
Ogcocephalidae (3/5)
Ophichthidae (2/3)
Ophidiidae (2/4)
Opistognathidae (2/2)
Paralichthyidae (6/6)
Pentanchidae (2/2)
Percophidae (0/2)
Polymixiidae (2/2)
Rajidae (1/1)
Sciaenidae (7/9)
Scorpaenidae (2/5)
Serranidae (11/17)
0-150
70-800
1-200
8-240
0-120
18-275
230-800
12-650
10-244
0-900
30-1 000
0-135
1-91
0-1 300
0-1 743
1-935
0-91
0-549
150-700
82-724
50-800
0-330
0-110
1-5490-610
Sparidae
Squalidae (1/1)
Synodontidae (6/7)
Trachichthyidae (1/1)
Triakidae (1/1)
Trichiuridae (2/2)
Triglidae (1/2)
0-250
60-710
0-430
100-1 300
0-800
0-589
7-230
�36
Le vivaneau rouge, Lutjanus purpureus, (photo 18) est l’une des espèces les plus grandes. Sa longueur
maximale est de 100 cm et son poids peut atteindre 22,8 kg. Cette espèce a une large distribution, des côtes
nord de l’Amérique du sud aux côtes atlantiques de l’Amérique centrale à la frontière du Mexique et sur toutes
les Caraïbes. Elle est souvent confondue avec le vivaneau Campèche dont la distribution s’étend des côtes
ouest du golfe de Mexique à la Floride.
Chez le vivaneau rouge, la période de ponte a lieu toute l’année, chez d’autres espèces elle court sur quelques
mois. Autre espèce de grande taille (maximum de 100 cm), le vivaneau royal, Etelis oculatus, a une aire de
distribution encore plus large, comprenant toutes les côtes du golfe du Mexique, les Caraïbes, les côtes
atlantiques d’Amérique centrale et du nord de l’Amérique du sud. Le vivaneau Campèche, Lutjanus
campechanus, est également de grande taille (maximum de 100 cm); son aire de distribution se situe plus au
nord et bien que souvent confondue avec L. purpureus, l'espèce a été signalée en Haïti (Wilner, 2004); avec le
vivaneau vermillon, Rhomboplites aurorubens, ces deux espèces sont inscrites sur la liste rouge de l’IUCN
sous le statut d'espèce vulnérable (VU). Les risques de ciguatera touchent cinq espèces dont le vivaneau noir,
Apsilus dentatus, pour lequel des signalements fréquents ont été recensés.
Chez les Haemulidae, six espèces sont présentes dans ce peuplement alors que 13 sont rattachées aux milieux
coralliens. Elles se rencontrent sur des fonds de roches et de sable entre 0 et 120 m. Leurs tailles maximales
sont de 20 à 76 cm. D’un niveau trophique moyen situé entre 3,5 et 4,0; leur régime se compose d’oursins, de
mollusques, de crustacés benthiques et de petits poissons. Leur vulnérabilité est faible à élevée, 23 à 56 pour
cent. Le lippu croupia, Anisotremus surinamensis (photo 19) et la gorette grise, Haemulon bonariense, ont
donné lieu occasionnellement à des signalements de ciguatera.
Appartiennent à cette communauté 17 espèces de Serranidae regroupant des mérous, des serrans, des conés et
des savons. Y figurent quatre espèces de mérous: mérou Aile-jaune, Hyporthodus flavolimbatus; le mérou
brouillard, H. mystacinus; le mérou Varsovie (ou polonais), H. nigritus et le mérou neige, H. niveatus. Ce sont
des mérous de grandes tailles, leurs tailles maximales respectives sont de 1,15, 1,60, 2,35 et 1,22 m et de poids
maximaux respectifs de 20, 107, 198 et 30 kg. Ce sont des espèces plus profondes de la zone intermédiaire
entre le plateau et le talus continental, des fonds de 10 à 525 m. Ces quatre espèces sont encore mal connues.
Solitaires elles sont parfois capturées sur le plateau continental. Leurs niveaux trophiques sont respectivement
de 3,8, 4,6, 4,0 et 4,04. Leur régime carnivore est constitué de crabes, de crevettes, de langoustes, de
céphalopodes et de poissons. Ces espèces présentent une haute à très haute vulnérabilité, respectivement de
58, 85, 68, et 64 pour cent. Le mérou de Varsovie figure sur la liste rouge de l’IUCN, sous le statut d'espèce
en danger critique (CR), stade qui précède celui de l’extinction; les mérous aile-jaune et neige figurent
également sur la liste rouge de l'IUCN, comme espèces vulnérables (VU). Ces espèces n'ont pas été signalées
pour des cas de ciguatera. Les serrans, les conés et les savons sont de tailles plus modestes, de 11,5 à 35 cm
maximum. Les serrans regroupent des espèces des genres Serranus et Diplectrum. Ce sont des poissons dont
les chairs sont très appréciées, leur prix est plutôt élevé. Les savons, du genre Rypticus, doivent leur nom au
mucus qu'ils secrètent à la surface de leur corps en cas de stress et qui prend l'aspect d'une mousse savonneuse
qui contient une protéine toxique pour se protéger des prédateurs. Les trois espèces ne sont pas toxiques pour
l'homme et leur chair est également prisée. Leur niveau trophique est de 3,7 à 4,1 et leur vulnérabilité de 22 à
34 pour cent.
La famille des Labridae, autre famille dominante des milieux coralliens, est représentée par une espèce: le
labre rouge, Decodon puellaris, espèce de taille modeste, maximum de 30 cm. Elle présente un intérêt pour le
commerce d’aquariophilie. Elle se rencontre sur des fonds rocheux entre 18 et 275 m. les sexes sont séparés.
Son niveau trophique est de 3,6. Sa vulnérabilité est faible à modérée, de 35 pour cent.
Le Sparidae Pagrus pagrus a été signalé dans la zone d'inventaire (Vallès, 2018) mais selon la FAO, Fishbase,
OBIS et GBIF, son aire de répartition s'étend le long des côtes de Floride, du golfe du Mexique, d'Amérique
centrale et du nord de l'Amérique du Sud. L'espèce est signalée par OBIS et GBIF au nord-ouest de Cuba.
Font également partie de ce groupe, trois espèces de rougets, Mullidae. Leur taille maximale est de 27 à 40 cm.
Elles se rencontrent sur des fonds sableux entre 0 et 135 m. Leurs régimes se composent essentiellement
d’invertébrés benthiques et leur niveau trophique est de 3,2 à 3,9. Leur vulnérabilité est faible à moyenne, de
27 à 33 pour cent. Leur chair est fine et appréciée. De rares cas de ciguatera ont été signalés avec le capucin
jaune, Mulloidichthys martinicus.
Bien que la famille des Sciaenidae n’ait pas été signalée dans les rapports et articles précisant les captures de
la pêche en Haïti, la présence d’espèces de cette famille dans les eaux haïtiennes est signalée tant sur le site de
�37
Fishbase que sur ceux d’OBIS et de GBIF et neuf espèces figurent dans ce peuplement. Elles se rencontrent
sur des fonds meubles et préférentiellement vaseux sinon sableux de la côte à 110 m de profondeur. Leur
régime est varié, composé de zooplancton, de zoobenthos, de crevettes, de crabes, de vers, de petits poissons.
Leurs niveaux trophiques se situent entre 3,1 et 4,1 et leurs vulnérabilités entre 13 et 34 pour cent.
Parmi ces espèces, l'acoupa mongolare, Cynoscion jamaicensis, (photo 20) a une taille maximale de 50 cm;
les tailles maximales des tambours brésilien, Micropogonias undulatus, et rayé, M. furnieri, sont de 55 et
67 cm; les ombrines rayée Umbrina broussonnetii, et pétope, U. coroides, de 25 et 35 cm de tailles maximales.
Ces espèces sont prisées par les consommateurs et sans cas de ciguatera signalés.
Les Monacanthidae, dont la forme rappelle celle des balistes, comptent dans ce peuplement trois espèces,
toutes commerciales. Elles se rencontrent sur des fonds de vase, sable ou gravier entre 0 et 900 m. Leur taille
maximale est de 18 à 61 cm. Leur régime constitué d'algues, de plantes, de zoobenthos leur confère un niveau
trophique modéré, de 2 à 2,9. Leur vulnérabilité se situe entre 27 et 55%.
Les Malacanthidae, sont représentés par deux espèces: la vive, Malacanthus plumieri, et le tile-œil-doré,
Caulolatilus chrysops, leurs tailles maximales respectives sont de 70 cm et 60 cm. Elles se rencontrent sur les
fonds de sable ou de graviers, entre 10 et 244 m, mais également à proximité de récifs coralliens et parfois
dans des herbiers. Elles se nourrissent de vers, de stomatopodes, d'oursins, d'étoiles de mer, de poissons. Leurs
niveaux trophiques respectifs sont de 3,7 et 3,6. Parmi leurs prédateurs figurent les vivaneaux. Leur
vulnérabilité est élevée, de 63 et 51%. Leurs piqûres sont douloureuses en raison de leur venin.
Photo 18. Lutjanus purpureus © de Mérona B. (IRD)
Photo 19. Anisotremus surinamensis © de Mérona
B. (IRD)
Photo 20. Cynoscion jamaicensis © de Mérona B. (IRD)
Photo 21 Synodus foetens © de Mérona B. (IRD)
Photo 22 Trachinocephalus myops © de Mérona B. (IRD)
Photo 23 Fistularia tabacaria © de Mérona
B. (IRD)
�38
Les rascasses, Scorpaenidae, comptent cinq espèces dont deux sont signalées d'intérêt commercial. Elles se
rencontrent sur des fonds de vase, sable, graviers et roches entre 0 et 549 m. Leur taille maximale se situe entre
6,4 et 46 cm. Leur régime alimentaire est constitué de crustacés, d'autres invertébrés benthiques et de poissons.
Leur niveau trophique est compris entre 3,3 et 3,8. Leur vulnérabilité est comprise entre 18 et 59 pour cent. La
rascasse longnez, Pontinus castor, l'espèce la plus grande et d'intérêt commercial est dotée d'épines venimeuses
dangereuses pour l'homme.
Les poissons lézard ou anolis, Synodontidae, sont représentés par sept espèces dont six présentent un intérêt
commercial sur le marché local dont l'anoli des plages, Synodus foetens (photo 21), et l'anoli-serpent,
Trachinocephalus myops (photo 22), l'espèce la plus profonde. Ils se rencontrent sur les fonds sableux ou
vaseux, de la côte jusqu'aux fonds de 430 m. Leur taille maximale est de 25 à 48 cm. Ils se nourrissent de
zoobenthos dont les crustacés benthiques comme les crabes et les crevettes, de céphalopodes et de poissons.
Leur niveau trophique se situe entre 4,2 et 4,7 et leur vulnérabilité de 18 à 47 pour cent.
Le poisson-trompette, Fistularia tabacaria (photo 23), de la famille des Fistulariidae se rencontre entre1 et
200 m de profondeur, sur des fonds durs de roches, coraux et également dans les herbiers. La longueur
maximale de ce poisson très effilé est de 2 m pour un poids d'à peine 300 g. Il se nourrit de zoobenthos, de
bivalves, de crustacés benthiques, de crabes et de poissons. Son niveau trophique est de 3,7 et sa vulnérabilité
de 31 pour cent.
Deux espèces de poissons-sabre, Trichiuridae, sont rattachées à ce peuplement. Ce sont des espèces
benthopélagiques qui se rencontrent de la côte aux fonds de 589 m. De forme très allongée, leur taille maximale
est comprise entre 2,00 et 2,34 m. Le poids maximal du poisson sabre commun, Trichiurus lepturus (photo 24)
atteint 5 kg. Leur régime est constitué de zooplancton, de zoobenthos comme les crevettes, les langoustes, les
crabes et de céphalopodes. Leur niveau trophique est de 4,4 à 4,5 et leur vulnérabilité de 37 à 65 pour cent.
Les poissons plats, perpeires, cardines, limandes, de la famille des Paralichthyidae, au nombre de cinq espèces
toutes d'intérêt commercial, font partie de ce peuplement. Ces espèces se rencontrent sur des fonds meubles de
vase ou de sable, entre 0 et 549 m. Leur taille maximale est comprise entre 20 et 41 cm. Leur régime est
constitué de zooplancton, de zoobenthos benthique, de céphalopodes et de petits poissons. Leur niveau
trophique est compris entre 3,27 et 3,6. Leur vulnérabilité se situe entre 10 et 35 pour cent. Le perpeire frange,
Etropus crossotus (photo 25), est une espèce de bas de plateau qui vit sur des fonds meubles (vase, sable) entre
0 et 110 m. Son niveau trophique est de 3,5 et sa vulnérabilité de 10 pour cent. Le perpeire à queue tachetée,
Cyclopsetta fimbriata (photo 26) a une taille maximale de 33 cm, son régime alimentaire consiste en crustacés
benthiques et en poissons, son niveau trophique est de 3,6 et sa vulnérabilité est de 27 pour cent. Ces espèces
se rencontrent de 18 à 230 m, sur des fonds de sables ou de graviers.
Quinze espèces de bas de plateau et de talus continental se répartissent entre sept familles:
•
Les argentines, Argentinidae, comptent deux espèces dont l'une est commerciale. Elles se rencontrent
sur des fonds meubles (vase, sable) entre 92 et 458 m. De petites taille, 11,3 et 14,6 cm au maximum.
Leur régime est constitué de crustacés benthiques et leur niveau trophique est de 3 à 3,3. Leur
vulnérabilité est de 23 à 27 pour cent. Elles sont pêchées au chalut de fond.
•
Les ariommes, Ariommatidae, comptent deux espèces commerciales, l'ariomme grise, Ariomma bondi,
et l'ariomme pintade, A. regulus. Elles se rencontrent de 0 (le plus souvent au-delà de 50 m) à 640 m
de profondeur. Leurs tailles maximales sont de 30 et 25 cm. Leur régime est constitué principalement
de zoobenthos. Leurs niveaux trophiques sont de 3,5 et 3,4 et leurs vulnérabilités de 18 et 15 pour cent.
Elles sont pêchées au chalut de fond.
•
Les brotules, Ophidiidae, comptent quatre espèces dont deux sont commerciales. Elles se rencontrent
sur les fonds meubles (vase, sable), entre 1 (le plus souvent plus profond) et 635 m. Leurs tailles
maximales sont comprises entre 12,6 et 100 cm (27,3 et 100 cm pour les deux espèces commerciales).
Chez la plus grande des espèces, la brotule barbée, Brotula barbata, le poids atteint 8,5 kg. Elles se
nourrissent principalement de crustacés benthiques: leur niveau trophique est compris entre 3,5 et 3,9
et leur vulnérabilité entre 16 et 52 pour cent. Ces espèces dites profondes sont des « poissons de chalut»
et ne sont pas accessibles aux techniques de pêche artisanale.
•
Les poissons chèvre, Polymixiidae, comptent deux espèces commerciales. Elles se rencontrent sur les
fonds meubles (vase, sable) entre 50 et 800 m. Leur taille maximale est de 25 à 48 cm. Leur régime
est constitué de crustacés benthiques, de céphalopodes et de poissons et leur niveau trophique est de
�39
4,01 à 4,2. Leur vulnérabilité se situe entre 37 et 42 pour cent. Le poisson chèvre robuste, Polymixia
lowei, l'espèce la plus grande se pêche au chalut de fond mais également à la ligne à main et à la
palangre de fond.
•
La dernière famille est celle des Trachichthyidae, représentée par une seule espèce commerciale,
l'hoplostète argenté, Hoplostethus mediterraneus. Il se rencontre sur les fonds de vase entre 100 et
1 300 m. Sa longueur maximale est de 58 cm. Son régime est constitué de zooplancton, d'invertébrés
et de crustacés benthiques. Son niveau trophique est de 3,49 et sa vulnérabilité est de 65 pour cent.
•
Seule de la famille des Lophiidae, la baudroie14, Lophiodes monodi, mérite d'être évoquée car c'est une
espèce commerciale très prisée. Elle se rencontre sur les fonds meubles (vase, sable) de 230 à 800 m.
Sa longueur maximale est de 52 cm pour un poids de 1,8 kg. C'est une espèce piscivore, son niveau
trophique est de 4,5 et sa vulnérabilité de 49 pour cent. Elle est pêchée au chalut de fond.
•
Trois espèces de poissons anguilliformes de la famille des Ophichthidae font partie de ce peuplement:
le serpent de mer, Ophichthus cruentifer, le serpenton chevrette, O. gomesii, et le serpenton tacheté,
O. ophis (photo 27). La première espèce se rencontre sur les fonds de 36 à 1 743 m, les deux autres
entre 0 et 457 m et sont les seules à présenter un intérêt pour la pêche vivrière et les appâts. Leurs
tailles maximales sont respectivement de 47, 91 et 210 cm. Leurs niveaux trophiques sont de 3,4, 4,0
et 4,5 et leurs vulnérabilités de 29, 42 et 75 pour cent.
Les autres espèces de ce groupe sont des sélaciens. L'aigle de mer, Aetobatus narinari, est une raie de la famille
des Myliobatidae qui vit au-dessus du fond. Elle nage près de la surface ou près du fond souvent en bancs entre
1 et 80 m de profondeur, occasionnellement aux alentours des récifs coralliens. Elle peut mesurer jusqu'à
3,30 m d'envergure pour un poids approchant les 100 kg. Omnivore elle se nourrit de mollusques bivalves et
gastéropodes, de crevettes, de crabes, d'octopodes et de petits poissons; son niveau trophique est de 4,2. La
femelle est fécondée par accouplement et la reproduction est ovovivipare, la mère pouvant garder jusqu'à
quatre embryons, la fécondité absolue moyenne est de 1 à 2. Cette espèce présente une vulnérabilité très élevée,
75 pour cent. Elle figure sur la liste rouge de l'IUCN sous le statut de quasi menacée (NT).
Deux espèces de raies pastenagues de la famille des Dasyatidae, se rattachent à ce peuplement: la pastenague
américaine, Hypanus americanus (ex Dasyatis americana) (photo 28) et la pastenague longnez, Hypanus
guttatus. Leur envergure maximale est de 2,0 m, et leur poids maximal de 135 kg. Elles se rencontrent sur des
fonds de sable ou de roches entre 0 et 150 m, visitant parfois les herbiers. Elles se nourrissent d'invertébrés
benthiques comme des vers polychètes, des bivalves, des crustacés mais aussi de petits poissons osseux. Leurs
niveaux trophiques sont de 2,6 et 3,5. Les mérous sont leurs principaux prédateurs. Elles sont ovovivipares
avec des portées de 2 à 4 jeunes. Leurs grandes tailles et leurs faibles fécondités leur confèrent une très grande
vulnérabilité: 77 pour cent pour la pastenague américaine et 90 pour cent pour la pastenague longnez. De rares
cas de ciguatera ont été signalés chez la pastenague américaine. Les deux espèces possèdent un aiguillon
dentelé pouvant infliger de graves blessures. Ces espèces sont pêchées au chalut de fond mais aussi au trémail,
à la palangre de fond et au harpon.
La raie blanc-nez, Raja eglanteria, de la famille des Rajidae a été signalée dans la zone d'inventaire (Vallès,
2018) bien que selon la FAO, Fishbase et les bases OBIS et GBIF, son aire de distribution s'étendrait des côtes
nord du golfe du Mexique, de Floride et jusqu'à celles du sud de la Nouvelle Écosse (Canada).
Font partie de ce groupe, deux espèces de la famille des Pentanchidae: le chien de mer des Antilles, Galeus
antillensis, et le chien de mer rayé, G. springeri15. Ce sont des requins de fond qui fréquentent les fonds de 150
à 824 m de la marge du plateau continental et de la pente du talus continental. Leur taille maximale est de 46
et 53 cm. Ce sont des espèces ovipares. Elles se nourrissent d'invertébrés et de petits poissons; leur niveau
trophique est de 4,0. Leur vulnérabilité est modérée à élevée, de 53 et 41 pour cent. Ces espèces sont d'un
faible intérêt commercial.
Se rattache à ce groupe l'émissole douce, Mustelus canis (photo 29) de la famille des Triakidae. Elle se
rencontre souvent en bancs de la côte aux fonds de 800 m. Pouvant atteindre 1,50 m de long pour 12,2 kg,
c'est une espèce pêchée pour l'alimentation. Elle est vivipare, les femelles portant de 2 à 4 jeunes. Elle se
nourrit près du fond de gros crustacés comme des crabes et des crevettes mais également des langoustes et
14 La baudroie est également appelée lotte.
15 Ces deux espèces étaient rattachées à la famille des Scyliorhinidae par le passé (FAO, 2002a)
�40
des cigales. Son niveau trophique est de 3,6. Ses principaux prédateurs sont les requins (Carcharhinidae et
Lamnidae). D'une grande vulnérabilité, 87 pour cent, cette espèce est inscrite sur la liste rouge de l'IUCN
sous le statut d'espèce quasi menacée (NT).
L'aiguillat, Squalus cubensis, de la famille des Squalidae est un requin de fond qui appartient également à ce
peuplement. Sa taille ne dépasse pas 1,10 m, Il occupe les fonds de 60 à 400 m. Il se nourrit au fond de crustacés
benthiques et de poissons et son niveau trophique est de 4,2. Ovovivipares, les femelles portent jusqu'à 10
jeunes. Cette espèce présente une grande vulnérabilité, de 71 pour cent. Il présente un intérêt commercial pour
sa chair mais surtout pour son foie qui contient du squalène, un triterpène aux applications multiples.
Les Sagres, Etmopterus hillianus et E. robinsi, de la famille des Etmopteridae, sont des requins de fond,
présents entre 70 et 800 m, d'une taille maximale de 50 et 31 cm. Leur niveau trophique est de 4,0 à 4,4 et leur
vulnérabilité est faible à modéré, de 23 à 43. Comme l'espèce précédente, ils sont recherchés pour leur chair
mais surtout pour l'huile de leur foie riche en squalène.
Figure enfin dans ce groupe un grand prédateur: le requin bouledogue, Carcharhinus leucas, de la famille des
Carcharhinidae. Sa taille peut atteindre 6,60 m pour un poids de 316 kg. Il se rencontre sur des fonds de 1 à
152 m, très mobile, il peut se déplacer sur plus de 180 km en 24 heures. Il se nourrit de crustacés (crevettes,
crabes, langoustes), de céphalopodes, de toutes sortes de poissons y compris des raies et des requins, de tortues
marines et de mammifères marins, son niveau trophique est de 4,3. Il est considéré comme dangereux pour
l'homme. Il est vivipare, les femelles portant jusqu'à 13 jeunes. Sa longévité est estimée à 32 années et sa
vulnérabilité est très élevée, de 88 pour cent. L'espèce est inscrite sur la liste rouge de l'IUCN sous le statut
d'espèce quasi menacée.
Ce peuplement constitué d'un nombre important d'espèces se répartit du littoral jusqu'aux accores, les
occurrences sont moins nombreuses au regard du nombre d'espèces, du fait de la nécessité de disposer de
techniques de capture plus onéreuses que pour les espèces moins profondes (figure 17).
�41
Photo 24. Trichiurus lepturus © de Mérona B. (IRD)
Photo 25. Etropus crossotus © de Mérona B. (IRD)
Photo 26. Cyclopsetta fimbriata © de Mérona B. (IRD)
Photo 27. Ophichthus ophis © de Mérona B. (IRD)
Photo 28. Hypanus americanus © de Mérona B. (IRD)
Photo 29. Mustelus canis © de Mérona B. (IRD)
Figure 17. Cartographie sur l'ensemble de la zone d'étude des occurrences de 117 espèces des 119 du peuplement
de poissons démersaux de bas de plateau et de haut de talus de la zone d'inventaire (Bathymétrie: GEBCO; 47 250
occurrences: OBIS, GBIF, VertNet du 24/06/2021).
�42
3.2.1.6
Peuplement des poissons benthiques de bas de plateau et de haut de talus
Les espèces benthiques sont des organismes vivant fixés au substrat du fond ou qui en sont très tributaires,
s’éloignant peu du substrat. Il s'agira ici essentiellement de poissons anguilliformes (ableau 7).
Tableau 7. Principales familles de poissons benthiques de bas de plateau et de haut de talus. Ce peuplement compte
18 espèces dont 13 commercialisables.
Nom français (FAO)
Nom créole
Éperlan du large
Congre
Morénésoce coungré
Murène
angi
kong
Famille
(n esp comm/n esp)
Chlorophthalmidae
(1/1)
Congridae (2/4)
Muraenesocidae (1/1)
Muraenidae (9/12)
Profondeur Côtier Plateau Talus Abysses Domaine Domaine
littoral
néritique océanique
50-1 000
0-732
2-100
0-800
Figure 18. Cartographie sur l'ensemble de la zone d'étude des occurrences des 18 espèces du peuplement de
poissons benthiques de bas de plateau et de haut de talus de la zone d'inventaire.
Bathymétrie: GEBCO; 9 103 occurrences: OBIS, GBIF, VertNet du 24/06/2021.
Photo 30. Gymnothorax ocellatus © de Mérona B. (IRD)
�43
La famille des murènes, Muraenidae, prédomine dans ce peuplement. Elle n'y compte pas moins de 12 espèces
dont neuf sont signalées comme commercialisables. Celles-ci se rencontrent sur des fonds rocheux, parfois
aussi dans des récifs coralliens moins profonds (Cf. § 3.2.1.3). Ces espèces de l'ordre des Anguilliformes ont
un corps très allongé, ce sont des espèces solitaires vivant terrées dans des anfractuosités de roches, parfois de
récifs coralliens. La murène verte, Gymnothorax funebris, est la plus grande de ces 12 espèces, sa taille pouvant
atteindre 2,50 m et un poids de 29 kg. Elle vit sur des fonds de 0 à 81 m; c'est une carnivore se nourrissant de
crustacés et de poissons; son niveau trophique est de 4,0 et sa vulnérabilité très haute, de 84 pour cent. Elle est
dangereuse pour ses morsures. La murène tachetée, Gymnothorax moringa, de grande taille également
puisqu'elle atteint 2,00 m de long pour un poids de 2,5 kg. Elle est sur des fonds de 0 à 200 m. C'est une
carnivore qui se nourrit de crustacés benthiques mais surtout de poissons (vivaneaux, gorettes, rascasses, etc.),
son niveau trophique est de 4,5; sa vulnérabilité est très haute, de 84 pour cent. Elle présente des risques pour
la population en raison de ses morsures mais également elle a fait l'objet de fréquents signalements pour la
ciguatera.
Les murènes ocellées, Gymnothorax ocellatus, se rassemblent en groupes importants quand elles sont sur des
fonds meubles (vase, sable) de 1 à 160 m (photo 30). D'une taille maximale de 90 cm, son régime est composé
de poissons et de crustacés benthiques, son niveau trophique est de 4,1 et sa vulnérabilité de 57 pour cent. Les
murènes ont un niveau trophique élevé de prédateurs carnivores, entre 3,6 et 4,5. Leur vulnérabilité est
comprise entre 24 et 84 pour cent. Elles sont capturées au casier, à la palangre, à la palangre de fond et au
chalut de fond.
Le congre dentu, Conger triporiceps, de la famille des Congridae, est une espèce d'une taille moyenne de
80 cm et maximale de 100 cm qui vit sur des fonds rocheux entre 3 et 164 m et qui se nourrit d'invertébrés
benthiques et de poissons. Son niveau trophique est de 4,0. Sa vulnérabilité est élevée, 57 pour cent. Avec le
congre des Baléares, Ariosoma balearicum, ce sont les seules des 4 espèces de ce peuplement à être considérées
pouvoir présenter un intérêt pour la pêche.
L'éperlan du large, Chlorophthalmus agassizi, de la famille des Chlorophthalmidae, a été rattaché à ce
peuplement. Cette espèce rencontrée entre 20 et 1 000 m de profondeur, d'une taille maximale de 40 cm, est
signalée d'intérêt commercial. C'est une espèce de bycatch de pêcheries chalutières profondes.
La répartition spatiale des occurrences des espèces de ce peuplement et leur faible nombre rend compte des
difficultés techniques à opérer à de telles profondeurs sur des fonds accidentés (figure 18).
3.2.1.7
Peuplement de poissons épipélagiques néritiques
Parmi ces espèces de pleine eau, au-dessus du plateau continental, la famille des Carangues, Carangidae, est
la plus représentée avec 25 espèces (tableau 8). Leurs distributions peuvent s'étendre au-delà du plateau
continental (zone néritique) puisqu'elles sont observées jusqu'au-dessus des fonds de 400 m et comme d'autres
espèces de ce peuplement peuvent contribuer aux captures sous DCP (Vallès, 2015). Ces espèces ont un réel
intérêt pour l'alimentation, elles sont commercialisées en frais, salées ou séchées.
Cette famille réunit des poissons aux formes variées: des espèces fusiformes comme les comètes et le coulisou,
Selar crumenophthalmus (photo 31); des espèces comprimées latéralement et moyennement hautes comme les
carangues, Caranx spp. et les sérioles, Seriola spp.; des espèces très comprimées latéralement et très hautes
comme les mussos, Selene spp.
Les comètes réunissent trois espèces: la comète maquereau, Decapterus macarellus, la comète quiaquia, D.
punctatus, de taille modeste, de 46 et 36 cm au maximum et la comète saumon, Elagatis bipinnulata (photo
32), de grande taille, jusqu'à 1,80 m pour 46 kg. Ces espèces se nourrissent de zooplancton, d'invertébrés,
d'amphipodes et de copépodes, d'œufs et larves de poissons, de crevettes, de céphalopodes, de petits poisons.
Leurs niveaux trophiques se situent entre 4,0 et 4,4. Les comètes maquereau et saumon ont fait l'objet de
signalements de ciguatera mais leur toxicité reste à confirmer.
�44
Tableau 8. Principales familles de poissons pélagiques néritiques. Ce peuplement compte 65 espèces dont 58
commerciales.
Nom français (FAO)
Nom créole
Carangue, Sériole, etc.
Requin bordé
Allache
Coryphène
Rémora grêle
Exocet
Requin nourrice
karang, kouléhou
reken
sadin
dorad
Croupia
Cobia
Thazard, Bonitou,
Auxide
Barracuda, Bécune
Requin marteau
Stromate lune
Compère
Trachyptère ventru
Sabre fleuret
tchara, waou
bekin, mèlan
reken
Famille
(n esp comm/n esp)
Carangidae (23/25)
Carcharhinidae (1/1)
Clupeidae (2/2)
Coryphaenidae (1/1)
Echeneidae (0/1)
Exocoetidae (12/14)
Ginglymostomatidae
(1/1)
Hemiramphidae (0/1)
Lobotidae (1/1)
Rachycentridae (1/1)
Scombridae (6/6)
Profondeur Côtier Plateau Talus Abysses Domaine Domaine
littoral
néritique océanique
0-380
0-100
0-364
0-85
0-5
0-20
0-130
Sphyraenidae (3/3)
Sphyrnidae (3/3)
Stromateidae (1/1)
Tetraodontidae (2/2)
Trachipteridae (0/1)
Trichiuridae
0-110
0-1000
0-136
0-180
0-1 800
200-850
0-1
0-70
0-50
0-200
Les carangues regroupent six espèces du genre Caranx (photo 33 et photo 34) et Carangoides bartholomaei,
la carangue grasse. Ce sont des poissons d'une taille maximale de 69 à 124 cm et des poids maximaux de 5,1
à 32 kg. Elles se rencontrent au-dessus des fonds de 0 à 380 m. Leur période de ponte a lieu entre mars et août
à Cuba; elle s'étend le plus souvent sur trois mois dans la région. Elles se nourrissent surtout de poissons osseux
mais également de crabes, de crevettes, de langoustes et d’autres invertébrés benthiques, de céphalopodes voire
de méduses et de plantes. Leur niveau trophique est élevé, de 3,6 à 4,5. Leur vulnérabilité est modérée à élevée,
de 34 à 60 pour cent. Les six espèces ont fréquemment ou occasionnellement été signalées pour la ciguatera.
Les sérioles comptent trois espèces du genre Seriola. Leur distribution s'étend des fonds de 1 m à ceux de
360 m. Leurs tailles maximales sont comprises entre 78 et 190 cm, la sériole couronnée, S. dumerili, peut
atteindre le poids de 80,6 kg. Leurs régimes alimentaires sont similaires à ceux des carangues et leur niveau
trophique est de 4,5. Leur vulnérabilité est comparable à celle des carangues, de 42 à 74 pour cent. La sériole
limon, Seriola rivoliana, (photo 35) a fait l'objet de signalements fréquents de ciguatera.
Les prédateurs des carangues et sérioles sont les oiseaux (anous et sternes), les coryphènes, les thons, les
thazards, les makaires, les barracudas, les mérous et les dauphins.
Les Mussos comptent trois espèces du genre Selene: S. browni, S. setapinnis (photo 36) et S. vomer. Ce sont
des poissons de plus petites tailles, de 29 à 60 cm qui se rencontrent au-dessus des fonds de 0 à 110 m. Ils se
nourrissent de vers, de crabes et de crevettes. Leurs niveaux trophiques se situent entre 3,7 et 4,3. Leur
vulnérabilité est faible à modérée, de 24 à 31 pour cent. Les signalements de ciguatera causés par ses trois
espèces sont considérés comme douteux, restant à confirmer.
Parmi les autres Carangidae, figurent le cordonnier fil, Alectis ciliaris, de forme apparentée à celle des Caranx,
sa taille peut atteindre 1,50 m pour un poids de 22,9 kg; la carangue grasse, Carangoides bartholomaei, de
forme rappelant celle des carangues, dont la longueur peut atteindre 1,0 m pour un poids de 14 kg; le sapater,
Chloroscombrus chrysurus, (photo 37) de forme aplatie latéralement, sa taille maximale est de 65 cm pour un
faible poids maximal de 32 g.
�45
Les autres Carangidae sont le poisson pilote, Naucrates ductor, d'une taille maximale de 70 cm; les
pompaneaux sole, Trachinotus carolinus, plume, T. falcatus, et la palomine, T. ovatus, de tailles maximales
respectives de 64, 149 et 70 cm pour des poids de 3,8, 36,0 et 2,8 kg.
Les Carangidae sont capturés par des filets maillants, des casiers, des palangres, des lignes à main, des seines,
des seines de plage et des chaluts.
À ce groupe appartiennent six espèces de Scombridae: le bonitou, Auxis rochei rochei (photo 38); l'auxide,
Auxis thazard thazard; le thazard barré, Scomberomorus cavalla (photo 39); le thazard franc, S. regalis; le
wahoo, Acanthocybium solandri (photo 40) et la bonite à dos rayé, Sarda sarda. Ce sont des espèces plutôt
côtières; le wahoo se rencontre au-dessus des fonds de moins de 20 m, l'aire de distribution des autres espèces
s'étend plus au large, jusqu'aux fonds de 200 m. Les tailles maximales du bonitou et de l'auxide sont de 50 et
65 cm. Les quatre autres espèces sont plus grandes: 1,02 à 2,50 m. Ce sont des prédateurs qui se nourrissent
de crevettes pénéides, de calmars, mais surtout de nombreuses espèces de poissons osseux, des sardines aux
jeunes thons en passant par les carangues. Leurs niveaux trophiques sont élevés, de 4,3 à 4,5. Leurs
vulnérabilités sont faibles à élevées, de 27 à 63 pour cent. Les signalements de ciguatera concernent trois
espèces sur les cinq, ils sont plus fréquents chez le thazard barré.
Les barracudas et bécunes, famille des Sphyraenidae, appartiennent également à ce groupe par trois espèces.
La bécune chandelle, Sphyraena picudilla, la plus petite de ces espèces, ne dépasse pas 61 cm, la bécune
guachanche, S. guachancho (photo 41), et le barracuda, S. barracuda, atteignent 2,0 m pour 39.6 kg. Ce sont
des espèces bathypélagiques qui se rencontrent de la côte aux fonds de 100 m. Leur régime est constitué de
calmars, de crevettes mais principalement de poissons osseux d’espèces très diverses.
Leur niveau trophique est élevé, de 4,4 à 4,5. Le barracuda est un prédateur de la bécune chandelle. La daurade
coryphène, les makaires, les thons et les espadons sont des prédateurs des Sphyraenidae. Les barracudas ont
été signalés fréquemment pour des cas de ciguatera aux Îles Vierges britanniques et à Porto Rico, la bécune
chandelle, aux Îles Vierges britanniques. Leurs vulnérabilités sont élevées à très élevées, de 48 à 79 pour cent.
La daurade coryphène, Coryphaena hippurus, de la famille des Coryphaenidae se rencontre de 0 à 85 m sous
la surface. Sa taille peut atteindre 2,10 m pour un poids de 40 kg. Elle se nourrit de céphalopodes et de divers
poissons osseux. Son niveau trophique est de 4,4. Ses prédateurs sont des oiseaux marins, les thons, les
makaires, les espadons, la daurade coryphène (cannibalisme), des dauphins, des requins (Carcharhinidae et
Sphyrnidae). Sa vulnérabilité est moyenne, 40 pour cent. Sa toxicité par ciguatera n’est pas avérée.
Photo 31. Selar crumenophthalmus © de Mérona
B. (IRD)
Photo 32. Elagatis bipinnulata © Vallès H. (UWI)
Photo 33. Caranx crysos © de Mérona B. (IRD)
Photo 34. Caranx hippos © de Mérona B. (IRD)
Photo 35. Seriola rivoliana © Vallès H. (UWI)
Photo 36. Selene setapinnis © de Mérona B.
(IRD)
�46
Le cobia, Rachycentron canadum, de la famille des Rachycentridae, se rencontre de la côte jusqu'au large, audessus des fonds de 1 200 m. Sa taille peut atteindre 2,0 m pour un poids de 68 kg. Il se nourrit d’organismes
benthiques ou démersaux dont des mollusques bivalves, des crabes et de poissons démersaux ou de petits
pélagiques. Son niveau trophique est de 4,0. A la saison chaude, les individus se rassemblent pour la ponte. Sa
fécondité absolue est de 2 à 5 millions. Dans le golfe du Mexique la saison de ponte a lieu d’avril à octobre.
Sa vulnérabilité est moyenne, de 44 pour cent.
Le croupia, Lobotes surinamensis, de la famille des Lobotidae se rencontre de la côte aux fonds de 70 m. Sa
taille atteint 1,10 m pour 19 kg. Son régime est constitué de crustacés benthiques (crabes, crevettes), de
poissons démersaux et de petits pélagiques. Son niveau trophique est de 4,0. Sa vulnérabilité est moyenne, de
35 pour cent.
Le stromate lune, Peprilus paru (photo 42), Stromateidae, est une espèce benthopélagique qui se rencontre en
bancs au-dessus des fonds de 0 à 136 m. Sa taille maximale est de 30 cm. Son régime se compose de
zooplancton (méduses, hydraires), de zoobenthos (vers, crustacés benthiques) et de poissons. Son niveau
trophique est de 4,5 et sa vulnérabilité est de 17 pour cent.
L’allache, Sardinella aurita, se rattache à ce groupe car bien que côtière la distribution de ce Clupeidae s’étend
au large, au-dessus des fonds de 350 m. Sa taille maximale est de 30 cm. Elle se nourrit de phyto et
zooplancton, d’œufs et larves de poissons, de plantes. Son niveau trophique est de 3,4. La période de ponte a
lieu de septembre à février dans le golfe du Mexique. Sa vulnérabilité est modérée, de 36 pour cent. Ses
prédateurs sont les oiseaux marins, les wahoos, les carangues, les daurades coryphènes et les espadons.
Les exocets ou poissons volants, famille des Exocoetidae, comptent 14 espèces. L'exocet rayé, Cheilopogon
exsiliens, et l'exocet hollandais, Cypselurus comatus, ont une aire de distribution qui s'étend au large, dans
les eaux océaniques, les autres espèces sont au-dessus des fonds de moins de 100 m, parfois à proximité des
côtes. Leur taille maximale se situe entre 20 et 35 cm, leur niveau trophique entre 3,0 et 4,0; elles se
nourrissent de zooplancton, de phytoplancton, d'invertébrés, de crustacés planctoniques, de copépodes. Leur
vulnérabilité est comprise entre 10 et 21 pour cent.
Photo 37. Chloroscombrus chrysurus © de
Mérona B. (IRD)
Photo 38. Auxis rochei rochei © Vallès H. (UWI)
Photo 39. Scomberomorus cavalla © de Mérona B.
(IRD)
Photo 40. Acanthocybium solandri © Vallès H. (UWI)
Photo 41. Sphyraena guachancho © de Mérona B.
(IRD)
Photo 42. Peprilus paru © de Mérona B. (IRD)
�47
Le requin bordé, Carcharhinus limbatus, est un Carcharhinidae qui peut s’approcher des baies envasées, des
mangroves comme se trouver plus au large, au-dessus des tombants des récifs coralliens et jusqu’aux fonds de
100 m. Il mesure jusqu’à 2,75 m pour un poids de 123 kg. Son régime est constitué de poissons et de crustacés
benthiques. Son niveau trophique est de 4,4. Il est vivipare, avec des portées de 2 à 10 jeunes. La gestation
dure de 10 à 12 mois. Sa longévité est estimée à 20 ans. Sa vulnérabilité est élevée, de 55 pour cent. L'espèce
figure sur la liste rouge de l’IUCN comme quasi menacée. Cette espèce a été signalée dans quelques attaques
et à ce titre est considérée comme dangereuse.
Le requin nourrice, Ginglymostoma cirratum, un Ginglymostomatidae, est lui aussi considéré comme
dangereux pour l’homme. Il se rencontre de la côte aux fonds de 130 m, souvent au-dessus de bancs de sable
peu profonds ou aux abords de récifs coralliens; des jeunes individus se rencontrent autour des racines de
palétuviers. Sa taille atteint 4,30 m pour 110 kg. Solitaire et nocturne, son régime est constitué d’invertébrés,
de crabes, de crevettes, de langoustes, de gastéropodes (lambi), de poissons divers (pisquette, chirurgiens,
bourses etc.). Son niveau trophique est de 4,2. Il est ovovivipare, avec 21 à 28 jeunes par portée. Sa
vulnérabilité est très élevée, de 81 pour cent.
Les requins marteaux, famille des Sphyrnidae, sont représentés par trois espèces: le grand requin marteau,
Sphyrna mokarran, d'une taille maximale de 6,10 m pour un poids de 450 kg, se rencontre sur les fonds de 1
à 300 m; le requin marteau commun, Sphyrna zygaena, avec une taille maximale de 5,0 m pour un poids de
400 kg, se rencontre de la côte aux fonds de 200 m; le requin marteau halicorne, Sphyrna lewini, d'une taille
maximale de 4,40 m pour un poids de 152 kg se rencontre de la côte jusqu’au-dessus des fonds de 1 000 m.
Ces espèces sont vivipares, la gestation dure de 9 à 11 mois et les femelles portent de 12 à 42 jeunes. Leurs
régimes sont constitués de crabes, de crevettes, de langoustes, de calmars et de poissons. Leurs niveaux
trophiques sont respectivement de 4,3, 4,9 et 4,1. La longévité du requin marteau halicorne est estimée à 35
ans. Leurs vulnérabilités sont très élevées, de 81 à 86 pour cent. Les 3 espèces figurent sur la liste rouge de
l’IUCN: le grand requin et le requin marteau halicorne comme en danger, le requin marteau commun comme
vulnérable. Les trois figurent dans l’annexe II de la Cites et le grand requin et le requin marteau halicorne dans
l’annexe II de la CMS; à ce titre elles font l’objet de restrictions en matière de commercialisation.
La cartographie des occurrences dans la zone, montre une forte concentration d'occurrences au nord-ouest
d'Haïti, dans le passage du Vent; ailleurs les occurrences sont en grande majorité au-delà des eaux territoriales
(figure 19).
Figure 19. Cartographie sur l'ensemble de la zone d'étude des occurrences de 63 espèces des 65 du peuplement de
poissons pélagiques néritiques de la zone d'inventaire.
Bathymétrie: GEBCO; 67 242 occurrences: OBIS, GBIF, VertNet du 24/06/2021.
�48
3.2.1.8
Peuplement des poissons épipélagiques océaniques
Ce peuplement compte 32 espèces réparties dans 10 familles, toutes d'intérêt commercial (tableau 9). Dans ce
groupe sont rassemblées sept espèces de thons, Scombridae, cinq espèces de voiliers et makaires, Istiophoridae,
et l'espadon, un Xiphiidae (tableau 10). Ces espèces sont toutes très mobiles, aux aires de distribution à
l’échelle des bassins océaniques et aux déplacements pour la plupart transocéaniques (figure 20). Elles font
l'objet d'un suivi dans le cadre de la Commission internationale pour la conservation des thonidés de
l'Atlantique (CICTA) qui a édité un manuel en ligne sur ces espèces (ICCAT, 2016). Les sept espèces de
Scombridae sont: la thonine commune, Euthynnus alletteratus; le listao, Katsuwonus pelamis (photo 43);
l’albacore ou thon jaune, Thunnus albacares (photo 44); le thon à nageoires noires, T. atlanticus (photo 45);
le thon obèse, T. obesus; le thon rouge du nord, T. thynnus, et le germon16 ou thon blanc, T. alalunga (photo
46), bien que cette espèce signalée dans Fishbase en République dominicaine ne le soit pas en Haïti, elle est
signalée en Haïti depuis 1992 dans la base OBIS.
Tableau 9. Principales familles de poissons épipélagiques océaniques. Ce peuplement compte 32 espèces, toutes
commerciales.
Nom français (FAO)
Nom créole
Renard
Requin
Coryphène dauphin
Rémora
Makaire, voilier
Taupe bleue
Poisson lune
Requin baleine
Thon
Espadon
reken
reken
dorad
mèbalou, marlen
reken
reken
ton
Famille
(n esp comm/n esp)
Alopiidae (1/1)
Carcharhinidae (7/7)
Coryphaenidae (1/1)
Echeneidae (7/7)
Istiophoridae (5/5)
Lamnidae (1/1)
Molidae (1/1)
Rhincodontidae (1/1)
Scombridae (7/7)
Xiphiidae (1/1)
Profondeur Côtier Plateau Talus Abysses Domaine Domaine
littoral
néritique océanique
0-1 600
0-1 600
0-400
0-200
0-200
0-750
0-480
0-7000-1 500
0-2 878
Tableau 10. Nombre d'occurrences des espèces de Scombridae, Istiophoridae et Xiphidae signalées dans la zone
d'étude dans les bases OBIS, GBIF, VertNet le 24/06/2021 et fréquence d'occurrence de chaque espèce dans
l'ensemble de la famille.
Nom vernaculaire
Nom scientifique
occurrences
Scombridae
14 128
Thonine
Euthynnus
758
alletteratus
Listao
Katsuwonus pelamis
346
%
100%
5%
Nom vernaculaire
Nom scientifique
Istiophoridae
Voilier de l'Atlantique
Istiophorus albicans
2%
Espadon voilier
Germon
Thunnus alalunga
Albacore
Thunnus albacares
Thon à nageoires noires Thunnus atlanticus
2 252
4 889
1 465
16%
35%
10%
Makaire blanc
Makaire bleu
Makaire bécune
Thon obèse
Thon rouge du Nord
4 028
390
29%
3%
Espadon
Thunnus obesus
Thunnus thynnus
Istiophorus
platypterus
Kajikia albida
Makaira nigricans
Tetrapturus
pfluegeri
Xiphiidae
Xiphias gladius
occurrences
2 612
798
%
100%
31%
628
24%
612
548
26
23%
21%
1%
20 188
20 188
100%
100%
Ces espèces vivent en bancs, elles sont souvent agrégées sous des objets flottants. La thonine est l’espèce la
plus côtière qui se rencontre dès le domaine néritique. Les tailles maximales varient de 1,2 m pour la thonine
et le listao à 2,5 m pour le thon obèse pour 210 kg et 4,58 m pour le thon rouge pour 684 kg. Leurs régimes
sont variés, composés d’amphipodes, de céphalopodes, de crustacés benthiques, de poissons osseux type
anchois, sardines, orphies, carangues, etc., ainsi que de thons. Leurs niveaux trophiques se situent entre 4,3 et
4,5 selon les espèces. Chez l’albacore, le thon obèse et le listao, la reproduction a lieu toute l’année. Chez les
autres espèces la période de ponte varie selon leur localisation. Leurs vulnérabilités sont moyennes (listao) à
très élevées (thon rouge), variant de 38 à 82 pour cent. Quatre espèces sont inscrites sur la liste rouge de
l’IUCN: le germon et l’albacore, quasi menacées; le thon obèse, vulnérable et le thon rouge du nord, en danger.
Des cas de ciguatera ont été signalés impliquant le listao et la thonine.
Les makaires et les voiliers figurent au nombre de cinq espèces. Le makaire blanc de l’Atlantique, Kajikia
albida, est l’espèce la plus côtière, on le rencontre jusqu’au-dessus des fonds de 150 m, mais il peut également
avoir des déplacements transocéaniques (figure 20d). Les autres espèces sont nettement océaniques. Le
makaire bleu ou marlin bleu, Makaira nigricans (photo 47), est l’espèce la plus grande, sa longueur totale peut
atteindre 5,0 m pour un poids de 636 kg. Les principales proies des makaires sont des poissons osseux
16 Albacore en langue anglaise, à ne pas confondre avec l'albacore ou thon jaune, Thunnus albacares, en langue française.
�49
(sardines, carangues, daurades coryphènes, mérous, etc.), mais aussi des crabes et des céphalopodes. Leurs
niveaux trophiques se situent entre 4,4 et 4,5. Leurs vulnérabilités sont moyennes à élevées, de 41 à 65 pour
cent.
Le makaire blanc de l’Atlantique et le marlin bleu sont inscrits sur la liste rouge de l’IUCN comme espèces
vulnérables. Ces espèces ne présentent pas de risque de ciguatera.
L’espadon, Xiphias gladius, bien que l’espèce ne soit pas signalée en Haïti dans la base de Fishbase, figure
dans la base d’OBIS depuis 2005 et ses signalements sont également nombreux dans les bases VertNet et
GBIF. On le rencontre de la côte à des zones au large, au-dessus des fonds de 2 800 m. Il peut atteindre 4,55 m
de long pour un poids de 650 kg. L’espadon migrerait vers les eaux tempérées et froides en été pour revenir
en automne vers les eaux chaudes (figure 20f). La ponte a lieu au printemps au sud de la mer des Sargasses.
Les espadons se nourrissent de calmars, d’octopodes, de crustacés benthiques, mais surtout de poissons. C'est
un prédateur opportuniste qui recherche sa nourriture sur une large gamme de profondeur. Son niveau
trophique est de 4,5. Sa longévité est estimée à 19 ans. La vulnérabilité de cette espèce est très élevée, de 72
pour cent. Ces espèces sont capturées à la ligne, à la long-line, à la traine, au harpon et à la seine.
La coryphène dauphin, Coryphaena equiselis, est une espèce de Coryphaenidae plus petite que la daurade
coryphène, mesurant au maximum 127 cm pour un poids de 15 kg. Elle se rencontre plus au large, jusqu’audessus des fonds de 400 m. Elle se nourrit de calmars et de petits poissons. Son niveau trophique est de 4,4.
En Floride, la période de ponte a lieu de décembre à mars. Sa vulnérabilité est faible à moyenne, 35 pour cent.
Elle n’a pas été signalée dans des cas de ciguatera.
La môle ou poisson lune, Mola mola, de la famille des Molidae, vit entre la surface et 480 m de profondeur. Il
peut atteindre la taille de 3,68 m pour un poids de 2 300 kg. Son régime est constitué de zooplancton, de necton
(céphalopodes, poissons) et de zoobenthos comme les étoiles de mer. Sa longévité est de plusieurs dizaines
d'années. Son niveau trophique est de 3,7. Sa vulnérabilité est de 67 pour cent. Cette espèce est inscrite dans
la liste rouge de l'IUCN comme vulnérable.
Photo 43. Listao, Katsuwonus pelamis © Vallès
H. (UWI)
Photo 44. Albacore, Thunnus albacares © Vallès
H. (UWI)
Photo 45. Thon à nageoires noires, Thunnus
atlanticus © Vallès H. (UWI)
Photo 46. Le germon, Thunnus alalunga ©
Vallès H. (UWI)
Photo 47. Le marlin bleu, Makaira nigricans © Vallès H. (UWI)
�50
Figure 20. Déplacements de deux thonidés dans l'Atlantique: (a) le thon albacore, source: (IEO, 2006a) et (b) le
thon obèse, source: (IEO, 2006b); (c) aire de distribution du thon à nageoires noires, source: (Mathieu, Pau et
Reynal, 2013, 2013); déplacements (d) du makaire blanc, source: (Hooligan, 2013), (e) du voilier, source: (Arocha
et Ortiz, 2006) et (f) de l'espadon, source: (Abid et Idrissi, 2006).
Figure 21. Cartographie sur l'ensemble de la zone d'étude des occurrences des 32 espèces du peuplement de
poissons épipélagiques océaniques de la zone d'inventaire. Scombridae, Istiophoridae et Xiphiidae totalisent 83
pour cent des occurrences.
Bathymétrie: GEBCO; 45 037 occurrences: OBIS, GBIF, VertNet du 24/06/2021).
�51
3.2.1.9
Peuplement des poissons mésopélagiques océaniques
Ce peuplement réunit les espèces pélagiques occupant la couche d'eau située entre 200 m sous la surface et
1 000 m. Au-delà il s'agira de bathypélagiques jusqu'à 4 000 m puis d'abyssopélagiques jusqu'à 6 000 m puis
d'hadalpélagiques au-delà des 6 000 m de profondeur. Il compte 14 familles réunissant 49 espèces dont
seulement 15 sont signalées comme commerciales (tableau 11).
Tableau 11. Principales familles de poissons mésopélagiques océaniques. Ce peuplement compte 49 espèces dont
15 sont signalées comme commerciales.
Nom français (FAO)
Castagnole
Grandgousier pélican
Escolier
Poisson lune
Poissons lanterne
Haches
Dragon
Nom créole
Famille
(n esp comm/n esp)
Bathyclupeidae (0/1)
Bramidae (1/1)
Bregmacerotidae (0/1)
Eurypharyngidae (1/1)
Gempylidae (5/6)
Gibberichthyidae (1/1)
Lampridae (1/1)
Melamphaidae (2/2)
Melanocetidae (0/1)
Myctophidae (0/16)
Neoscopelidae (2/2)
Nomeidae (1/3)
Sternoptychidae (1/3)
Stomiidae (0/10)
Profondeur Côtier Plateau Talus Abysses Domaine Domaine
littoral
néritique océanique
505-677
0-800
50-2 735
500-7 625
0-1 200
320-1 100
0-500
50-3 000
100-6 370
0-8 000
250-1 180
0-1 000
100-2 056
0—5 000
Les escoliers, Gempylidae, réunissent six espèces dont cinq sont considérées comme commerciales. Ce sont
des poissons benthopélagiques allongés, pourvus de mâchoires dentées. Leur taille maximum varie de 25 cm
à 3,0 m; L'escolier rayé, Diplospinus multistriatus, et l'escolier reptile, Nealotus tripes, sont les plus petites
espèces, de 25 et 33 cm; les tailles maximales respectives de l'escolier serpent, Gempylus serpens, de l'escolier
noir, Lepidocybium flavobrunneum et de l'escolier longnez, Nesiarchus nasutus, sont de 1,0, 2,0 et 1,30 m; la
taille maximale du rouvet, Ruvettus pretiosus, est de 3,0 m pour un poids de 63,5 kg. Ces espèces se rencontrent
de la côte au large pour l'escolier serpent, au-dessus des fonds de 1 646 m. Leur régime est constitué de
zooplancton dont les crustacés planctoniques, les copépodes, les ostracodes, les euphausiacés, les calmars, de
crustacés benthiques et de poissons. Leur niveau trophique est situé entre 3,5 et 4,4. Leur vulnérabilité est
basse, 26 et 33 pour cent, chez les deux escoliers de petites tailles, elle est élevée, de 61 à 85 pour cent, chez
les espèces les plus grandes. La chair du rouvet, très chargée en huile, a des effets purgatifs.
Figure 22. Cartographie sur l'ensemble de la zone d'étude des occurrences de 48 espèces des 49 du peuplement de
poissons mésopélagiques océaniques de la zone d'inventaire.
Bathymétrie: GEBCO; 11 143 occurrences: OBIS, GBIF, VertNet du 24/06/2021.
�52
La castagnole caribéenne, Brama caribbea, de la famille des Bramidae, vit en théorie entre 0 et 800 m, ce qui
dans le cas d'Haïti n'infère pas un éloignement des côtes, compte tenu de la bathymétrie de la zone territoriale
(Cf. § 2.1). Sa chair est excellente mais les individus sont de petites tailles, au maximum de 25 cm. Son régime
est constitué de poissons de petite taille et de calmars et son niveau trophique est de 3,8. Sa vulnérabilité est
de 32 pour cent. Ce poisson est capturé par des long-lines et des palangres de fond.
Le Grandgousier pélican, Eurypharynx pelecanoides, de la famille des Eurypharyngidae, se distingue par une
gueule démesurée et une longue caudale effilée. Il vit entre 500 et 7 625 m sous la surface. Sa longueur peut
atteindre 1,0 m pour un poids estimé17 à 1,15 kg. Son régime consiste en céphalopodes, en poissons et en
zooplancton et son niveau trophique est de 4,11. Sa vulnérabilité est de 54 pour cent.
Le poisson-lune ou Opa, Lampris guttatus, de la famille des Lampridae, diffère du poisson-lune évoqué dans
le paragraphe précèdent, il se rencontre jusqu'à 500 m sous la surface. Sa taille peut atteindre 2,0 m pour un
poids de 270 kg. Son régime est constitué de céphalopodes, de crustacés et de jeunes poissons; son niveau
trophique est de 4,2 et sa vulnérabilité de 60 pour cent. Sa chair est réputée d'excellente qualité. Il est pêché
par des long-lines.
Les autres espèces sont de petites tailles ou sans intérêt commercial avéré. Il est à noter que 40 pour cent des
espèces de ce peuplement présentent un comportement nyctoépipélagique: les individus sont en profondeur de
jour et remonte à proximité de la surface la nuit, c'est le cas de tous les Myctophidae chez lesquels ce
comportement affecte surtout les stades juvéniles. Chez le dérivant des physalies, Nomeus gronovii, les
juvéniles sont dans les 30 m sous la surface et les adultes entre 200 et 1 000 m sous la surface.
La distribution spatiale des occurrences des poissons mésopélagiques océaniques montre une concentration au
nord-ouest d'Haïti au niveau du passage du Vent qui sépare Haïti de Cuba, elle est probablement due à une
présence importante de la flotte de pêche thonière états-unienne et des efforts de recherche qui y sont associés
(figure 22). Des détails des distributions spatiales des occurrences des thons et poissons à rostre sont fournies
plus loin (§ 4.3.22).
3.2.1.10 Peuplement des poissons bathypélagiques, bathyaux et abyssaux
Ce peuplement regroupe les espèces de poissons les plus profonds de cet inventaire. Trois familles regroupent
73 pour cent des espèces reconnues comme commerciales de ce peuplement (tableau 12).
Tableau 12. Principales familles de poissons bathypélagiques, bathyaux et abyssaux. Ce peuplement compte 30
espèces dont 19 sont signalées comme commerciales.
Nom français (FAO)
Nom créole
Ogre
Gonostome
reken
Grenadier
Rombou, limande
Roussette boa
Famille
(n esp comm/n esp)
Anoplogastridae (1/1)
Chaunacidae (0/1)
Diceratiidae (1/1)
Gonostomatidae (1/1)
Halosauridae (3/3)
Howellidae (0/1)
Ipnopidae (0/2)
Macrouridae (7/10)
Nettastomatidae (0/1)
Ophidiidae (4/4)
Paralepididae (0/1)
Paralichthyidae (1/1)
Phosichthyidae (0/1)
Rondeletiidae (0/2)
Scyliorhinidae (1/1)
Profondeur Côtier Plateau Talus Abysses Domaine Domaine
littoral
néritique océanique
2-4 992
220-1 060
0-1 500
25-4 470
440-2 560
100-1 829
800-3 477
100-2 380
326-2 858
1 0005 055
0-2 000
180-1 830
20-5 000
?-3 003
329-676
Les grenadiers, Macrouridae, au nombre de 10 espèces dont sept sont commerciales, ont une taille maximale
de 25 à 111 cm. Ils se rencontrent entre 100 et 2 380 m sous la surface. Ils se nourrissent de zooplancton, de
zoobenthos (crustacés benthiques) et de poissons; Leur niveau trophique est de 3,0 à 4,5 et leur vulnérabilité
est de 41 à 71 pour cent. Ils sont capturés par des chaluts de fond.
Les Ophidiidae, sous l'appellation générale d'abadèche, sont représentés par quatre espèces, toutes considérées
comme commerciales, de taille maximale de 24 à 30 cm. Leur niveau trophique est de 3,5 à 3,6; leur
17 Poids estimé à partir de l'équation taille-poids de l'espèce fournie par Fishbase
�53
vulnérabilité est de 28 à 33 pour cent. Ces espèces sont pêchées au chalut de fond et leurs populations se
révèlent particulièrement vulnérables à la surexploitation par la pêche chalutière.
La famille des Halausauridae compte trois espèces dans ce peuplement, toutes d'intérêt commercial. Ce sont
des poissons de taille moyenne, entre 55 et 60 cm de longueur maximale. Ils se rencontrent dans les eaux entre
440 et 2 560 m sous la surface. Leur niveau trophique est de 3,3 à 3,51. Leur vulnérabilité est de 32 à 35 pour
cent. Ces espèces qui remontent vers la surface sont capturées au chalut de fond et à la seine.
Les autres espèces sont d'intérêt secondaire; souvent des espèces de bycatch de la pêche chalutière visant des
ressources de crustacés profonds.
Les quatre dernières espèces commerciales de ce peuplement appartiennent à quatre familles:
• L'ogre, Anoplogaster cornuta, de la famille des Anoplogastridae est de petite taille, 18 cm au
maximum, qui se trouve le plus souvent entre 500 et 2 000 m sous la surface chez les adultes et entre
la surface et 5 000 m chez les jeunes. C'est un carnivore, son régime est constitué de crustacés et de
céphalopodes chez les jeunes et de poissons chez les adultes. C'est une proie des thons et des marlins.
• L'espèce, Bufoceratias thele, est un Diceratiidae qui a l'aspect d'une lotte. De petite taille, 16,2 cm au
maximum, il se rencontre jusqu'à 1 500 m sous la surface.
• Le gonostome à grandes dents, Sigmops elongatus, est un Gonostomatidae. Sa taille maximale est de
27,5 cm. Cette espèce connaît des migrations verticales nycthémérales, de nuit elle sera entre 100 et
800 m sous la surface et de jour elle sera entre 1 250 et 1 500 m sous la surface, voire jusqu'à 4 470 m.
• Le rombou à deux tâches, Citharichthys dinoceros, de la famille des Paralichthyidae, est un poisson
plat d'une taille maximale de 15 cm. C'est l'espèce la plus profonde de la famille, elle se rencontre sur
les fonds de 180 à1 830 m.
• La roussette boa, Scyliorhinus boa, est un petit requin profond de la famille des Scyliorhinidae, d'une
longueur maximale de 54 cm. Elle a été rencontrée sur les fonds de 329 à 676 m. Son régime carnivore
est constitué de crustacés benthiques, de céphalopodes et de poissons. Son niveau trophique est de 3,9
et sa vulnérabilité modérée à haute, de 49 pour cent. Comme les autres espèces de cette famille, la
pêche de cette espèce est intéressante pour la chair et pour l'huile extraite de son foie.
Ces quatre espèces sont capturées comme bycatch des pêches au chalut de fond. La dernière espèce peut faire
l'objet de pêche ciblée à la palangre de fond.
Figure 23. Cartographie sur l'ensemble de la zone d'étude des occurrences de 29 espèces des 30 du peuplement de
poissons bathypélagiques, bathyaux et abyssaux de la zone d'inventaire.
Bathymétrie: GEBCO; 6 745 occurrences : OBIS, GBIF, VertNet du 24/06/2021.
�54
Les occurrences des poissons bathypélagiques, bathyaux et abyssaux sont particulièrement peu nombreuses,
ces signalements provenant essentiellement de campagnes scientifiques mettant en œuvre des moyens
techniques appropriés, spécifiques et onéreux pour l'étude des espèces de grands fonds (figure 23).
3.2.2
Les mammifères marins
Ce groupe comprend 29 espèces réparties dans sept familles qui sont signalées dans la base de Sealifebase et
par la FAO (tableau 13). Parmi ces espèces, seules cinq sont signalées dans la base OBIS, les autres étant
signalées dans les ZEE voisines. L’objet du recensement de ces espèces est d’attirer l’attention sur ces espèces
qui sont nombreuses à susciter l’attention au niveau international pour leur fragilité: six figurent sur la liste
rouge de l’IUCN, toutes figurent dans l’annexe I ou II de la CITES et 17 dans l’annexe I ou II de la CMS, mais
bien que leur commerce soit interdit ou exceptionnel, elles sont mentionnées comme d'intérêt commercial. On
s’attardera sur les cinq espèces communes aux deux bases de données, les autres espèces seront rapidement
évoquées dans l’optique de leur conservation.
Tableau 13. Les 29 espèces de mammifères marins signalées dans la ZEE d'Haïti dont une espèce a été éradiquée
(†).
Nom français (FAO)
Baleine, Rorqual
Dauphin,
Globicéphale, Orque,
Épaulard
Cachalot
Cachalot
Baleine
Lamentin des Caraïbes
Phoque moine des
Caraïbes
Nom créole
Famille
(n esp comm/n esp)
Balaenopteridae (6/6)
Delphinidae (15/15)
Profondeur Côtier Plateau Talus Abysses Domaine Domaine
littoral
néritique océanique
0-4 000
0-8 000
Kogiidae (2/2)
Physeteridae (1/1)
Ziphiidae (3/3)
Trichechidae (1/1)
Phocidae (1/1)
0-1 989
0-3 200
0-8 000
0-13
†
La baleine à bosse: Megaptera novaeangliae fait partie des Balaenopteridae, elle est signalée dans la ZEE
d’Haïti et dans toutes celles des îles de la région (des Bahamas à Grenade). Cette espèce se reproduit dans les
eaux tropicales et migre vers les régions polaires ou subpolaires. D’importants rassemblements de baleines à
bosse sont observés entre janvier et mars au nord-est de la République dominicaine, dans la baie de Samana,
donnant lieu à une activité touristique. En Haïti l’espèce a été signalée à proximité de l’île de la Tortue. Le
régime de l’espèce est constitué de crustacés planctoniques et de poissons et son niveau trophique est de 4,3.
Sa vulnérabilité est de 56 pour cent. L’espèce fait l’objet de préoccupations mineures pour l’IUCN, en revanche
elle figure à l’annexe I de la CITES et à l’annexe I de la CMS. Les autres espèces de cette famille signalées
dans Sealifebase mais non dans la base OBIS sont: la baleine noire, Balaenoptera borealis; la baleine bleue,
B. musculus; le rorqual commun, B. physalus; le petit rorqual, B. acutorostrata et le rorqual de Bryde, B. edeni.
Les populations de baleine noire, de baleine bleue et de rorqual commun sont considérées comme en danger
par l’IUCN. Ces six espèces sont à l’annexe I de la CITES, leur commerce international est interdit.
L’épaulard ou orque: l’espèce Orcinus orca fait partie des Delphinidae ; elle a été signalée en Haïti et dans
toute la région mais à une plus faible fréquence que la baleine à bosse. En Haïti, elle a été signalée au large
d’Anse d’Hainault et au sud de Belle Anse. Les zones de concentrations de cette espèce se trouvent dans les
régions tempérées et subpolaires, les individus croisés dans la région appartiennent à des populations nomades
chez lesquelles les individus sont le plus souvent solitaires. L’IUCN n’a pas statué sur cette espèce par manque
de données mais elle est inscrite dans l’annexe II de la CITES; son commerce international est très réglementé.
Elle est également inscrite à l’annexe II de la CMS, donc ses captures sont réglementées. C’est un super
prédateur, il se nourrit de mammifères marins (dauphins, globicéphales, etc.), de grands poissons osseux
(espadons, makaires, thons, etc.), de raies (raies manta, aigles de mer, etc.), de requins, de calmars, de tortues
de mer. Son niveau trophique est de 4,6, la valeur la plus élevée de l’ensemble des espèces signalées dans cet
inventaire. Sa vulnérabilité est de 66 pour cent.
Le dauphin tacheté: Stenella attenuata est un Delphinidae, il a été signalé au sud de Port-Salut. Cette espèce
est plus fréquente au large de la Floride, dans le golfe du Mexique et aux Antilles. D’une taille maximale de
2,80 m, il vit en groupes plus ou moins importants, parfois se réduisant à la mère et son petit. Il se nourrit de
poissons, de calmars, de mollusques et de crustacés planctoniques. Son niveau trophique est de 4,5. Sa
vulnérabilité est de 84 pour cent. Il figure aux annexes II de la CITES et de la CMS.
�55
Le dauphin tacheté de l’Atlantique: Stenella frontalis est aussi un Delphinidae, il a été signalé au sud de PortSalut. L’espèce a été signalée au large de la côte nord de Cuba, elle est signalée à Porto Rico et aux Îles Vierges
britanniques mais sa présence est plus fréquente au large de la Floride. Ce dauphin reste plutôt au-dessus du
plateau continental. Sa taille maximale est de 2,3 m. Il se nourrit de céphalopodes (calmars, poulpes et
pieuvres), de poissons, en particulier de petits Carangidae. Son niveau trophique est de 4,5. Sa vulnérabilité
est de 67 pour cent. Il n’est pas évalué par l’IUCN par manque de données et figure à l’annexe II de la CITES.
Les autres espèces de Delphinidae non signalées par OBIS sont: Le dauphin commun, Delphinus delphis; le
dauphin de Riso, Grampus griseus; le dauphin de Fraser, Lagenodelphis hosei; le dauphin clymène, Stenella
clymene; le dauphin rayé, S. coeruleoalba; le dauphin longirostre, S. longirostris; le dauphin à bec étroit, Steno
bredanensis; le grand souffleur, Tursiops truncatus; l’orque pygmée, Feresa attenuata; la fausse orque,
Pseudorca crassidens; le globicéphale tropical, Globicephala macrorhynchus; le péponocéphale,
Peponocephala electra.
Le cachalot: Physeter macrocephalus est la seule espèce de la famille des Physeteridae signalée dans la zone.
Les signalements de cette espèce océanique sont fréquents dans toute la grande région, de la Floride au
Venezuela en passant par l’arc antillais. En Haïti, il a été signalé au sud des départements du Sud et du Sudest, entre la côte et 100 à 150 km au large, également au large, à l’ouest du département d’Artibonite. Parfois
très proches de la côte, moins de 10 km de la côte. C’est le plus imposant des mammifères marins à dents, avec
une longueur maximale de 24 m et un poids maximal de 57 t (la baleine bleue peut atteindre 33 m de long et
160 t mais ne possède pas de dents). Il se nourrit de nombreuses espèces de toutes tailles, de calmars, de
poisons comme l’espadon mais aussi de poissons démersaux. Il peut plonger jusqu’à plus de 2 000 m de
profondeur. Son niveau trophique est de 4,5. Sa vulnérabilité est de 64 pour cent. L’espèce est considérée
comme vulnérable par l’IUCN et figure sur sa liste rouge. Elle figure à l’annexe I de la CITES et son commerce
international est interdit. Elle figure aux annexes I et II de la CMS. La présence de cette espèce comme celle
de la baleine à bosse, peuvent-être des composantes attractives pour une activité de tourisme écologique.
Pour compléter l’exposé de ce groupe, trois espèces de Ziphiidae doivent être mentionnées: la baleine à bec de
Blainvile, Mesoplodon densirostris; la baleine à bec de Gervais, M. europaeus, et la baleine à bec de Cuvier,
Ziphius cavirostris. Il y a lieu de signaler également le lamentin des Caraïbes, Trichechus manatus, signalé
dans la base OBIS à Cuba, aux Îles Turques-et-Caïques et à Porto Rico, classé comme espèce vulnérable par
l’IUCN, figurant à l’annexe I de la CITES et aux annexes I et II de la CMS.
Figure 24. Cartographie sur l'ensemble de la zone d'étude des occurrences de 26 des 29 espèces de mammifères
marins de la zone d'inventaire.
Bathymétrie: GEBCO; 62 106 occurrences: OBIS, GBIF, VertNet du 23/06/2021.
�56
Enfin, doit être mentionné le phoque moine des Caraïbes, Monachus tropicalis, c'est la seule espèce de cet
inventaire reconnue comme éteinte ou exterminée (EX) par l'IUCN, statut reconnu en 1994 mais l'espèce
semble avoir disparu dès 1952. Peu d'informations sont disponibles sur son régime alimentaire et sa biologie.
À noter que la FAO a publié un document sur tous les mammifères marins du monde, facilitant leur
détermination (Jefferson, Learherwood et Webber, 1993).
La cartographie des occurrences des mammifères marins de la zone permet de visualiser les spots de
concentration comme celui de la baie de Samana au nord-est de la République dominicaine. En Haïti, les
occurrences les plus nombreuses se situent au sud-ouest (figure 24). À noter quelques points à l'intérieur,
correspondant à la présence de lamentins.
3.2.3
Les tortues marines
Cinq espèces de tortues marines sont signalées dans la zone par la FAO et Sealifebase, une sixième est
enregistrée dans la base OBIS (tableau 14). Ce sont toutes des espèces migratrices et toutes des espèces
menacées à des degrés divers, elles figurent toutes sur la liste rouge de l’IUCN ainsi que dans les annexes I de
la CITES et dans les annexes I et II de la CMS mais bien que leur commerce soit interdit ou exceptionnel, elles
sont mentionnées comme d'intérêt commercial.
Tableau 14. Les six espèces de tortues marines signalées dans la ZEE d'Haïti.
Nom français (FAO)
Tortue caouane,
verte, caret, de Kemp
Tortue luth
Nom créole
Famille
(n esp comm/n esp)
Cheloniidae (5/5)
Profondeur Côtier Plateau Talus Abysses Domaine Domaine
littoral
néritique océanique
0-2 100
Dermochelyidae (1/1)
0-1 250
Les tortues à écailles, famille des Cheloniidae, sont au nombre de cinq espèces: La tortue caouane, Caretta
caretta; La tortue verte, Chelonia mydas; La tortue Caret, Eretmochelys imbricata; La tortue de Kemp,
Lepidochelys kempii; la tortue olivâtre, L. olivacea. La dernière espèce qui a une carapace faite de cuir épais,
est la tortue luth, Dermochelys coriacea, une Dermochelyidae.
La tortue caouane (photo 48 et photo 49) est une espèce classée par l’IUCN comme vulnérable. Elle peut
mesurer jusqu’à 125 cm de long et peser jusqu’à 140 kg. Au large, elle se trouve dans les eaux à fort gradient
thermique et de chlorophylle, à thermocline peu profonde, de 50 m. Elle pénètre dans les eaux chaudes côtières,
parfois dans les estuaires, à proximité des plages de ponte. Elle se nourrit de méduses, de divers invertébrés,
de mollusques bivalves et gastéropodes, de crabes, de crevettes, d’algues (sargasses) et de poissons. Son niveau
trophique est de 3,9. L’âge de maturité sexuelle est estimé être atteint entre 12 et 30 ans (74 cm de long) en
Floride. Le cycle de reproduction est de 2 à 3 ans. La ponte a lieu au printemps et à l’été, à Cuba d’avril à
juillet. Au cours de cette période, la femelle va pondre à intervalle de deux semaines, de 90 à 110 œufs déposés
dans des nids creusés sur la plage. Sa vulnérabilité est de 71 pour cent. La synthèse réalisée par The U.S. Fish
and Wildlife Service fournira des données détaillées sur la biologie de cette espèce (Dodd, 1988).
Photo 48. Tortue caouane juvénile en plongée au large
des Açores en 1978: (© P. Vendeville)
Photo 49. Tortue caouane juvénile au large des Açores
en 1978, parasitée par des anatifes: (© P. Vendeville)
La tortue verte est classée par l’IUCN comme espèce en danger. Elle peut mesurer 105 cm de longueur de
carapace et peser 140 kg. Les adultes sont herbivores se nourrissant d’algues benthiques (Caulerpa spp.,
�57
Gracilaria spp., Sargassum spp., etc) et de Thalassia testudinum, parfois de méduses, de coraux, d’éponges
ou de vers, de mollusques gastéropodes et bivalves. Les stades jeunes sont carnivores et deviennent herbivores
lorsqu’ils atteignent une taille et une force suffisantes pour échapper à leurs prédateurs. Son niveau trophique
est de 2,1. L’âge de maturité est estimé se situer entre 12 et 25 ans (68 cm de long) au Costa Rica et entre 18
et 27 ans en Floride. En moyenne, le cycle de reproduction est de 2 ans il peut ne durer qu’une année ou bien
s’étendre jusqu’à quatre ans, selon leur degré d’alimentation. À Cuba, la ponte a lieu entre avril et octobre. Les
pontes sont espacées de deux semaines. La femelle dépose dans un nid sur la plage entre 20 et 250 œufs par
ponte. La vulnérabilité de cette espèce est de 79 pour cent.
La tortue caret est considérée par l’IUCN comme en danger critique. Elle peut mesurer jusqu’à 90 cm de
longueur de carapace et peser jusqu’à 120 kg. C’est une espèce carnivore, elle se nourrit d’éponges, de
méduses, de mollusques bivalves et gastéropodes, de calmars, de langoustes et d'autres crustacés, parfois de
coraux et d’algues. Son niveau trophique est de 3,2. Lorsqu’elle est proche des côtes, elle se rencontre sur les
fonds durs de roches ou de récifs coralliens où elle se nourrit d’éponges. Les périodes de reproduction sont
espacées de 2 à 3 ans. La maturité sexuelle surviendrait après 10 ans et plus probablement 20 ans (72 cm de
long). La période de ponte a lieu d’avril à août à Cuba et d’avril à octobre en République dominicaine. Le
nombre de pontes par saison est en moyenne de 2,3. Entre 60 et 220 œufs sont déposés par ponte dans le nid
sur la plage. L’incubation dure de 47 à 75 jours. Sa vulnérabilité est de 48 pour cent.
La tortue de Kemp est également considérée par l’IUCN comme en danger critique. La longueur maximale de
carapace observée est de 75 cm et le poids maximum de 48 kg. Elle se rencontre dans les eaux côtières sur les
fonds sableux ou vaseux riches en crustacés. C’est une espèce carnivore qui se nourrit de mollusques bivalves
et gastéropodes, d’oursins, de crustacés (crabes, crevettes, etc.) et de poissons. Son niveau trophique est de
3,5. Dans le golfe du Mexique sa maturité sexuelle est estimée être atteinte à la taille de 60 cm de longueur de
carapace, soit à l'âge de 10 ans. La saison de reproduction a lieu d’avril à juillet. Les femelles pondent d’une à
trois fois par saison de ponte. Elles déposent dans un nid creusé sur la plage en moyenne 102 œufs par ponte.
L’incubation dure de 45 à 58 jours. Sa vulnérabilité est de 34 pour cent.
Photo 50. De gauche à droite et de haut en bas: Tortue luth accostant sur la plage; tortues luth sur le lieu de ponte;
tortue luth en ponte et l'auteur; nid et œufs; tortue luth regagnant la mer après le ponte; jeunes tortues luth (5 à 7
cm) gagnant la mer après l'éclosion. Photos prises en Guyane en 1981: (© P. Vendeville)
�58
La tortue olivâtre est considérée comme vulnérable par l'IUCN. Sa carapace mesure jusqu'à 76 cm pour un
poids de 43.4 kg. Elle se rencontre dans les eaux côtières de faible profondeur et peut parfois rester sur le sable
des plages; au large elles forment souvent des groupes. Son alimentation est variée, constituée d'éponges, de
tuniciers, de plantes, de bivalves, de gastéropodes, de crustacés benthiques, d'œufs et de larves de poissons, de
céphalopodes. Son niveau trophique est de 3,38. La maturité survient à une taille de 49 à 62 cm. Le cycle de
reproduction est presqu'annuel et la ponte se produit tous les 14 à 28 jours, se répétant deux à huit fois par
saison. En moyenne 109 œufs sont pondus par ponte et l'incubation dure de 45 à 65 jours. Sa vulnérabilité est
de 50 pour cent.
La tortue luth (photo 50) est considérée par l’IUCN comme vulnérable. C’est la plus grande des tortues
marines, sa carapace peut atteindre 2,57 m et son poids maximal est de 950 kg (RITMO, 2019). Elle vit le plus
souvent en pleine mer pouvant plonger jusqu’à 1 230 m de profondeur. Elle reste habituellement dans la
couche supérieure d’eau de 200 m. Les adultes se nourrissent de zooplancton, d’éponges, de méduses, de
tuniciers, de crustacés, de calmars, de jeunes poissons. Son niveau trophique est de 4,2. En Atlantique NordOuest, la maturité sexuelle serait atteinte à l’âge de 16 ans, sa carapace mesure alors 121 cm. Le cycle de ponte
est de 2 à 3 ans. La période de ponte a lieu de mars à juillet en Atlantique. La femelle pond quatre à cinq fois
par saison de ponte, déposant à chaque fois entre 60 et 125 œufs. L’incubation dure entre 50 et 78 jours. Sa
vulnérabilité est de 85 pour cent.
Les tortues marines ont longtemps été exploitées pour leur chair très appréciée et leur carapace commercialisée
entière ou fournissant des produits dérivés; les œufs étaient ramassés pour être consommés, la croyance
populaire leur attribuant des effets aphrodisiaques.
Les prédateurs des tortues marines en mer rassemblent les prédateurs océaniques comme les requins (Lamnidae
et Carcharhinidae), les thons, les orques; les prédateurs néritiques comme les Carangidae, les mérous, les
thazards, les vivaneaux, les barracudas; les prédateurs terrestres, actifs sur les adultes lors de la ponte et sur les
jeunes à l’éclosion, sont les oiseaux de mer et de rivage, des mammifères terrestres domestiques comme les
chiens ou sauvages mais aussi les reptiles comme les iguanes et les serpents. Les anatifes qui se fixent sur la
carapace des tortues (photo 49) représentent un danger pour elles car l'augmentation de leur volume qui en
résulte nécessite de leur part de plus grands efforts lors des plongées pour se nourrir et à terme les épuiser et
les affamer. Enfin, les rejets de plastiques, notamment les sacs plastiques, présentent des dangers car ils sont
facilement ingérés par les tortues.
La protection des tortues passe par une réglementation de la pêche à proximité des plages de ponte et en période
de ponte: interdiction de pêche; réduction des temps de calée des filets pour réduire les risques de noyade des
tortues; utilisation d'engins de pêche plus sélectifs.
Figure 25. Cartographie sur l'ensemble de la zone d'étude des occurrences des six espèces de tortues
marines de la zone d'inventaire.
Bathymétrie: GEBCO; 6 242 occurrences: OBIS, GBIF, VertNet du 25/06/2021.
�59
La synthèse sur les tortues marines du monde, publiée par la FAO fournira des indications complémentaires
sur la biologie des espèces et facilitera leur détermination (Márquez, 1990).
La distribution spatiale à partir des occurrences enregistrées dans trois bases de données internationales montre
une concentration au nord-ouest, dans le passage du Vent. Des enregistrements réguliers au nord de Cuba et à
l'est de la zone d'étude suggèrent un artefact dû par exemple à des signalements par carrés de 1°x1° et non à
des positionnements géo référencés (figure 25).
3.2.4
Les crustacés
Sur les 253 espèces signalées dans la zone d'Haïti (tableau 15), moins du quart présenteraient un intérêt pour
la pêche et la consommation humaine selon les informations fournies par Sealifebase et la FAO (op. cit), les
autres intervenant dans les relations trophiques comme cela a pu être indiqué dans les paragraphes précédents
(copépodes, amphipodes, isopodes, stomatopodes, etc.). Ce paragraphe se focalisera sur les espèces d'intérêt
commercial dont 96 pour cent appartiennent à l'ordre des décapodes (crevettes, langoustes, cigales,
langoustines, crabes, anomoures). Cet ordre compte 183 espèces dans la zone d'inventaire, ce qui est peu en
comparaison des 1 056 espèces recensées aux Petites Antilles (Poupin, 2018)18.
Tableau 15. Principales familles de crustacés qui comptent 253 espèces dont 55 sont signalées comme
commerciales.
Nom français (FAO)
Nom créole
Amphipodes
Copépodes
Isopodes
Isopode
Isopode
Isopode
Isopode géant
Isopode
Isopode
Stomatopodes
Stomatopode, squille
Stomatopode, squille
Stomatopode, squille
Cirripèdes
Anatife commun
Crevettes
Crevette nettoyeuse
Crevette impériale
Gamba de Bartlett
Crevette fantome
Crevette nettoyeuse
Bouquet
Crevette pénéide
chévrèt, kribich
Crevette danseuse
Sergeste atlantique
Salicoque
Crevette nettoyeuse
(crevette)
Langoustes, cigales, langoustines
Langoustine
Langoustes
oma
(langoustine)
Cigales
Famille
(n esp comm/n esp)
5 familles (0/8)
14 familles (0/36)
Profondeur Côtier Plateau Talus Abysses Domaine Domaine
parasite
littoral
néritique océanique
(pa)
0-20
0-4 206
Aegidae (0/1)
Anthuridae (0/1)
Bopyridae (0/6)
Cirolanidae (1/3)
Cymothoidae (0/4)
Sphaeromatidae (0/1)
0-93 (pa)
0-95
1-73 (pa)
1-2 300
(pa)
0-127
Bathysquillidae (0/1)
Gonodactylidae (0/4)
Squillidae (0/4)
604-1 519
0-76
0-824
Lepadidae (1/1)
0-75
Alpheidae (0/4)
Aristeidae (5/5)
Benthesicymidae (0/1)
Callichiridae (0/1)
Lysmatidae (1/1)
Palaemonidae (6/6)
Penaeidae (7/8)
Rhynchocinetidae (0/1)
Sergestidae (0/1)
Solenoceridae (1/2)
Stenopodidae (1/1)
Stylodactylidae (0/1)
0-122
50-5 060
600-5 777
0-91
5-15
0-73
0-828
0-5
0-2 500
165-1 850
1-200
155-530
Nephropidae (3/3)
Palinuridae (3/3)
Polychelidae (0/2)
Scyllaridae (2/4)
293-1 300
0-90
200-5 124
0-457
18 L'ouvrage est illustré de nombreuses photos et fournit des informations sur les distributions bathymétriques. En complément, plus
de 3 000 photos sont également accessibles en ligne à l'adresse: http://crustiesfroverseas.free.fr/lesser-antilles.php .
�60
Nom français (FAO)
Crabes
Migraine pointillée
Migraine
Tourteau poïnclos
Crabe bombé antillais
(crabe)
(crabe)
Crabe araignée
Crabe cagneux
Tombourou matoutou
Grapse, Anglette
Homole
(crabe)
(crabe)
Crabe caillou
Crabe royal des
Caraïbes
Crabe mantou
Nom créole
krab matoutou
krab
krab
krab
(crabe)
(crabe)
Crabe plat des oursins
(crabe)
Plagusie déprimée
Crabe porcelaine
crabe
Crabe des palétuviers
(crabe)
(crabe)
Anomoures
Bernard-l'hermite
Bernard-l'hermite
Bernard-l'hermite
Bernard-l'hermite
Bernard-l'hermite
Bernard-l'hermite
Bernard-l'hermite
3.2.4.1
sirik
Famille
(n esp comm/n esp)
Profondeur Côtier Plateau Talus Abysses Domaine Domaine
parasite
littoral
néritique océanique
(pa)
Aethridae (1/1)
Calappidae (4/4)
Cancridae (1/1)
Carpiliidae (0/1)
Domeciidae (0/1)
Dromiidae (1/4)
Epialtidae (1/8)
Eriphiidae (0/1)
Gecarcinidae (1/3)
Grapsidae (2/6)
Homolidae (0/1)
Inachidae (0/3)
Leucosiidae (0/4)
Menippidae (1/2)
Mithracidae (1/15)
0-160
0-421
0-575
1-50
0-40
0-360
0-225
0-5
0-2
0-5
10-682
1-690
0-915
0-60
0-179
Ocypodidae (1/8)
Oziidae (0/1)
Panopeidae (0/8)
Parthenopidae (0/4)
Percnidae (1/1)
Pilumnidae (0/5)
Pinnotheridae (0/2)
Plagusiidae (0/1)
Porcellanidae (0/7)
Portunidae (8/12)
Sesarmidae (0/5)
Varunidae (0/1)
Xanthidae (0/11)
-4-1
Albuneidae (0/1)
Chirostylidae (0/3)
Diogenidae (0/7)
Hippidae (0/1)
Munidopsidae (1/1)
Paguridae (0/4)
Pylochelidae (0/1)
0-8
161-2 412
0-318
0- ?
?- 1 281
0-389
0-80
0-622
0-20
0-52
0-73
0-149
0-550
0-2
0-5
0-311
Amphipodes, copépodes et isopodes
Ces groupes réunissent 61 espèces dont seulement une seule espèce, un isopode, est d'intérêt commercial. Ces
espèces ont été répertoriées dans cet inventaire car elles reviennent souvent dans les proies de poissons et
d'autres vertébrés marins signalés dans la zone. Des campagnes scientifiques s'intéressant à ces organismes se
sont déroulées dans la ZEE d'Haïti, notamment des campagnes soviétiques en 197019; cet inventaire pourra
contribuer à compléter les inventaires sur la biodiversité marine du pays (Cf §7.1, annexe I, annexe IV).
L'isopode géant, Bathynomus giganteus, de la famille des Cirolanidae, dont la longueur totale peut atteindre
50 cm vit sur les fonds de 310 à 2 300 m. L'intérêt s'est porté sur cette espèce qui était capturée comme bycatch
des pêcheries de crabes profonds au casier. Son régime est constitué de zooplancton (copépodes), de vers, de
crevettes, d'isopodes et de céphalopodes et son niveau trophique est de 3,4.
Le nombre restreint d'occurrences de copépodes dans la région fait état d'un investissement en recherche sur
la biodiversité défaillant. Il en est de même des isopodes chez lesquels les occurrences sur la zone d'inventaires
sont très rares (annexe II - figure 110).
19 En 1970, les ZEE n'étaient pas encore mises en place et dans ce cas il faut lire
«la future ZEE d'Haïti».
�61
3.2.4.2
L'anatife
L'anatife commun, Lepas (Anatifa) anatifera, de la famille des Lepadidae, est un organisme pélagique qui se
fixe sur des objets flottant ou sur les coques de bateaux. Son aire de distribution s'étend de la côte aux fonds
de 75 m, ce qui reste théorique compte tenu de son comportement envahissant et de son mode de colonisation.
Son régime alimentaire est constitué de plantes, de détritus, d'invertébrés planctoniques et son niveau trophique
est de 2,58. Un de ses principaux prédateurs est la coryphène.
3.2.4.3
Les stomatopodes (squilles)
Ce groupe comprend neuf espèces réparties entre trois familles. Aucune n'est signalée comme commerciale
mais dans certains pays, notamment en Asie, ces espèces sont considérées comme des mets délicieux et sont
pêchées et commercialisées. Sinon, elles sont capturées comme bycatch de pêcheries chalutières crevettières
au chalut de fond. Les informations sur ces espèces fournies par Sealifebase sont réduites (noms scientifiques
et vernaculaires, gamme bathymétrique), aucune information sur les tailles n'est fournie. Les documents de la
FAO (op. cit.) ne présentent que deux espèces, de grande taille (tailles maximales de 18,5 cm et 30 cm) qui ne
sont pas signalées dans la zone d'inventaire. Un inventaire sur l'île d'Hispaniola a permis de compléter et de
consolider l'inventaire (Herrera- Moreno et Betancourt-Fernández, 2003).
Les signalements d'occurrences de stomatopodes dans la zone d'étude sont rares; en Haïti, seul un signalement
au nord de l'île de la Tortue figure sur la carte de distribution spatiale (annexe II, figure 111).
3.2.4.4
Les crevettes
La taxonomie des crevettes a connu au cours des quarante dernières années de profondes modifications; la
détermination de leurs noms scientifiques pourra s'appuyer sur des ouvrages de référence (Holthuis, 1980,
FAO, 1978, Cervigón et al., 1993, FAO, 2002a) et la base de données de référence mondiale en matière
taxonomique WoRMS qui prend en charge les synonymes et les dénominations passées.
La plupart des crevettes sont capturées au chalut de fond mais dans certaines conditions (fonds trop accidentés
pour pouvoir être chalutés, faibles capacités financières pour acquérir des moyens de production onéreux) et
pour certaines espèces, elles sont capturées par des trémails, des casiers, des éperviers, des carrelets, des
haveneaux, des seines de plage20.
Chez les crevettes, 32 espèces sont signalées dans la ZEE d'Haïti dont 20 sont signalées comme commerciales:
sept espèces de Penaeidae dont six espèces du plateau s'étendant parfois au haut de talus et une bathyale, cinq
espèces d'Aristeidae bathyales, cinq espèces de Palaemonidae toutes amphihalines, une espèce de
Solenoceridae bathyale, deux espèces (une Lysmatidae et une Stenopodidae) commercialisées comme espèces
ornementales.
Photo 51. Penaeus schmitti © de Mérona B. (IRD)
Photo 52. Penaeus subtilis © de Mérona B. (IRD)
20 Pour plus d'informations, voir: VENDEVILLE, P. 1990. Tropical Shrimp fisheries types of fishing gears used and their selectivity.
FAO Fisheries Technical Paper, 261, 75 pp. https://www.documentation.ird.fr/hor/fdi:31399
�62
Chez les Penaeidae, cinq espèces sont du genre Penaeus:
•
La crevette ligubam du sud, P. schmitti (photo 51), est la plus côtière, elle se rencontre sur des fonds
vaseux, sablo-vaseux ou sableux entre 0 et 50 m de profondeur. La taille maximale des femelles est
de 235 mm, celle des mâles, de 175 mm. Les juvéniles se rencontrent dans les estuaires. Diurne, elle
se nourrit de détritus, d’algues, de plantes, de vers, de mollusques et de petits crustacés. Sa
vulnérabilité est de 10 pour cent.
•
La crevette café, P. subtilis (photo 52), est une espèce benthique qui se rencontre sur des fonds vaseux,
sablo-vaseux ou des fonds de coquilles mortes, entre 1 et 90 m de profondeur. Comme chez tous les
Penaeidae, cette espèce présente un dimorphisme sexuel par la taille; les femelles sont plus grandes,
maximum de 205 mm; les mâles, plus petits, atteignent une taille maximale de 152 mm. L’espèce est
diurne, son régime est omnivore, constitué de détritus, de petits organismes vivants ou de cadavres de
poissons ou d’autres organismes. Sa croissance est rapide. Sa reproduction a lieu toute l’année, les
œufs sont benthiques, les larves planctoniques. Sa vulnérabilité est faible, de 10 pour cent.
•
La crevette ligubam du nord, P. setiferus, vit sur le même milieu mais s'étendant plus au large sur le
plateau, jusqu'aux fonds de 119 m. Sa taille maximale est de 175 mm chez les mâles, de 200 mm chez
les femelles. Elle a le même régime détritivore, omnivore et son niveau trophique est de 2,88. Sa
vulnérabilité est de 11 pour cent.
•
La crevette royale grise, P. aztecus, et la crevette rodché du nord, P. duorarum, sont signalées au nord
dans la région des trois baies (Miller, 2018) mais ne sont pas signalées en Haïti dans Sealifebase, ni
dans les documents FAO (op. cit), ni dans OBIS, ni dans GBIF. Ces deux espèces sont abondantes en
Floride et dans le golfe du Mexique. Leurs tailles maximales sont de 195 mm chez les mâles et 236 mm
chez les femelles de P. aztecus et de 269 mm chez les mâles et 280 mm chez les femelles de
P. duorarum. Leurs aires de distribution s'étendent de la côte jusqu'aux fonds de 200 m pour la
première et jusqu'aux fonds de 330 m pour la seconde. Leurs niveaux trophiques respectifs sont de
2,93 et 2,98 et leurs vulnérabilités sont de 10 et 13 pour cent.
•
La crevette rose du large, Parapenaeus longirostris, est plus profonde, elle se rencontre sur les fonds
de sable ou de vase de 20 à 828 m. La taille maximale des femelles est de 186 mm, celle des mâles de
160 mm. Son régime est constitué de détritus, d’algues, de plantes, de vers, de mollusques et de petits
crustacés. C'est une proie des pieuvres et des poulpes, des carangues, des rougets, des daurades, des
vivaneaux. Son niveau trophique est de 3,68. Sa vulnérabilité est de 10 pour cent.
Figure 26. Cartographie sur l'ensemble de la zone d'étude des occurrences de 28 espèces de crevettes sur les 32 de
la zone d'inventaire.
Bathymétrie: GEBCO; 9 009 occurrences: OBIS, GBIF du 21/06/2021.
�63
Les Aristeidae sont des crevettes profondes bathyales et abyssales. La crevette impériale, Aristaeopsis
edwardsiana, se rencontre sur des fonds vaseux de 274 à 1 850 m, le plus souvent entre 400 et 900 m. Les
femelles mesurent jusqu’à 334 mm longueur totale (LT), les mâles, 193 mm LT. Omnivore, elle se nourrit de
céphalopodes (calmars et octopodes), de crevettes, d’échinodermes, de vers, de poissons; son niveau trophique
est de 3,95. Sa vulnérabilité est de 10 pour cent. La crevette Gambon rouge, Aristaeomorpha foliacea, se
rencontre dès les fonds de 60 m et jusqu'à 1 300 m. La taille maximale est de 170 mm chez les mâles et 225 mm
chez les femelles. La crevette pourprée, Aristeus antillensis, se rencontre sur le talus entre 324 m et 1 144 m
de profondeur. La taille maximale est de 112 mm chez les mâles et 193 mm chez les femelles. Les deux
dernières espèces, Cerataspis monstrosus et Hepomadus tener, sont plus profondes: la première entre 495 et
5 060 m, la seconde entre 600 et 3 780 m. Peu d'informations sur ces espèces ont pu être recueillies.
La salicoque royale rouge, Pleoticus robustus, de la famille des Solenoceridae est une crevette profonde des
fonds vaseux et sableux entre 180 et 1 850 m de profondeur. La taille maximale des femelles est de 225 mm,
celle des mâles de 180 mm. Elle se nourrit de petits organismes benthiques. Sa vulnérabilité est de 29 pour
cent.
La crevette menthe, Lysmata ankeri, de la famille des Lysmatidae, est une crevette nettoyeuse des fonds
coralliens et des fonds à éponges tubulaires, entre 5 et 15 m de profondeur. Sa taille peut dépasser les 50 mm.
C'est une espèce qui intéresse le marché des espèces ornementales destinées aux aquariums publics et des
aquariophiles privés.
La grande crevette nettoyeuse, Stenopus hispidus, une Stenopodidae, qui peut se rencontrer jusqu'à une
profondeur de 200 m, mais qui généralement se trouve dans les 40 premiers mètres dans les coraux ou les
éponges. C'est la plus grande crevette nettoyeuse, elle mesure de 4 à 9 cm. Elle se nourrit des parasites des
poissons. Elle est vendue entre 19 et 30 € l'unité sur le marché aquariophile français.
La distribution spatiale des crevettes fait état de quelques occurrences dans la ZEE d'Haïti sensu stricto. Sur la
zone d'étude, les occurrences plus nombreuses sont observées sur des zones où un large plateau continental
permet une pêche chalutière crevettière comme au sud-ouest, au large du Honduras et du Nicaragua; au nord,
autour de la Floride (figure 26).
3.2.4.5
Les langoustes, cigales et langoustines
Ce groupe réunit 12 espèces dont huit sont signalées comme d'intérêt commercial et de haute valeur. Ces
espèces sont capturées surtout au casier ou au chalut de fond, parfois à la main en plongée ou au harpon. Un
document de la FAO consacré aux homards et langoustes facilitera la détermination de ces espèces (Holthuis,
1991).
Les langoustes, Palinuridae, comptent trois espèces, toutes commerciales.
•
La langouste blanche, Panulirus argus, se rencontre sur les fonds rocheux, les récifs et les herbiers
pouvant lui offrir une protection, de la côte à 90 m de profondeur. Sa taille commune est de 200 mm
LT, elle peut atteindre 450 mm. C’est une espèce migratrice et grégaire. Les femelles migrent vers des
fonds plus profonds pour pondre; la migration se fait à la file indienne à raison d’au moins 50 individus
par groupe. Son régime alimentaire est constitué d’algues, de plantes, d’éponges, de mollusques
bivalves et gastéropodes, de crabes. Son niveau trophique est de 3,4. Sa vulnérabilité est de 35 pour
cent.
•
La langouste brésilienne, Panulirus guttatus, est une espèce plus côtière qui se rencontre de la côte
aux fonds de 20 m surtout dans les récifs coralliens, sinon dans les zones rocheuses côtières ou dans
les herbiers. Sa taille commune est de 150 mm LT et sa taille maximum de 200 mm LT. L’espèce est
nocturne, se nourrissant de détritus, de plantes et de déchets animaux. Son niveau trophique est estimé
entre 2,2 et 2,8. Sa vulnérabilité est de 10 pour cent.
•
La langouste indienne, Panulirus laevicauda (photo 53), se rencontre sur les fonds rocheux ou
coralliens côtiers, jusqu’à 50 m de profondeur. Commune à la taille de 200 mm LT, sa taille maximale
est de 310 mm LT. Son régime est plutôt carnivore, se nourrissant d’organismes lents ou blessés,
facilement capturables. Sa vulnérabilité est de 21 pour cent.
�64
Les cigales, Scyllaridae, sont représentées par quatre espèces en Haïti, deux d'entre elles présentent un intérêt
pour la commercialisation et l’exportation.
• La cigale savate, Parribacus antarcticus, de longueur totale maximale de 200 mm, se rencontre sur des
fonds rocheux ou coralliens parsemés de sable, de la côte aux fonds de 20 m. Nocturne, c’est une espèce
omnivore opportuniste. Son niveau trophique se situe entre 2,2 et 2,8. Sa vulnérabilité est de 10 pour cent.
• La cigale Marie-carogne, Scyllarides aequinoctialis (photo 54), est plus grande, sa taille atteint 300 mm
LT. Elle se rencontre sur des fonds sableux, de la côte jusqu’à 180 m de profondeur. Elle se nourrit de
débris de plantes et d’animaux morts. Son niveau trophique est de 2,2. Sa vulnérabilité est de 20 pour
cent.
• L'espèce Bathyarctus faxoni, est signalée sur les fonds de 229 à 457 m. Les données sur sa taille et sur
son écologie sont rares.
• La petite cigale de mer, Scyllarus chacei, se rencontre sur les fonds de graviers et sables grossiers entre
11 et 329 m. Les informations sur cette espèce, sur sa taille et sur son écologie sont rares.
Les langoustines, Nephropidae, sont des espèces plus profondes.
• La langoustine arganelle, Acanthacaris caeca, peut atteindre 400 mm de longueur totale, sa taille
commune est de 250 mm. Elle se rencontre sur des fonds meubles entre 4 et 974 m, mais le plus souvent
entre 550 et 830 m. Sa vulnérabilité est de 30 pour cent.
• La langoustine bicolore, Nephropsis rosea, est une espèce plus petite, d’une taille commune de 130 mm
LT. Elle se rencontre sur les fonds de 420 à 1 260 m, le plus souvent entre 500 et 800 m.
• La langoustine Nephropsis neglecta, de plus petite taille, 75 mm au maximum, est signalée sur des fonds
de 654 à 1 300 m. Son intérêt commercial est mineur.
Photo 53. Panulirus laevicauda © de Mérona B. (IRD)
Photo 54. Scyllarides aequinoctialis © de Mérona B.
(IRD)
Figure 27. Cartographie sur l'ensemble de la zone d'étude des occurrences des 12 espèces de langoustes, cigales et
langoustines de la zone d'inventaire.
Bathymétrie: GEBCO; 2 155 occurrences: OBIS, GBIF du 23/06/2021.
�65
Deux autres espèces de cette famille sont signalées en République dominicaine mais non en Haïti: la
langoustine de Floride, Nephropsis aculeata, et la langoustine épineuse, Nephropsis agassizii, de 120 à
140 mm de longueur totale maximale. Ces espèces sont potentiellement présentes.
Pouvant être assimilées aux langoustines, deux espèces de la famille des Polychelidae font partie de ce groupe:
Stereomastis sculpta et Willemoesia leptodactyla. Ce sont des espèces profondes qui se rencontrent sur les
fonds de 200 à 5 124 m. Elles ne présenteraient pas d'intérêt commercial.
Étonnement seules trois occurrences géo référencées des espèces de ce groupe ont été signalée dans la ZEE
d'Haïti. Il s'agit de la cigale Marie-carogne, Scyllarides aequinoctialis, signalée au niveau des Gonaïves et au
sud ouest et de Stereomastis sculpta, une espèce profonde sans intérêt commercial, signalée au sud de la ZEE.
Dans la région, les occurrences sont en majorité sur le plateau continental (figure 27).
3.2.4.6
Les crabes
Les espèces de crabes répertoriées dans la région se répartissent en 28 familles et 121 espèces dont 23 sont
signalées d'intérêt commercial. Certaines espèces sont capturées au chalut mais la plupart à la main, au casier,
par des pièges ou à la seine de plage.
Les Portunidae, la famille la plus riche en nombre d'espèces, en comptent 12 et huit d'entre elles signalées
comme commerciales feraient l’objet de pêche commerciale. Chez ces espèces le mâle est plus grand que la
femelle. Parmi les plus communs, le crabe bleu, Callinectes sapidus, d’une largeur maximale de 227 mm, se
rencontre dans les mangroves, sur les plages, dans les estuaires et sur les fonds à algues ou à débris coquillers
jusqu’à 90 m de profondeur. Son régime est varié: détritus, méduses, vers, mollusques bivalves et
gastéropodes, poissons et l'espèce est sujette au cannibalisme. Son niveau trophique est de 3,4. Sa vulnérabilité
est de 13 pour cent. Également commun, le «crabe gris», C. ornatus, d’une largeur maximale de 130 mm, se
rencontre le long de la côte à 75 m de profondeur, sur des fonds de sable ou de vase. Il présente une large
tolérance aux salinités (de 0 à 50‰). Son régime est constitué de détritus, d’échinodermes, de cnidaires, de
vers, de mollusques, de crustacés benthiques et de poissons. Son niveau trophique est de 3,6. Sa vulnérabilité
est de 10 pour cent. Le crabe chancre, C. bocourti, est également très répandu. D’une largeur maximale de
160 mm, il se rencontre dans les eaux saumâtres et en mer sur des fonds de sables ou de roches jusqu’à 40 m
de profondeur. Son régime est comparable à celui de l’espèce précédente et son niveau trophique est de 3,5.
Sa vulnérabilité est de 10 pour cent.
Les autres espèces sont le crabe lénée, C. danae, présent dans les estuaires et de la côte aux fonds de 75 m,
avec une largeur maximale de carapace de 139 mm; le crabe liré, C. exasperatus, présent dans les estuaires et
de la côte aux fonds de 75 m, avec une largeur maximale de carapace de 129 mm; le crabe marbré,
C. marginatus, présent dans les estuaires et le long de la côte aux fonds de 421 m, avec une largeur maximale
de carapace de 142 mm; le crabe tacheté, Achelous spinimanus (photo 55), présent entre la côte et les fonds de
393 m avec une largeur de carapace maximale de 92 mm; le crabe cyrique, Arenaeus cribrarius,
benthopélagique, se rencontre à proximité des plages, entre la côte et les fonds de 68 m, avec une largeur
maximale de carapace de 141 mm.
Les migraines flamboyantes, Calappa flammea, jaune, C. galloides, ocellée, C. ocellata, et bouclée,
Cyclozodion angustum, de la famille des Calappidae, sont aussi des espèces commerciales. Leurs largeurs de
carapace maximales sont de 4,5 à 14 cm. C. ocellata se rencontre de la côte aux fonds de 80 m, C. galloides,
jusqu'aux fonds de 220 m, C. flammea, jusqu'à 262 m et C. angustum, sur les fonds de 15 à 421 m (Felder et
al., 2009). Le niveau trophique de C. flammea est de 4,57.
La migraine pointillée (photo 56), Hepatus pudibundus, longtemps rattachée à la famille des Calappidae,
appartient à la famille des Aethridae. C'est une espèce commerciale prisée. Elle vit de la côte aux fonds de
160 m. Fréquemment capturée par les pêcheries chalutières crevettières, elle contribue à leur bycatch. D'une
largeur maximale de carapace de 82 mm, elle se nourrit d'algues, de plantes, de vers polychètes, d'invertébrés
benthiques. Son niveau trophique est de 3,22. Sa vulnérabilité n'a pas été estimée.
�66
Photo 55. Achelous spinimanus © de Mérona B. (IRD)
Photo 56. Hepatus pudibundus, vue dorsale et ventrale, d'une femelle (en haut) et d'un mâle (en bas) © de
Mérona B. (IRD)
Les Ocypodidae, comptent huit espèces dont six sous l'appellation de violonistes. Ce sont des crabes des
mangroves et des vasières qui, bien qu'ils ne soient pas signalés comme d'intérêt commercial contribuent à
l'alimentation locale.
Le crabe mantou, Ucides cordatus, appartenant à cette famille fait exception. Il est signalé comme espèce
d'intérêt commercial. C'est un crabe de mangroves qui vit dans des terriers jusqu’à 70 cm de profondeur. Sa
largeur maximale est de 100 mm, il se nourrit de détritus, de feuilles et de racines de palétuviers (Avicennia
germinans et Rhizophora mangle) et de débris organiques. Son niveau trophique est de 2,0.
Le crabe royal des Caraïbes, Maguimithrax spinosissimus21 de la famille des Mithracidae est un crabe de
profondeur qui se trouverait sur les fonds durs de graviers et de débris coquillers entre 0 et 179 m22 de
profondeur mais qui selon d’autres sources serait plus côtier, sur des fonds coralliens de 0 à 40 m. Sa largeur
maximale est de 140 mm.
Parmi les autres espèces commerciales figurent: le tourteau poïnclos, Cancer irroratus, Cancridae qui se
rencontre de la côte aux fonds de 575 m; le crabe spongieux, Dromia erythropus, un Dromidae, entre la côte
et les fonds de 360 m; l'araignée de mer, Stenocionops spinosissimus, un Epialtidae, de largeur de carapace
maximale de 140 mm qui est capturé sur les fonds de 35 à 225 m; le tombourou matoutou, Cardisoma
guanhumi, un Gecarcinidae côtiers d'une largeur de carapace maximale de 150 mm, vivant sur les fonds de 0
à 2 m; deux espèces de la famille des Grapsidae, le grapse ensanglanté, Goniopsis cruentata, et l'anglette
commune, Grapsus grapsus, espèces côtières vivant sur les fonds de 0 à 2 m pour la première et 0 à 5 m pour
la seconde, de largeurs de carapace maximales respectives de 56 et 87 mm; enfin le crabe caillou noir, Menippe
mercenaria, est un Menippidae d'une largeur de carapace maximale de 130 mm, qui se rencontre de la côte
aux fonds de 60 m.
21 La nomenclature de cette espèce et de cette famille a été révisée (Cf. Worms: http://www.marinespecies.org/). Dans la base
Sealifebase l’espèce est répertoriée sous le nom de Mithrax spinosissimus et la famille encore sous le nom de Majidae.
22 Selon https://www.sealifebase.ca/summary/Mithrax-spinosissimus.html
�67
Sur les 121 espèces de crabes inventoriées seules 23 sont signalées comme d'intérêt commercial. Cette
évaluation semble être largement sous-estimée car comme il a été indiqué dans le cas des crabes violonistes,
de nombreuses espèces qui ne donnent pas lieu à des pêches officiellement ciblées contribuent à l'alimentation
locale dans les communautés de pêcheurs, notamment les espèces de rivage qui entrent dans la préparation de
soupes ou d'autres plats traditionnels.
La cartographie des occurrences de 102 espèces parmi les 121 signalées, a été établie à partir des bases OBIS
et GBIF. Celles-ci sont dans leur majorité accolées à la côte (figure 28).
3.2.4.7
Les anomoures
Ce groupe rassemble les espèces communément dénommées Bernard-l'hermite, les faux crabes et les galathées.
16 espèces appartenant à sept familles ont été signalées dans la zone d'inventaire dont une seule, la galathée
Munidopsis longimanus, Squat lobster (En), de la famille des Munidopsidae, est signalée comme d'intérêt pour
la pêche. Elle se rencontre jusqu'à 1 281 m. C'est une espèce de bycatch des pêcheries crevettières chalutières
profondes. Peu d'informations sont fournies par Sealifebase.
Figure 28. Cartographie sur l'ensemble de la zone d'étude des occurrences de 102 espèces des 121 espèces de crabes
de la zone d'inventaire.
Bathymétrie: GEBCO; 10 185 occurrences: OBIS, GBIF du 21/06/2021.
�68
3.2.5
3.2.5.1
Les mollusques
Les céphalopodes
Dans la région ont été recensés 32 espèces de céphalopodes décapodes (calmars, encornets, seiches et spirules)
et 17 espèces de de céphalopodes octopodes (pieuvres et poulpes) (tableau 16).
L'une des particularités générales à tous les céphalopodes réside dans le fait que les reproducteurs, mâles et
femelles, ne survivent pas à la reproduction et meurent très vite après le frai. La taille des céphalopodes est le
plus souvent mesurée en longueur du manteau (LM).
Les informations sont extraites des documents FAO (op. cit.) et de la base mondiale Sealifebase. Cette base
est moins renseignée que Fishbase (réservée aux poissons), ainsi la vulnérabilité a été estimée à 50 pour cent
des espèces et le niveau trophique pour les deux tiers.
Chez les Loliginidae, deux espèces ont été signalées dans la zone d'inventaire, toutes deux présentent un intérêt
commercial. Le calmar ris, Sepioteuthis sepioidea, a une taille maximale de 20 cm de longueur de manteau.
C’est une espèce benthique et démersale qui vit sur des herbiers et des récifs coralliens entre 0 et 20 m. Il se
nourrit de crevettes et de petits poissons. Son niveau trophique est de 3,8. Sa vulnérabilité est de 10 pour cent.
Le calmar à gros yeux, Doryteuthis (Amerigo) ocula, plus petit, d'une longueur maximale de manteau de 13 cm,
est démersal et se rencontre entre 250 et 360 m de profondeur. Il se nourrit de crustacés, de céphalopodes et
de petits poissons. Sa vulnérabilité serait de 10 pour cent.
Le calmar flèche, Doryteuthis (Doryteuthis) pleii (photo 57), est un autre Loliginidae, qui n'est pas signalé en
Haïti dans Sealifebase ni dans les bases OBIS et GBIF, mais qui est signalé par la FAO (FAO, 2002a). Bien
que l'espèce n'ait pas été intégrée à cet inventaire, sa présence est hautement probable. Plus grand que les deux
espèces précédentes, sa taille maximale est de 35 cm. Il présente un réel intérêt commercial. Il se rencontre
jusqu'à 366 m de profondeur. Le jour il est proche du fond, la nuit il migre dans la colonne d'eau, proche de la
surface. Son niveau trophique est de 4,3. Sa vulnérabilité est de 25 pour cent.
Tableau 16. Principales familles de céphalopodes qui comptent 49 espèces dont 29 sont signalées comme
commerciales.
Nom français (FAO)
Nom créole
Décapodes
Encornet cachalot
Encornet bras courts
Chirocalmar
Calmar pectiné
sicilienne
Encornet-outre
Discoloutène rond
Encornet étoile
Loutène de Joubin
Calmar
calama
Encornet-poulpe
Encornet
calama
Cornet crochu,
encornet baleine
Encornet boubou
Sépiole
Spirule
Chipiloua commun
Octopodes
Poulpe gelée géant
Argonaute
Poulpe pélagique
Poulpe, Pieuvre
chat wouj
Discopoulpe d'Agassiz
Poulpe manteau violet
Poulpe vitreux
Famille
(n esp comm/n esp)
Profondeur Côtier Plateau Talus Abysses Domaine Domaine
littoral
néritique océanique
Ancistrocheiridae (0/1)
Brachioteuthidae (0/2)
Chiroteuthidae (0/2)
Chtenopterygidae (0/1)
1-700
0-3 000
200-1 500
200-1 000
Cranchiidae (0/5)
Cycloteuthidae (0/1)
Enoploteuthidae (1/1)
Joubiniteuthidae (0/1)
Loliginidae (2/2)
Octopoteuthidae (1/2)
Ommastrephidae (4/4)
Onychoteuthidae (1/3)
0-2 000
1-700
0-2 000
1-3 500
0-360
200-2 000
0-1 500
0-1 080
Pyroteuthidae (1/2)
Sepiolidae (1/3)
Spirulidae (0/1)
Thysanoteuthidae (1/1)
1-800
14-2 622
100-1 750
0-2 604
Alloposidae (0/1)
Argonautidae (1/2)
Bolitaenidae (0/2)
Octopodidae (7/9)
Opisthoteuthidae (0/1)
Tremoctopodidae (0/1)
Vitreledonellidae (0/1)
0-6 787
0-1 280
100-4 000
0-1 200
100-1 935
0-250
0-1 000
�69
Photo 57. Doryteuthis (Doryteuthis) pleii © de Mérona B. (IRD)
Le Chipiloua commun, Thysanoteuthis rhombus, de la famille des Thysanoteuthidae, est une espèce plus
grande: la longueur maximale de son manteau est de 1 m pour un poids maximal de 30 kg. Il se rencontre de
la côte aux fonds de 2 604 m et est sujet à des migrations nycthémérales dans la colonne d'eau. Son régime est
constitué de zoobenthos (octopodes, crustacés benthiques, stomatopodes), de necton (céphalopodes, calmars,
seiches et poissons). Son niveau trophique est de 4,49 et sa vulnérabilité est élevée, de 60 pour cent.
Les encornets de la famille des Ommastrephidae sont présents avec quatre espèces dont la plus commune est
l’encornet rouge, Illex coindetii. C’est une espèce pélagique qui se rencontre au-dessus des fonds de 0 à
1 000 m, le plus souvent entre 100 et 600 m. La longueur maximale de son manteau est de 32 cm. L’espèce se
nourrit en surface mais aussi au fond, d’œufs et de larves de poissons et de crustacés, de crevettes, de
céphalopodes, de poissons. Son niveau trophique est de 3,9. Sa vulnérabilité est de 21 pour cent. Les trois
autres espèces: encornet volant, Ommastrephes bartramii, oiseau, Ornithoteuthis antillarum, et dos orange,
Sthenoteuthis pteropus, se rencontrent jusqu’aux fonds de 1 500 m. Leurs niveaux trophiques sont compris
entre 4,1 et 4,4.
L'encornet boubou, Pterygioteuthis giardi, de la famille des Pyroteuthidae, est une espèce de petite taille: 4 cm
LM, pélagique elle se rencontre de la côte aux fonds de 600 m. Comme beaucoup de décapodes, elle se
rapproche de la surface la nuit. Son régime est constitué de crustacés planctoniques, de copépodes, d'ostracodes
et de cnidaires. Son niveau trophique est de 3,36 et sa vulnérabilité de 10 pour cent.
Les cornets crochus, de la famille des Onychoteuthidae, sont présents par deux espèces. Le cornet crochu,
Onychoteuthis banksii, qui atteint la taille de 37 cm LM et se rencontre de la côte aux fonds de 800 m; le cornet
crochu des Caraïbes, Onykia carriboea, plus petit, jusqu'à 10 cm LM, qui se rencontre de 1 à 200 m de
profondeur. Leurs régimes sont constitués de zooplancton, de copépodes, de cnidaires, de céphalopodes, de
poissons, leurs niveaux trophiques sont de 3,8, et 3,6. Leur vulnérabilité est de 20 pour cent.
L'encornet poulpe dana, Taningia danae, de la famille des Octopoteuthidae, est le plus grand des céphalopodes
décapodes signalés dans la zone d'inventaire. C'est une espèce pélagique océanique qui se rencontre à 385395 m sous la surface. Sa taille atteint 1,70 m LM pour un poids de 64,4 kg. Il se nourrit de crustacés
planctoniques et de poissons, son niveau trophique est de 4,07. C'est la proie des pélagiques océaniques (thons,
espadons, barracudas, etc.), de requins Carcharhinidae pélagiques et de cétacés (dauphins, orques, cachalots).
Sa vulnérabilité est très élevée, de 90 pour cent. L'encornet-poulpe de Ruppell, Octopoteuthis sicula,
appartenant à la même famille est également signalé dans la zone. Sa taille est plus petite, 20 cm LM. Sa
distribution spatiale est moins étendue.
Bien que l'intérêt pour la pêche n'ait pas été renseigné chez de nombreuses espèces, quelques-unes méritent
d'être évoquées. Les chirocalmars, Chiroteuthidae, comptent deux espèces. Ce sont des espèces profondes des
fonds de 200 à 1 500 m, leur taille est de 20 à 25 cm LM. Ils se nourrissent de zoobenthos, de céphalopodes et
de poissons, leur niveau trophique est de 3,8 à 4,0. Le calmar pectiné sicilien, Chtenopteryx sicula, de la famille
des Chtenopterygidae, est également une espèce des eaux profondes, de 200 à 1 000 m. Ces calmars évoluent
en pleine eau et remontent près de la surface la nuit. Leur taille ne dépasse pas 10 cm LM. Leur régime consiste
en zooplancton, en cnidaires et mollusques et leur niveau trophique est de 4,0. Les encornets-outre, de la
famille des Cranchiidae, rassemblent cinq espèces dont les tailles maximales vont de 11 à 42 cm LM. Ils se
rencontrent de la côte aux fonds de 2 000 m. Leur régime consiste en crustacés planctoniques, invertébrés et
poissons, leur niveau trophique est de 3,6 à 4,5.
Les seiches sont représentées par trois espèces de sépioles de la famille des Sepiolidae. Leurs tailles maximales
sont entre 2,5 et 5 cm LM. Elles se rencontrent au-dessus des fonds de 18 à 2 622 m. Leur régime est constitué
de zoobenthos dont les crevettes et leur niveau trophique est de 3,6. Leur vulnérabilité est de 10 pour cent.
�70
Les Octopodidae comptent sept espèces de poulpes et une pieuvre. La pieuvre commune, Octopus vulgaris, se
rencontre aussi bien sur des fonds meubles sableux ou vaseux que sur des fonds durs de roches ou de graviers
ou des récifs coralliens et sur des herbiers de la côte jusqu’à 200 m de profondeur. Sa longueur totale maximale
est de 120 cm pour un poids de 10 kg. Elle se nourrit de zooplancton, de mollusques bivalves et gastéropodes,
d’oursins, de calmars, de crustacés benthiques (crabes, crevettes), de poissons; son niveau trophique est de
3,74. Les sexes sont séparés mais comme chez les six autres espèces de cette famille, les reproducteurs mâles
et femelles meurent peu de temps après la reproduction. Sa vulnérabilité est très élevée, de 78 pour cent. Dans
cette famille quatre espèces de poulpes sont exploitées: les poulpes ris, Octopus briareus, bourdon, O. filosus,
dana, Pteroctopus schmidti, et licorne, Scaeurgus unicirrhus. La taille maximale du poulpe ris est de 100 cm
de longueur totale pour un poids de 1,5 kg; les tailles maximales des autres espèces sont comprises entre 5,7
et 9 cm de longueur de manteau. Ce sont des espèces benthiques. Le poulpe ris est plus côtier, il se rencontre
de la côte aux fonds de 20 m, les autres se rencontrent plus au large jusqu'à des fonds de 200, 400 et 1 200 m
dans le cas du poulpe dana. La vulnérabilité du poulpe ris est élevée, de 60 pour cent, celle des autres espèces
serait de 10 pour cent.
L'argonaute papier, Argonauta argo, et l'argonaute mineur, A. hians, de la famille des Argonautidae sont des
espèces pélagiques contrairement aux octopodes précédents. La première espèce d'une taille maximale de
12 cm LM; se rencontre de la côte aux fonds de 200 m, son intérêt commercial est signalé. Son régime
alimentaire comprend des méduses et des hydrozoaires, son niveau trophique est de 4,5 et sa vulnérabilité de
10 pour cent. La seconde espèce d'une taille maximale de 4 cm LM se rencontre de la côte aux fonds de
1 280 m. Son régime consiste en crustacés et invertébrés planctoniques, en méduses, en hydrozoaires, en
céphalopodes et en poissons. Son niveau trophique est de 3,9.
Sont également pélagiques deux espèces de poulpes de la famille des Bolitaenidae: le poulpe pélagique
pygmée, Bolitaena pygmaea et le poulpe pélagique translucide, Japetella diaphana. Leurs tailles maximales
respectives sont de 6 cm LM et de 12 cm en longueur totale. Le premier se rencontre au-dessus des fonds de
100 à 1 400 m, le second sur des fonds de 200 à 4 000 m. Leurs régimes sont similaires à ceux des espèces
précédentes et leurs niveaux trophiques sont respectivement de 3,7, et 3,6.
Le calmar géant, Architeuthis dux, n'a pas été signalé dans la zone proche d'Haïti. Il est néanmoins signalé à
l'est de la Floride et dans le golfe du Mexique. Les espèces les plus grandes dans la ZEE haïtienne sont donc
l'encornet poulpe dana, Taningia danae, avec un poids pouvant atteindre 64,4 kg et le Chipiloua commun,
Thysanoteuthis rhombus, pour un poids maximal de 30 kg.
La cartographie des occurrences fait état de signalements au nord de Cuba, d'Haïti et de la République
dominicaine dénotant avec seulement 1 636 enregistrements, une carence de signalements pour ce groupe
faunistique (figure 29).
Figure 29. Cartographie sur l'ensemble de la zone d'étude des occurrences de 41 espèces de céphalopodes sur les
49 de la zone d'inventaire.
Bathymétrie: GEBCO; 1 636 occurrences: OBIS, GBIF du 21/06/2021.
�71
3.2.5.2
Les bivalves
Les 187 espèces signalées dans la zone appartiennent à 41 familles différentes, seulement 47 espèces sont
signalées d'intérêt commercial, mais la plupart d'entre elles sont consommées localement en soupes et
bouillons, d’autres sont utilisées comme appât (tableau 17). Les informations sur les espèces sont souvent
incomplètes dans Sealifebase, en particulier sur le niveau trophique (9 valeurs/187 espèces), la vulnérabilité
(17 valeurs /187espèces), les noms scientifiques et les noms de la famille d'appartenance ne sont pas toujours
actualisés et a fortiori leurs usages sont rarement renseignés.
Les bivalves sont des espèces filtreuses qui se nourrissent de plancton; leur niveau trophique est de 2,0. La
plupart des bivalves sont gonochoriques (à sexes séparés), quelques-unes dont des peignes (Pectinidae) sont
hermaphrodites protandres, pendant la première partie de leur vie les organes mâles sont fonctionnels, les
organes femelles prennent le relai ensuite. Elles vivent en majorité sur des fonds de sable ou de vase; les
jambonneaux, famille des Pinnidae, sont dans les herbiers que peuvent occuper également des peignes, famille
des Pectinidae. Les deux espèces les plus profondes sont Propeamussium dalli, une Propeamussiidae et
Basterotia quadrata, une Basterotiidae, la première d'une taille maximale de 75 mm se rencontre entre 106 et
1 472 m, la seconde qui se rencontre de la côte aux fonds de 1 170 m, est une espèce de petite taille (moins de
20 mm). La distribution bathymétrique de plus des deux tiers de ces bivalves ne dépasse pas les fonds de
100 m.
Tableau 17. Principales familles de bivalves qui comptent 187 espèces dont 47 sont signalées comme commerciales.
Nom français (FAO)
Nom créole
Arche
Bucarde jaune
Donace, Flion
Lime
Lucine
Mactre ailée
Huître-marteau des
Caraïbes
Modiole tulipe
Huitre des palétuviers
Peigne
Aile d’ange
Jambonneau
Lucine
zwuit
Sanguinolaire ridée
Huître perlière
Tagal corpulent
Couteau antillais
Huître épineuse
Telline
Vénus, Tivelle
paloud
Famille
(n esp comm/n esp)
Anatinellidae (0/1)
Anomiidae (0/1)
Arcidae (6/14)
Basterotiidae (0/1)
Cardiidae (4/11)
Carditidae (0/1)
Chamidae (0/5)
Corbulidae (0/5)
Crassatellidae (0/2)
Cuspidariidae (0/1)
Donacidae (3/6)
Dreissenidae (0/2)
Gastrochaenidae (0/1)
Glycymerididae (0/2)
Hiatellidae (0/1)
Isognomonidae (1/3)
Limidae (1/3)
Lucinidae (1/13)
Mactridae (1/2)
Malleidae (0/1)
Profondeur Côtier Plateau Talus Abysses Domaine Domaine
littoral
néritique océanique
0-134
0-128
0-200
0-1 170
0-366
Mytilidae (1/6)
Noetiidae (0/1)
Nuculanidae (0/1)
Ostreidae (2/6)
Pectinidae (4/8)
Pholadidae (1/3)
Pinnidae (4/4)
Propeamussiidae (0/1)
Psammobiidae (2/4)
Pteriidae (2/3)
Semelidae (0/3)
Solecurtidae (1/2)
Solenidae (1/1)
Spondylidae (1/2)
Tellinidae (4/26)
Teredinidae (0/10)
Thyasiridae (0/1)
Trapezidae (0/1)
Ungulinidae (0/3)
Veneridae (7/24)
Verticordiidae (0/1)
0-109
0-128
0-274
0-200
0-366
0-49
0-256
106-1 472
0-9
0-150
0-75
0-24
0-525
0-101
0-110
50-225
0-55
0-55
6-80
0-110
0-800
0-101
0-277
0-202
0-100
1-550
0-140
0-180
0-59
2-417
0-229
0-215
76-510
�72
Les Arcidae comptent six espèces d'intérêt pour la pêche: l'arche ovale, Lunarca ovalis; l'arche auriculée,
Anadara notabilis; l'arche incongrue, A. brasiliana; l'arche zèbre, Arca zebra; l'arche crochue, A. imbricata,
et l'arche granuleuse, Tegillarca granosa. La première espèce se rencontre de la côte aux fonds de 68 m, les
deux suivantes jusqu'à 75 m, la quatrième jusqu'à 140 m, la cinquième jusqu'à 64 m et la dernière jusqu'à 20 m.
La vulnérabilité de l'arche ovale est estimée à 38 pour cent, celle de l'arche granuleuse, à 10 pour cent.
Chez les Cardiidae, quatre espèces sont signalées comme commerciales: la bucarde géante de l'Atlantique,
Dinocardium robustum, se rencontre de la côte jusqu'à 30 m de profondeur, son diamètre maximal est de
119 mm; la bucarde jaune, Dallocardia muricata, d'un diamètre maximal de 70 mm, se rencontre jusqu'à 84 m;
la bucarde fraisine, Americardia media, plus petite, d'un diamètre maximal de 35 mm est plus profonde, jusqu'à
185 m; Fulvia laevigata, d'un diamètre maximal de 70 mm, se rencontre de la côte à 75 m, sa distribution
géographique se situerait majoritairement en Indonésie. Trois espèces de Donacidae sont d'intérêt commercial:
la flion des Caraïbes, Donax denticulatus, la flion ridée, D. striatus, et le donace géanté, Iphigenia brasiliensis;
les deux premières espèces, de tailles réduites (25 mm) sont sur des fonds peu profonds, respectivement de
moins de 1 m et de moins de 2 m, la troisième, de plus grande taille (65 mm) se rencontre jusqu'à 20 m. La
lime rêche ou coquille Saint-Jacques flamme ou pétoncle flamme, Ctenoides scaber, est un Limidae de 75 mm,
qui se rencontre de la côte jusqu'aux fonds de 227 m. La lucine tigrée américaine, Codakia orbicularis, est une
Lucinidae de 85 mm qui se trouve jusqu'à 93 m de profondeur. La mactre ailée, Mactrellona alata, est une
Mactridae de 100 mm qui se rencontre de 10 à 30 m. La modiole tulipe, Modiolus americanus, est une
Mytilidae de 110 mm, elle se fixe au substrat par un byssus entre 1 et 11 m de fond. Elle est consommée
bouillie, marinée ou grillée.
L’huître creuse des Caraïbes, Crassostrea rhizophorae, est une huître de mangrove de la famille des Ostreidae,
d'une taille maximale de 120 mm, elle est fixée sur les racines des palétuviers, Rizophora mangle, mais elle
peut être rencontrée jusqu'à 50 m de profondeur. Cette espèce a subi une surexploitation dans de nombreuses
régions ; en outre, elle est particulièrement sensible aux contaminations d’origine organique. Elle est
consommée crue, frite, grillée ou bouillie et éventuellement conditionnée en boite. De la même famille, l'huître
creuse américaine, C. virginica, est plus grande, jusqu'à 300 mm, elle se rencontre fixée sur des fonds durs, de
roche ou de coquilles morte de la côte aux fonds de 79 m; contrairement à C. rhizophorae dont la distribution
s'étend de Cuba aux côtes nord de l'Amérique du sud, la distribution de cette espèce s'étend dans une zone plus
nord, de la Floride à l'ouest du golfe du Mexique; ses populations ont été fortement diminuées par une
surexploitation et par la contamination par des pollutions organiques. Une troisième espèce d'huître, l'huître
africaine de mangrove, C. tulipa, a été signalée dans la région des trois baies, au nord d'Haïti (Miller, 2018)
mais n'est signalée dans la zone par aucune des bases de données (FAO; Sealifebase; OBIS; GBIF); sa taille
maximale est de 140 mm, elle se rencontre dans les mangroves de palétuviers, Rizophora mangle.
Chez les Pectinidae, quatre espèces de peignes ont un intérêt commercial: le peigne de Laurent, Euvola
laurenti, se rencontre entre 7 et 40 m; le peigne zigzag, Euvola ziczac, se rencontre entre 1 et 151 m; la coquille,
Nodipecten nodosus, entre la côte et 185 m; le peigne calicot, Argopecten gibbus, est le plus profond, entre la
côte et 366 m. Leurs tailles maximales se situent entre 60 et 150 mm. Ces quatre espèces présentent un grand
intérêt commercial, faisant partie de ces espèces commercialisées sous l’appellation coquille Saint-Jacques. La
longévité du peigne calicot est de 18 à 24 mois; sa reproduction et son recrutement ont lieu toute l’année.
L'aile d'ange, Cyrtopleura costata, est une Pholadidae, d'une taille maximale de 180 mm qui vit enfouie dans
le sable ou la vase de la zone intertidale aux fonds de 49 m.
Chez les Pinnidae, les quatre espèces: le jambonneau raide, Atrina rigida; le jambonneau demi-lisse,
A. seminuda; le jambonneau dents de scie, A. serrata, et le jambonneau ambre, Pinna carnea, présentent un
intérêt pour la pêche. Ce sont les espèces les plus grandes de ce groupe, leurs tailles maximales se situent entre
243 et 300 mm. Ces espèces se rencontrent de la côte aux fonds de 27 m, 256 m, 11 m et 51 m respectivement.
La sanguinolaire ridée, Asaphis deflorata, est une Psammobiidae qui se trouve dans les deux premiers mètres.
Elle se nourrit de plantes, de détritus et de plancton. Le faux haricot, Heterodonax bimaculatus, est rattaché à
la même famille, il vit sur le littoral à moins de 1 m de profondeur, sa taille maximale est de 16 mm.
L’huître perlière de l’Atlantique, Pinctada imbricata, de la famille des Pteriidae, présente un grand intérêt
commercial. Initialement exploitée pour alimenter l’industrie perlière, cette espèce est commercialisée à
présent pour la consommation humaine. Elle se rencontre dans la zone intertidale et de la côte jusqu’à 23 m de
profondeur, sa taille maximale est de 76 mm, fixée sur des roches ou d’autres substrats solides. Sa longévité a
été estimée à 8 années en Inde. De la même famille, l'huître perlière ailée, Pteria penguin, dont la zone de
�73
distribution principale se situe en Indopacifique et en mer Rouge, mais signalée en Haïti dans GBIF, a une
taille maximale de 300 mm et se rencontre de la côte aux fonds de 35 m; son niveau trophique est estimé à 2,0
et sa vulnérabilité a été évaluée à 20 pour cent.
L'huître plate, Isognomon alatus, une Isognomonidae de taille maximale de 72 mm, se rencontre dans les
marais à mangroves, elle est assimilée à une huître.
Le tagal corpulent, Tagelus plebeius, est un Solecurtidae d'une taille maximale de 119 mm et se rencontre sur
les fonds de moins de 24 m, il se nourrit de plantes et de détritus et filtre le plancton, son niveau trophique est
estimé à 2,0.
Le couteau antillais, Solena obliqua23, est un Solenidae d'une taille maximale de 96 mm, il vit dans la zone
intertidale et subtidale, enfoui dans le sable; il est consommé bouilli, grillé ou frit.
Le spondyle américain ou huître épineuse de l'Atlantique, Spondylus americanus, est un Spondylidae. D'une
taille maximale de 140 mm, il se rencontre jusqu'à 140 m de profondeur. Il est consommé cru.
Les Tellinidae sont représentées par 26 espèces dont quatre sont signalées d'intérêt pour la pêche: la telline
fauste, Arcopagia fausta, qui se rencontre de la côte jusqu'à 30 m, dont la taille maximale est de 98 mm; la
telline lisse; Tellina laevigata, qui se rencontre jusqu'à 15 m, dont la taille maximale est de 88 mm; la telline
coucher de soleil, Tellina radiata, qui se rencontre jusqu'aux fonds de 100 m, dont la taille maximale est de
105 mm et enfin la telline mouchetée, Tellinella listeri, d'une taille maximale de 90 mm qui se rencontre
jusqu'aux fonds de 100 m.
Les Veneridae regroupent 24 espèces dont sept d'intérêt commercial: la venus quadrillée, Chione cancellata,
qui se trouve à 2 m de profondeur, d'une taille maximale de 45 mm; la venus calicot, Macrocallista maculata,
qui se rencontre de la côte aux fonds de 10 m, de taille maximale de 80 mm; la venus princesse, Periglypta
listeri, d'une taille maximale de 100 mm qui se rencontre de la côte aux fonds de 84 m; la praire éclair, Pitar
fulminatus, qui se rencontre jusqu'aux fonds de 100 m, de taille maximale de 48 mm; la tivèle trigone, Tivela
mactroides, qui est sur les fonds de moins de 2 m, de taille maximale de 34 mm et deux autres espèces de la
même famille, Hysteroconcha dione, une espèce de 50 mm présente sur les fonds de moins de 8 m et Lirophora
paphia, de 35 mm qui se rencontre jusqu'à 101 m.
Figure 30. Cartographie sur l'ensemble de la zone d'étude des occurrences de 157 espèces de bivalves sur les 187
de la zone d'inventaire.
Bathymétrie: GEBCO; 22 444 occurrences: OBIS, GBIF du 20/06/2021.
23 Dans les documents de la FAO et Sealifebase Solen obliquus
�74
Les mollusques bivalves sont capturés à la main, en plongée ou à l'aide d'une pelle ou d'un râteau; certaines
espèces sont capturées au chalut de fond, à la drague ou à la seine de plage. Comme chez les crabes, les sources
d'information semblent largement sous-estimer le nombre d'espèces sinon commercialisables, du moins
fréquemment consommées.
Les occurrences enregistrées dans les bases OBIS et GBIF sont proches ou sur la ligne de côte. Dans leur
majorité elles se concentrent au nord, dans le sud de la Floride. En Haïti elles se répartissent entre la côte nord
et la partie sud du pays (figure 30).
3.2.5.3
Les gastéropodes
Les espèces de mollusques gastéropodes répertoriées dans la région appartiennent à 99 familles et sont au
nombre de 447 (tableau 18). Seules 43 sont signalées d'un intérêt commercial, soit une espèce sur 10, et le
lambi en est le produit phare. Elles ont leur importance dans la chaîne trophique étant des proies de crabes, de
langoustes, de pieuvres et de poulpes, de nombreuses espèces de poissons osseux (balistes, carangues, mérous,
gorettes, labres, vivaneaux, etc.), d’élasmobranches (requins, pastenagues, aigles de mer, etc.), de tortues
marines, de dauphins. Ces espèces se rencontrent de la côte jusqu’au-delà du talus sur des fonds de 4 791 m;
cependant les deux tiers de ces espèces ne dépassent pas les 100 m de profondeur et certaines sont très côtières,
confinées aux 10 premiers mètres voire sont amphibiotiques et sont présentes en eaux douces et saumâtres.
Les informations sur ces 447 espèces sont souvent fragmentaires notamment dans la base Sealifebase, ainsi le
régime est renseigné pour seulement 47 pour cent d'entre elles, il serait constitué en majorité de détritus, de
plantes, de zoobenthos, de bivalves (moules, huitres); de même le niveau trophique est estimé pour 24 d'entre
elles, soit 5 pour cent de l'ensemble, il se situerait entre 2,0 et 4,33; la vulnérabilité n'est renseignée que pour
11 d'entre elles, soit 2 pour cent de l'ensemble, et uniformément évaluée à 10 pour cent; le nom vernaculaire
est souvent absent; enfin dans de nombreux cas le nom scientifique n'est pas actualisé; la règle adoptée tout au
long de cette étude d'adopter le nom scientifique accepté dans la base taxonomique WoRMS a été appliquée.
Tableau 18. Principales familles de gastéropodes qui comptent 447 espèces dont 43 sont signalées comme
commerciales.
Nom français (FAO)
pied de pélican
crépidule plate
Casque
Cérithe
Triton
Mitrelle
Cône
Nom créole
Famille
(n esp comm/n esp)
Acteonidae (0/1)
Anabathridae (0/1)
Ancillariidae (0/1)
Aplustridae (0/1)
Aporrhaidae (0/1)
Architectonicidae (0/3)
Areneidae (0/3)
Assimineidae (0/1)
Batillariidae (0/1)
Bellolividae (0/1)
Borsoniidae (0/1)
Buccinidae (0/1)
Bullidae (0/2)
Bursidae (0/1)
Caecidae (0/5)
Calliostomatidae (0/2)
Calyptraeidae (0/1)
Cancellariidae (0/1)
Capulidae (0/1)
Cassidae (3/8)
Cavoliniidae (0/2)
Cerithiidae (1/9)
Cerithiopsidae (0/1)
Charoniidae (1/2)
Clionidae (0/1)
Cochliopidae (0/1)
Colubrariidae (0/1)
Columbellidae (0/16)
Conidae (2/24)
Costellariidae (0/7)
Profondeur
14-18
0-15
0-5
6-8
0-366
0-183
0-4
0-0
1-13
183-653
183-2 633
0-81
0-256
0-115
1-1 053
0-27
0-178
2-574
0-465
0-4 791
0-91
0-104
1-384
0-600
0-?
0-805
0-653
0-780
Côtier Plateau Talus
littoral
Abysses
Domaine Domaine
néritique océanique
�75
Nom français (FAO)
Nom créole
Cylichna
Triton
Fasciolaire
Fissurelle
Mélongène
Rocher, murex
Natice de Turton
Nérite
Olive
Patelle
Strombe
Tonne
Chancre, turbinelle
Turban
lambi
Famille
(n esp comm/n esp)
Profondeur
Cylichnidae (0/5)
Cymatiidae (4/12)
Cypraeidae (0/6)
Cystiscidae (0/4)
Drilliidae (0/2)
Ellobiidae (0/9)
Eoacmaeidae (0/1)
Epitoniidae (0/16)
Eratoidae (0/1)
Eulimidae (0/6)
Fasciolariidae (4/10)
Fissurellidae (3/21)
Haminoeidae (0/2)
Harpidae (1/3)
Hipponicidae (0/2)
Hydrobiidae (0/1)
Laubierinidae (0/1)
Litiopidae (0/3)
Littorinidae (1/15)
Lottiidae (0/2)
Mangeliidae (0/9)
Marginellidae (0/16)
Melongenidae (1/1)
Mitridae (0/2)
Modulidae (0/2)
Muricidae (5/29)
Nassariidae (0/9)
Naticidae (0/9)
Neritidae (1/10)
Neritiliidae (0/1)
Olividae (1/16)
Ovulidae (0/4)
Patellidae (0/2)
Pectinodontidae (0/1)
Personidae (0/1)
Phasianellidae (0/6)
Phenacolepadidae (0/3)
Pisaniidae (0/6)
Plakobranchidae (0/1)
Planaxidae (0/4)
Pleurobranchidae (0/1)
Pleurotomariidae (0/4)
Potamididae (0/2)
Pseudomelatomidae (0/6)
Pyramidellidae (0/11)
Raphitomidae (0/1)
Rhizoridae (0/1)
Rissoidae (0/3)
Rissoinidae (0/2)
Skeneidae (0/1)
Strombidae (6/6)
Tegulidae (1/5)
Terebridae (0/2)
Tonnidae (1/3)
Tornatinidae (0/3)
Tornidae (0/1)
Triphoridae (0/2)
Triviidae (0/4)
Trochidae (0/1)
Truncatellidae (0/2)
Turbinellidae (2/2)
Turbinidae (4/10)
Turridae (0/2)
Turritellidae (0/4)
Vermetidae (0/2)
Vitrinellidae (0/3)
Volutidae (1/3)
Xenophoridae (0/2)
Zebinidae (0/3)
0-3 012
0-150
0-1 472
0-168
0-128
0-2
0-60
0-805
2-120
0-260
0-200
0-796
0-34
0-370
0-780
0-2
0-805
0-9
0-3
0-465
0-154
0-44
0-82
0-105
0-538
0-110
0-175
0-200
0-0
0-300
0-128
413-1 066
0-300
0-214
0-55
0-91
0-15
0-48
0-50
0-853
0-2
0-42
5-718
0-46
33-713
0-101
0-106
45-805
0-183
0-90
0-75
0-2 359
0-128
0-23
0-101
0-525
0-24
0-0
0-81
0-300
15-274
0-200
0-5
0-137
0-380
0-823
0-51
Côtier Plateau Talus
littoral
Abysses
Domaine Domaine
néritique océanique
�76
Le strombe rosé ou lambi, Aliger gigas24, famille des Strombidae, est une espèce de très haute valeur
commerciale. Il se rencontre sur des fonds à algues, de coraux, de sable et coraux ou des herbiers, entre 2 et
73 m de profondeur, généralement à moins de 30 m, sa taille maximale est de 300 mm. Son régime est constitué
de plantes et de détritus. Son niveau trophique est estimé entre 2,0 et 2,19. Lors de la ponte les œufs sont
déposés sur des sables calcaires issus de la dégradation de coraux; la ponte a lieu de juillet à novembre au
Venezuela. L’exploitation de cette espèce s’est développée dans les années 70 et très rapidement a augmenté
de façon exponentielle. Sa situation face aux risques d’extinction n’a pas été évaluée par l’IUCN mais cette
espèce est inscrite dans l’annexe II de la CITES et à ce titre son commerce international n’est autorisé qu’à
partir des pays où sa population n’est pas menacée25. C'est une des rares espèces donnant lieu à des déclarations
de captures auprès de la FAO par Haïti. Cinq autres Strombidae sont exploités: le strombe laiteux,
Macrostrombus costatus26, d'une taille maximale de 321 mm, se rencontre sur les fonds de 2 à 55 m; le strombe
queue-de-coq, Aliger gallus27, d'une taille maximale de 195 mm, se rencontre de la côte au fonds de 82 m; le
strombe aile-de-faucon ou strombe grenouille, Lobatus raninus, plus petit, jusqu'à 121 mm, se rencontre sur
les fonds de moins de 55 m; la conque batailleuse, Strombus alatus, la plus petite, au maximum de 112 mm,
et la plus profonde, jusqu'aux fonds de 183 m; le strombe combattant, S. pugilis, d'une taille maximale de
130 mm, se rencontre sur les fonds de moins de 55 m.
Chez les Cassidae, trois espèces d'intérêt commercial sont signalées: le casque flamme, Cassis flammea, d'une
taille maximale de 154 mm est sur les fonds de 1 à 12 m; le casque royal, C. tuberosa, d'une taille maximale
de 301 mm, est sur les fonds de moins de 27 m et le casque impérial, C. madagascariensis, d'une taille
maximale de 350 mm, est sur des fonds de 3 à 183 m. Leurs niveaux trophiques sont de 3,0 à 3,07.
Sur les neuf espèces de Cerithiidae, seul le cérithe fascié, Rhinoclavis fasciata, est signalé comme d'intérêt
commercial. C'est une espèce commune de la région Indopacifique, d'aspect fusiforme, sa hauteur maximale
est de 95 mm. Il se rencontre sur les fonds de moins de 18 m.
Le Triton de l'Atlantique, Charonia variegata, appartient à la famille des Charoniidae, il atteint la taille de
374 mm. Il vit sur les fonds de 1 à 384 m.
Le cône royal, Conus regius, et le cône souris, Conus mus, sont les seules des 25 espèces de la famille des
Conidae de la zone à être signalées d'intérêt commercial. Leurs tailles maximales sont respectivement de 75 et
44 mm. Le cône royal se rencontre de la côte jusqu'aux fonds de 95 m enfoui dans le sable, sous des rochers
ou sous des coraux, le cône souris, jusqu'aux fonds de 18 m, sur des roches ou des coraux.
Les Cymatiidae comptent 12 espèces dans la zone, dont quatre sont signalées d'intérêt commercial: le triton
anguleux, Cymatium femorale, d'une taille maximale de 212 mm, sur les fonds de 1 à 150 m; le triton aquatile,
Monoplex aquatilis, d'une taille maximale de 120 mm, sur les fonds de moins de 60 m; le triton de Naples ou
triton velu, M. parthenopeus, d'une taille maximale de 180 mm, sur les fonds de moins de 75 m; le triton poilu,
M. pilearis, d'une taille maximale de 140 mm, sur les fonds de moins de 50 m.
Sur les 10 espèces de la famille des Fasciolariidae, quatre sont signalées d'intérêt commercial: la Fasciolaire
tulipe, Fasciolaria tulipa, d'une taille maximale de 250 mm, son régime alimentaire est varié, son niveau
trophique est estimé supérieur à 2,8; le fuseau marron, Leucozonia nassa, de taille maximale de 68 mm, est
sur les fonds de moins de 70 m; le fuseau zébré, Polygona infundibulum, de taille maximale de 80 mm, est sur
les fonds de 2 à 55 m; le pleuroploque géant ou conque de cheval, Triplofusus giganteus, de taille maximale
de 609 mm, se rencontre de la côte aux fonds de 200 m.
Chez les 21 espèces de Fissurellidae, trois espèces sont signalées d'intérêt commercial: les fissurelles de Lister,
Diodora listeri; de Barbade, Fissurella barbadensis, et rayonnante, F. nimbosa. Elles ont la forme de chapeau
chinois. La première se rencontre de la côte aux fonds de 500 m, les deux autres dans les huit premiers mètres.
Leurs tailles maximales respectives sont de 45, 41 et 50 mm, leur régime est constitué de plantes et de détritus
et leur niveau trophique est estimé entre 2,0 et 2,19.
24 Anciennement Lobatus gigas. La taxonomie a été révisée le 01/04/2020.
25 L'évaluation du stock de strombes haïtien revêt donc un caractère prioritaire.
26 Anciennement Lobatus costatus. La taxonomie a été révisée le 01/04/2020.
27 Anciennement Lobatus gallus. La taxonomie a été révisée le 01/04/2020.
�77
La harpe majeure, Harpa major, appartient à la famille des Harpidae dont trois espèces sont présentes dans la
zone, sa taille maximale est de 100 mm, elle vit sur des fonds sableux, à faibles profondeurs, jusqu'à 64 m de
profondeur, à proximité des coraux. Sa vulnérabilité est faible, de 10 pour cent.
La littorine couronnée, Tectarius coronatus, est la seule des 15 espèces de la famille des Littorinidae présentes
dans la zone à être signalée d'intérêt commercial, parfois consommée, sa coquille est vendue comme objet
décoratif. Sa taille maximale est de 40 mm. Elle vit dans des eaux peu profondes sur le littoral, parfois audessus du niveau le plus élevé de la haute mer, sa vulnérabilité est faible, de 10 pour cent.
Parmi les 29 espèces de Muricidae, cinq d'entre elles présentent un intérêt commercial: le rocher antillais,
Chicoreus brevifrons; le pourpre d'Atlantique, Nucella lapillus; le rocher pomme, Phyllonotus pomum; le
pourpre haemastoma, Stramonita haemastoma et le murex à bec courbé, Vokesimurex recurvirostris. Ces
espèces se rencontrent respectivement de la côte aux fonds de 83, 40, 200, 538 et 140 m. Leur niveau trophique
est estimé être supérieur à 2,8.
Les autres espèces signalées d'intérêt commercial sont la mélongène des Caraïbes, Melongena melongena, une
Melongenidae; la nérite dent saignant, Nerita peloronta, une Neritidae; l'olive réticulée, Americoliva
reticularis, une Olividae; la tonne cannelée, Tonna galea, une Tonnidae; le troque des Antilles, Cittarium pica,
un Tegulidae; le chanque antillais, Turbinella angulata, et la turbinelle des Caraïbes, Vasum muricatum, des
Turbinellidae; les turbans incisé, Lithopoma caelatum, imbriqué, Lithopoma tectum, canaliculé, Turbo
canaliculatus, et marron, T. castanea, des Turbinidae; la volute musique, Voluta musica, une Volutidae.
Les occurrences enregistrées dans OBIS et GBIF dans les ZEE d'Haïti, de la République dominicaine, de Cuba,
de la Jamaïque et des Îles Caïmanes montrent des concentrations collées à la ligne de côte (figure 31).
Figure 31. Cartographie sur l'ensemble de la zone d'étude des occurrences de 352 espèces de gastéropodes sur les
447 de la zone d'inventaire.
Bathymétrie: GEBCO; 38 714 occurrences28: OBIS, GBIF du 23/06/2021.
28 Les points des occurrences géo référencées les plus intérieurs dans les terres (espèces amphibiotiques et/ou ubiquistes, points géo
référencés approximatifs géo localisés au barycentre du pays, de la province ou du département) ont été masqués.
�78
3.2.6
Les échinodermes
Le phylum des échinodermes sera abordé dans cet inventaire au travers des oursins, classe des Echinoidea, et
des concombres de mer, classe des Holothuroidea qui aura bénéficié des apports de deux études (HerreraMoreno et Betancourt-Fernández, 2004; Alvarado, 2011) (tableau 19). Les étoiles de mer, les crinoïdes et les
ophiures ne seront pas abordées ici (Cf annexe IV). Les oursins et les holothuries qui appartiennent au même
embranchement des échinodermes diffèrent morphologiquement; les premiers, globalement circulaires sont
organisés selon une symétrie radiale tandis que les seconds de forme allongée, sont organisés selon une
symétrie axiale; ils diffèrent également par leurs usages, les oursins, consommés le plus souvent crus, occupent
un marché local ou national; les concombres de mer sont destinés à l'exportation, en priorité vers l'Asie,
occupant un marché de niche. Ces deux groupes (classes) seront présentés séparément.
Tableau 19. Principales familles d'échinodermes, oursins et holothuries, qui comptent 38 espèces dont huit sont
signalées d'intérêt commercial.
Nom français (FAO)
Nom créole
Famille
(n esp comm/n esp)
Profondeur Côtier Plateau Talus Abysses Domaine Domaine
littoral
néritique océanique
Aspidodiadematidae
(0/1)
Brissidae (0/3)
Cidaridae (0/1)
Clypeasteridae (0/3)
Diadematoidae (0/1)
Echinometridae (0/2)
Echinoneidae (0/1)
Echinothuriidae (0/1)
Mellitidae (0/1)
Phormosomatidae (0/1)
Pourtalesiidae (0/1)
Saleniidae (0/2)
Toxopneustidae (1/4)
720-3 000
Holothuriidae (6/9)
Molpadiidae (0/1)
Phyllophoridae (0/2)
Psychropotidae (0/1)
Stichopodidae (1/2)
Synaptidae (0/1)
0-73
90-720
0-9
215-4 700
0-65
0-24
Oursins
Oursin-diadème
Oursin perforant vert
Oursin
Oursin galette
Oursin blanc
Holothuries (ou bèches ou concombres de
mer)
Holothurie, bêche
Holothurie
3.2.6.1
0-641
0-50
0-805
0-400
0-45
0-570
0-60
250-3 000
0-777
Les oursins
Les oursins répertoriés dans la zone comptent 13 familles et 22 espèces dont une seule espèce est signalée
comme d'intérêt commercial. L'inventaire ne s'est pas restreint à la seule espèce commerciale, les oursins
constituant les proies de nombreuses espèces de la faune marine. Ces espèces se rencontrent du littoral au bas
du talus continental, sur des fonds sableux, des récifs coralliens ou des fonds rocheux. Les distributions
bathymétriques des espèces Salenocidaris varispina, de la famille des Saleniidae et Plesiodiadema antillarum,
de la famille Aspidodiadematidae, s'étendent jusqu'aux fonds de 3 000 m, dès 250 m chez la première, dès
750 m chez la seconde. Celle de Lytechinus euerces, de la famille Toxopneustidae, s'étend des fonds de 55 m
jusqu'aux fonds de 777 m. Les autres espèces se rencontrent dès le littoral. Les distributions bathymétriques
des espèces de la famille des Brissidae, les oursins de sable gris, Brissus unicolor, de sable rouge, Meoma
ventricosa, et l'espèce Brissopsis atlantica, s'étendent jusqu'à la limite du plateau continental ou au-delà,
respectivement jusqu'à 240, 200 et 641 m. L'aire de distribution du petit oursin (Little egg urchin (En)),
Echinoneus cyclostomus, un Echinoneidae, s'étend de la côte jusqu'aux fonds de 570 m; celle de l’oursindiadème, Diadema antillarum, un Diadematoidae, s'étend jusqu’aux fonds de 400 m; celle du Dollar des sables
à rosace, Clypeaster rosaceus, Clypeasteridae, s'étend jusqu'aux fonds de 285 m alors que celle de Clypeaster
luetkeni, de la même famille s'étend jusqu'à 805 m. Les autres espèces, avec une réserve sur trois espèces29,
sont sur les fonds côtiers (entre le littoral et les fonds de 60 m).
29 Chez trois espèces, aucune information sur la distribution bathymétrique n'était disponible: Hygrosoma petersii, un Echinothuriidae;
l'oursin galette, Phormosoma placenta, un Phormosomatidae; Salenocidaris profundi, un Saleniidae.
�79
L’oursin blanc, Tripneustes ventricosus, de la famille des Toxopneustidae, est comestible et apprécié, c'est la
seule espèce qui représente un réel intérêt commercial; il se rencontre dans des herbiers, de la zone intertidale
aux fonds de 55 m.
Les oursins sont herbivores, et jouent un rôle sur le bon état des coraux. Leur niveau trophique est de 2,0. Les
pontes sont fréquentes. Les œufs sont conservés au niveau du péristome ou du périprocte selon les espèces.
Les larves pluteus sont planctoniques et dérivent pendant plusieurs semaines, voire plusieurs mois avant de
couler et d’adhérer au substrat et de se métamorphoser en petits oursins.
La distribution spatiale des occurrences des espèces d'oursins rend compte de la partition entre espèces côtières
et espèces profondes (figure 32).
3.2.6.2
Les holothuries
L’inventaire des holothuries présentes dans la ZEE d’Haïti ne s’est pas fait sans difficultés en raison de sa
taxonomie en évolution; ainsi les noms des espèces rencontrées diffèrent entre la base Sealifebase et la base
WoRMS. La synthèse réalisée pour la FAO (Purcell, Samyn et Conand, 2012) ainsi que les inventaires sur l'île
d'Hispaniola (Herrera-Moreno et Betancourt-Fernández, 2004; Alvarado, 2011) ont permis de compléter les
informations des deux sources précédentes. Au total 16 espèces de concombres de mer ont été identifiées sur
la zone d'inventaire.
Les noms vernaculaires en français sont parfois absents des bases de données, ici on adoptera la traduction de
leurs noms vernaculaires en langue anglaise quand ils sont renseignés, sinon le nom scientifique seul. La
famille des Holothuriidae compte neuf espèces dans la zone d'étude dont six signalées d'intérêt commercial:
•
La bêche de mer, Actinopyga agassizii, se rencontre de la côte aux fonds de 54 m. Elle mesure jusqu'à
35 cm.
•
L’holothurie bouse d’âne, Holothuria (Halodeima) mexicana, vit sur la zone subtidale et jusqu’à 20 m
de profondeur à proximité des mangroves ou sur des fonds de sables vaseux ou de sable et d'herbiers.
Sa longueur maximale est de 50 cm.
•
Le concombre de mer de sable (Sand sea-cucumber), Holothuria (Thymiosycia) arenicola, se trouve
de la côte aux fonds de 30 m et mesure jusqu'à 30 cm.
•
L’holothurie queue de tigre, Holothuria (Thymiosycia) thomasi, est la plus grande des trois espèces,
sa longueur pouvant atteindre 2,0 m (Pawson et Caycedo, 1980). Elle vit sur des récifs coralliens entre
3 et 30 m de profondeur.
Figure 32. Cartographie sur l'ensemble de la zone d'étude des occurrences des 22 espèces d'oursins de la zone
d'inventaire.
Bathymétrie: GEBCO; 5 300 occurrences: OBIS, GBIF du 23/06/2021
�80
•
L'holothurie de Floride, Holothuria (Halodeima) floridana, se rencontre dans les marais à mangroves
et sur le bord des plages jusqu'à 2 m de profondeur. Elle peut atteindre 51 cm de long.
•
La bêche de mer japonaise, Apostichopus japonicus, originaire d'Asie (Chine, Japon), peut se
rencontrer jusqu'à 200 m de profondeur mais le plus souvent entre 20 et 30 m. L'espèce atteint 30 cm
de longueur et est exploitée en aquaculture. L'espèce a été signalée une fois en Haïti (Wilner, 2004);
sa présence si elle est confirmée, pourrait provenir d'essais d'aquaculture.
Les trois autres Holothuriidae sont:
•
L’holothurie roche brune, Holothuria (Selenkothuria) glaberrima, qui se rencontre des plages aux
fonds de 42 m. Les tailles observées en Colombie sont comprises entre 5,7 et 24,2 cm (Ortiz Gomez,
2011).
•
Holothuria (Halodeima) grisea, se rencontre sur les fonds de moins de 5 m.
•
Holothuria (Theelothuria) princeps, est signalée de la côte aux fonds de 73 m.
Dans la famille des Stichopodidae:
•
•
Le concombre pépites de chocolat (Chocolate chip-cucumber, en Colombie), Isostichopus badionotus,
est signalé comme d'intérêt commercial; il se rencontre entre 0,5 et 19 m de profondeur; sa longueur
maximale est de 45 cm.
Le concombre de mer à poil (Furry sea-cucumber), Astichopus multifidus, se rencontre entre 1 et 37 m.
Il mesure jusqu'à 50 cm.
Le concombre de mer perlé, Euapta lappa, de la famille des Synaptidae, est une espèce côtière d'une taille
maximale de 1,0 m qui se rencontre du littoral aux fonds de 24 m. Il n'est pas signalé comme d'intérêt
commercial.
Deux espèces de la famille des Phyllophoridae, Stolus cognatus et Thyone comata ont été signalées dans la
zone d'inventaire. Ce sont des espèces côtières de petites tailles, respectivement de 10 et 2,2 cm maximum. La
première est bien connue à Cuba et se rencontre de la côte jusqu'à 38 m de profondeur. La seconde, mise en
évidence à Madagascar se rencontre entre 8 et 32 m (Cherbonnier, 1988).
Les deux dernières espèces signalées dans la zone sont plus profondes: Molpadia oolitica, de la famille des
Molpadiidae, se rencontre sur les fonds de 90 à 720 m; Benthodytes typica, de la famille des Psychropotidae,
est une espèce bathyale- abyssale qui est localisée sur les fonds de 215 à 4 700 m.
Figure 33. Cartographie sur l'ensemble de la zone d'étude des occurrences de 15 des 16 espèces d'holothuries de
la zone d'inventaire.
Bathymétrie: GEBCO; 1 773 occurrences: OBIS, GBIF du 23/06/2021.
�81
Bien que les espèces figurent sur la liste de l’IUCN comme de préoccupations mineures ou non-évaluées, ces
ressources apparaissent comme fragiles. Leurs populations sont vulnérables, c’est pourquoi la capture de toutes
les espèces d’holothurie est interdite en Colombie et au Panama et leur pêche est très encadrée à Ste-Lucie où
une période de pêche de l’ordre d’un mois a été instituée.
Les occurrences enregistrées sur les bases OBIS et GBIF sont rares (1 773 dans toute la zone) en particulier
celles dans la ZEE Haïtienne où on en compte cinq (figure 33).
3.2.7
Les spongiaires – les éponges
Les porifères sont des organismes métazoaires d’organisation simple, des colonies de cellules, sans formation
tissulaire; les spongiaires ou éponges en constituent l’essentiel. Les éponges sont présentes en eaux douces,
saumâtres et marines jusqu’à des profondeurs d’au moins 5 000 m. Les porifères sont divisés en quatre classes :
les Calcarea, constituées de spicules calcaires ; les Demospongiae, constituées de spicules de silice et de fibres
de protéine spongieuse, la classe englobe 90 pour cent des espèces d’éponges ; les Hexactinellida sont des
éponges siliceuses, sans formations protéiniques spongieuses, elles participent à la construction des récifs; les
Homoscleromorpha sont proches des Demospongiae, elles rassemblent peu d’espèces, certaines calcaires
d’autres siliceuses.
Les 137 espèces de porifères réparties en 41 familles qui ont été intégrées à cet inventaire font partie de la
classe des Demospongiae, à l’exception de trois espèces de la famille des Plakinidae qui font partie de la classe
des Homoscleromorpha et de deux espèces d’éponges calcaires appartenant à la famille des Leucettidae ; ce
sont de vraies éponges (tableau 20).
Tableau 20. Principales familles de porifères Demospongiae, Calcarea et Homoscleromorpha (éponges) qui
comptent 131 espèces et cinq genres dans la zone.
Nom français (FAO)
Nom créole
Famille
(n esp comm/n esp)
Profondeur
Agelasidae (0/10)
Ancorinidae (0/3)
Aplysinidae (0/10)
Axinellidae (0/2)
Biemnidae (0/3)
Callyspongiidae (0/8)
Chalinidae (0/5)
Chondrillidae (0/2)
Chondrosiidae (0/2)
Chondropsidae (0/1)
Clionaidae (0/8)
Crambeidae (0/1)
Desmacididae (0/1)
Dictyodendrillidae (0/1)
Dictyonellidae (0/2)
Dysideidae (0/4)
Geodiidae (0/4)
Halichondriidae (0/1)
Halisarcidae (0/1)
Heteroxyidae (0/2)
Hymedesmiidae (0/1)
Iotrochotidae (0/2)
Irciniidae (0/3)
Microcionidae (0/7)
Mycalidae (0/3)
Niphatidae (0/6)
Petrosiidae (0/8)
Phloeodictyidae (0/2)
Placospongiidae (0/1)
Raspailiidae (0/2)
Scopalinidae (0/3)
Spirastrellidae (0/3)
Spongiidae (0/6)
Suberitidae (0/3)
Tedaniidae (0/2)
Tethyidae (0/1)
Tetillidae (0/3)
Theneidae (0/1)
Thorectidae (0/4)
2-100
0-100
0-60
0-35
1-67
2-70
1-23
1-20
2-76
Leucettidae (0/2)
1-220
Plakinidae ((0/3)
9-11
Demospongiae
Éponge-calice
Éponge pas-touche
Éponge-cerveau rouge
Dictyonelle
Éponge de Neptune
Éponge-balle noire
Éponge-vase rose
Baril de rhum
Éponge à volcan brune
Éponge de Zea
Éponge encroutante
Éponge de velours
Éponge-balle orange
Calcarea
Éponge calcaire
Homoscleromorpha
1-70
2-58
0-75
2-20
1-17
0-90
2-15
18-83
1-36
0-91
1-100
0-35
2-61
0-100
0-100
2-25
2-30
0-15
0-73
1-70
0-37
1-20
0-100
?-1 795
3-20
Côtier
littoral
Plateau
Talus
Abysses
Domaine
néritique
Domaine
océanique
�82
Ces espèces présentent un intérêt pour la pêche, la mariculture et l’écosystème : elles ont été utilisées par
l’homme depuis des siècles pour leurs propriétés absorbantes (hygiène, etc.) mais elles présentent un intérêt
pour des applications industrielles (par exemple, utilisation de la spongine) et comme espèces de laboratoire
pour l’étude de processus de régénération cellulaire (processus qui permet également de les cultiver) et autres
processus fondamentaux dans la recherche médicale et pharmaceutique mais elles participent également à
l’équilibre des écosystèmes coralliens notamment comme organismes filtreurs, elles contribuent à
l’amélioration de la qualité des eaux, elles constituent également des habitats pour de nombreuses espèces de
poissons et d’invertébrés des récifs, les éponges tubulaires en sont un bon exemple et plusieurs espèces
d’éponges entretiennent des relations commensales avec des poissons, des crustacés ou d’autres organismes
marins. L’inventaire a été établi à partir de Sealifebase, d’OBIS et GBIF ; aucun des trois documents de la
FAO ne les prennent en compte (Cervigón et al., 1993 ; FAO, 1978, 2002a, 2002b, 2002c). Les informations
sont peu fournies, en particulier celles sur l’intérêt commercial de ces organismes sont absentes. L’étude a
bénéficié de l’apport d’un inventaire détaillé réalisé en 2015 sur le Parc des trois Baies (Kramer et al., 2016).
Ces espèces vivent en eaux peu profondes, toutes à des profondeurs de moins de 100 m à l’exception de Thenea
fenestrata, de la famille des Theneidae, qui se rencontre jusqu’à une profondeur de 1 795 m, probablement
beaucoup plus30. Les trois quarts des espèces inventoriées vivent sur des fonds de moins de 50 m.
Leur régime est constitué de plantes ou d’algues, de détritus et de plancton. Leur niveau trophique se situe
entre 2,0 et 2,19.
Quelques exemple des relations de symbiose ou de commensalisme peuvent être extraits des espèces
répertoriées, illustrant le rôle que jouent les éponges dans l’écosystème des récifs coralliens : Aiolochroia
crassa, une Aplysinidae, vit en association avec des langoustines ; Amphimedon compressa et Niphates
digitalis ; deux Niphatidae, vivent en commensalisme avec des amphipodes ; Neopetrosia subtriangularis, une
Petrosiidae, est commensale avec des crevettes Alpheidae ; Callyspongia (Cladochalina) vaginalis, une
Callyspongiidae, et Niphates digitalis, une Niphatidae, vivent en symbiose avec l’éponge grise (présente à
Porto Rico et en Jamaïque, mais non signalée en Haïti) ; Cinachyrella kuekenthali, une Tetillidae, vit en
symbiose avec une algue.
Les occurrences géo référencées signalées dans les bases OBIS et GBIF sont éparses, collées à la côte ou sur
le plateau, elles sont pratiquement absentes de la ZEE d’Haïti (figure 34).
Figure 34. Cartographie sur l’ensemble de la zone d’étude des occurrences de 125 des 137 espèces et genres
d’éponges de la zone d’inventaire.
Bathymétrie : GEBCO ; 34 851 occurrences : OBIS, GBIF du 24/06/2021.
30 Les collections du National Museum of Natural History de Washington (Simthsonian Institution) fait état d'un spécimen collecté en
mars 1891 à 2 418 m de profondeur et d'un autre collecté en octobre 1969 à 2 736 m de profondeur.
�83
3.3
Les espèces végétales – les algues
Les algues marines sont largement utilisées à travers le monde. Dès le IVème siècle elles sont utilisées dans
l'alimentation au Japon, un peu plus tard en Chine puis dans une large partie de l'Asie et bien plus tard, au XXe
siècle dans le reste du monde (McHugh, 2003). De nouvelles applications ont été développées pour leurs
propriétés non seulement dans l'industrie alimentaire mais dans d'autres secteurs (cosmétologique,
pharmaceutique, etc.). La demande mondiale a explosé et la culture de l'algue s'est alors développée: la
production de l'aquaculture des plantes aquatiques, constituée très majoritairement par les algues est passée de
13,5 M t en1995 à un peu plus de 30 M t en 2016 (FAO, 2018).
Cet inventaire ne pouvait donc pas faire abstraction des ressources en algues. Comme dans le cas de la faune
marine, l'inventaire sera restreint aux macro-algues; les micro-algues bien que leurs productions et leurs
applications se développent rapidement, ne seront pas abordées dans ce paragraphe (Cf annexe IV).
Les algues d'intérêt commercial se composent de trois groupes correspondant aux Phylums qui diffèrent par
leurs pigmentations: les algues vertes, Chlorophyta; les algues rouges, Rhodophyta; les algues brunes,
Ochrophyta. D'un point de vue taxonomique, les algues vertes et les algues rouges sont rattachées au règne
Plantae, tandis que les algues brunes sont rattachées au règne Chromista. L'inventaire a été dressé en s'appuyant
sur l'un des trois ouvrages de la FAO (Cervigón et al., 1993) mais les informations y sont parcellaires (absence
de nom vernaculaire, absence de distribution bathymétrique, etc.), Sealifebase aux informations lacunaires et
les bases OBIS et GBIF avec leurs occurrences signalées et factuelles; la taxonomie s'est appuyée sur la base
WoRMS, référence internationale, et sur la base mondiale «AlgaeBase», actualisée par des taxonomistes
fréquemment (Guiry et Guiry, 2019)31.
3.3.1
Les algues vertes
Bon nombre de ces algues présentent un intérêt commercial alimentaire (ou vivrier); certaines de ces espèces
présentent également un intérêt commercial pour leurs produits transformés à usage industriel.
Au total, 82 espèces ont été signalées dans la zone d'inventaire, dont seulement huit signalées comme espèces
d'intérêt commercial (tableau 21). Toutes ces espèces sont benthiques sessiles et côtières, elles occupent pour
un bon tiers les fonds de moins de 20 m, un autre tiers les fonds de 0 à 50 m et pour le dernier tiers des fonds
de 0 à 110 m32.
Tableau 21. Principales familles d'algues vertes (Chlorophytes) qui comptent 82 espèces dans la zone.
Nom français (FAO)
Nom créole
Famille
(n esp comm/n esp)
Anadyomenaceae (0/4)
Boodleaceae (0/1)
Bryopsidaceae (0/2)
Caulerpaceae (4/10)
Cladophoraceae (0/19)
Codiaceae (0/4)
Dasycladaceae (0/4)
Dichotomosiphonaceae (0/3)
Halimedaceae (0/8)
Polyphysaceae (0/1)
Siphonocladaceae (0/4)
Udoteaceae (0/9)
Ulvaceae (4/7)
Ulvellaceae (0/2)
Valoniaceae (0/4)
Profondeur Côtier Plateau Talus Abysses Domaine Domaine
littoral
néritique océanique
0-90
0-10
0-1
0-110
0-50
0-54
0-30
0-106
0-3
0-45
0-46
0-108
0-108
31 https://www.algaebase.org
32 Les données disponibles sur les distributions bathymétriques des espèces ne concernent que 35 d'entre elles sur un total de 69.
�84
Le cas d'associations interspécifiques chez ces algues est fréquent: Anadyomene stellata, une
Anadyomenaceae, se développe en association avec la mangrove Rhizophora mangle, et Ulva flexuosa, une
Ulvaceae, en association plus étroite, comme épiphyte de cette même mangrove; Caulerpa mexicana, une
Caulerpaceae, en association avec C. racemosa, une espèce de la même famille; Chaetomorpha aerea, une
Cladophoraceae, en association avec des sargasses; Ulva lactuca, une Ulvaceae, est une épiphyte d'autres
algues dont les sargasses.
Chez les Caulerpaceae, plusieurs espèces sont connues pour, en plus de leur usage alimentaire, avoir des
propriétés antifongiques et pour abaisser la pression artérielle: Caulerpa chemnitzia; Caulerpa cupressoides;
Caulerpa racemosa, également source de caulerpine, substance anesthésique et de caulerpicine aux effets
toxiques; Caulerpa sertularioides, également source de sitostérol, de caulerpine et de caulerpicine et d'acide
palmitique. Halimeda opuntia, une Halimedaceae, jusqu'alors peu utilisée alors qu'elle est source de
régulateurs de croissance: auxine, gibbérelline et cytokinine, et qu'elle présente des propriétés antibactériennes
et antifongiques. Chez les Ulvaceae, Ulva clathrata est utilisée pour la consommation humaine, en médecine
pour ses propriétés antibactériennes et car elle contient des vitamines A et B1; les laitues de mer Ulva flexuosa,
Ulva lactuca, Ulva fenestrata, sont riche en vitamines E, A et B1; toutes ces algues sont utilisées en
alimentation humaine et animale et éventuellement en engrais. Ulva prolifera, est une Ulvaceae au
développement rapide; elle a été à l'origine en 2008 dans la région de Qingdao (Chine), d'un des plus grands
blooms jamais observés qui s'étendait sur 600 km².
Les distributions spatiales des occurrences géo référencées signalées dans les bases OBIS et GBIF sont en
Haïti et dans toute la zone d'étude accolées aux lignes de côte (figure 35).
Figure 35. Cartographie sur l'ensemble de la zone d'étude des occurrences de 67 des 82 espèces d'algues vertes
(Chlorophytes) de la zone d'inventaire.
Bathymétrie: GEBCO; 8 722 occurrences: OBIS, GBIF du 19/06/2021.
�85
3.3.2
Les algues rouges
Les algues rouges avec 129 espèces sont le groupe le plus important, il rassemble également le plus d'espèces
d'intérêt commercial, au nombre de 19 (tableau 22).
Ces espèces sont toutes benthiques et sessiles, elles sont généralement peu profondes, au maximum jusqu'à
82 m, en moyenne jusqu'à 24 m. La plupart sont des épiphytes, se fixant sur des racines de palétuvier comme
Caloglossa leprieurii, une Delesseriaceae, sur les Avicenia; sur d'autres algues comme Melobesia
membranacea, une Hapalidiaceae, sur des algues vertes ou Jania rubens, une Corallinaceae, sur des algues
brunes. Certaines espèces se développeront dans des zones abritées et calmes comme Bostrychia moritziana,
une Rhodomelaceae, ou au contraire dans des eaux agitées, battues par des vagues fortes, comme Gelidium
serrulatum, une Gelidiaceae.
Leur premier usage est alimentaire, mais elles présentent un intérêt industriel pour l'extraction de deux
hydrocolloïdes: l'agar et le carraghénane. Le premier est un gélifiant qui est utilisé dans la fabrication de
milieux de culture en microbiologie et également dans l'industrie alimentaire comme additif, le E 406, le
second est un épaississant, le E 407 des additifs alimentaires.
Certaines espèces présentent des propriétés médicinales ou pharmaceutiques. Hypnea musciformis, une
Cystocloniaceae, est utilisée comme relaxant musculaire et comme agglutine sanguine; Amphiroa fragilissima,
une Lithophyllaceae, est utilisée en médecine traditionnelle; Digenea simplex, une Rhodomelaceae, est utilisée
comme vermifuge contre l'ascaris ou le tænia et également comme laxatif.
Tableau 22. Principales familles d'algues rouges (Rhodophytes) qui comptent 129 espèces dans la zone
d'inventaire.
Nom français (FAO)
Nom créole
Famille
(n esp comm/n esp)
Ahnfeltiaceae (0/1)
Callithamniaceae (0/1)
Ceramiaceae (1/9)
Champiaceae (0/2)
Corallinaceae (0/8)
Cystocloniaceae (1/4)
Dasyaceae (0/3)
Delesseriaceae (0/3)
Galaxauraceae (0/5)
Gelidiaceae (1/2)
Gelidiellaceae (1/1)
Gigartinaceae (1/2)
Gracilariaceae (4/18)
Halymeniaceae (1/6)
Hapalidiaceae (0/1)
Hydrolithaceae (0/2)
Liagoraceae (0/4)
Lithophyllaceae (0/7)
Lomentariaceae (0/1)
Mastoporaceae (0/1)
Mesophyllaceae (0/1)
Peyssonneliaceae (0/2)
Phyllophoraceae (1/1)
Pterocladiaceae (1/3)
Rhizophyllidaceae (0/1)
Rhodomelaceae (4/24)
Scinaiaceae (0/1)
Solieriaceae (3/4)
Spongitaceae (0/2)
Spyridiaceae (0/3)
Stylonemataceae (0/3)
Wrangeliaceae (0/2)
Profondeur Côtier Plateau Talus Abysses Domaine Domaine
littoral
néritique océanique
0-12
0-40
0-15
0-35
0-82
0-20
0-22
0-45
0-47
0-10
10-?
0-42
0-67
0-20
0-60
1-30
0-10
0-35
0-74
0-15
0-36
0-30
0-8
0-?
0-40
�86
Figure 36. Cartographie sur l'ensemble de la zone d'étude des occurrences de 94 des 129 espèces d'algues rouges
(Rhodophytes) de la zone d'inventaire.
Bathymétrie: GEBCO; 8 430 occurrences: OBIS, GBIF du 19/06/2021
Des Gracilariaceae, du genre Gracilaria ont été utilisées en Asie, en polyculture, associées avec des tilapias et
des poissons-lait; au Brésil Gracilaria a été associée aux crevettes d'élevage en cage en mer pour réduire
l'impact de la crevetticulture sur l'environnement, donnant de bons résultats sur la production de crevettes
comme sur celle d'algues. À noter que quatre espèces d'algues rouges ont été signalées dans le parc des trois
Baies (Miller, 2018), parmi elles, l'espèce Gracilaria terete n'a pas été inventoriée dans la base AlgaeBase ni
dans celle de WoRMS et n'a pas été retenue dans l'inventaire33.
La distribution des algues rouges est accolée à la ligne de côte. Plusieurs occurrences sont sur les côtes nord
et sud d'Haïti (figure 36).
3.3.3
Les algues brunes
Chez les algues brunes, les espèces signalées comme présentant un intérêt commercial sont moins nombreuses,
six espèces sur les 38 inventoriées dans la zone d'inventaire (tableau 23), elles font partie de la famille des
Sargassaceae, des genres Sargassum et Turbinaria.
La plupart des algues brunes sont benthiques sessiles mais dans la famille des Sargasses, Sargassaceae, 10
espèces du genre Sargassum sur les 12 sont signalées comme pélagiques ou benthopélagiques, les deux espèces
du genre Turbinaria, sont en revanche benthiques sessiles.
Tableau 23. Principales familles d'algues brunes (Ochrophytes) qui comptent 38 espèces dans la zone d'inventaire.
Nom français (FAO)
Nom créole
Famille
(n esp comm/n esp)
Acinetosporaceae (0/1)
Chordariaceae (0/1)
Dictyotaceae (2/18)
Sargassaceae (3/14)
Neoralfsiaceae (0/1)
Scytosiphonaceae (1/2)
Sphacelariaceae (0/1)
Profondeur Côtier Plateau Talus Abysses Domaine Domaine
littoral
néritique océanique
0-260
0-33
0-26
0-3
33 L'espèce est probablement en cours de détermination. Le terme terete pourrait ne pas être un nom d'espèce mais un qualificatif de la
morphologie de l'espèce. Ce terme utilisé par les anglo-saxons désigne des parties de végétaux dont la section transversale est circulaire,
ne présentant donc pas de faces supérieures et inférieures comme c'est le cas de nombreuses feuilles d'arbres.
�87
Chez les espèces benthiques sessiles, seules les aires de distribution des Dictyotaceae s'étendent au-delà des
fonds de 100 m et pour la plus profonde jusqu'à 260 m. Lobophora variegata, une Dictyotaceae, s'accroche à
des racines de mangroves, aux récifs coralliens au niveau des tombants, aux roches jusqu'à 120 m de
profondeur, elle a été rencontrée dans une grotte sous-marine à Belize. Dictyota bartayresiana, une autre
Dictyotaceae qui se rencontre jusqu'à 108 m, synthétise des dictyols, molécules organiques appartenant aux
diterpènes, qui les empêchent d'être ingérées par les poissons de récifs.
Le principal usage des algues brunes est alimentaire mais certaines sont utilisées pour l'extraction d'alginate,
un hydrocolloïde qui sert de gélifiant. C'est le cas des sargasses des genres Sargassum et Turbinaria.
La Scytosiphonaceae, Hydroclathrus clathratus, est riche en iode, en protéines, en vitamines et contient des
acides folique et folinique, des régulateurs de croissance et de l'acide alginique; elle est utilisée dans
l'alimentation humaine et animale
Les algues brunes sont utilisées dans l'alimentation animale et comme engrais et comme complément
alimentaire en aquaculture.
La distribution des occurrences des algues brunes est concentrée le long des lignes de côtes; les points au large,
en particulier au nord-est correspondent à des espèces pélagiques, en particulier, aux sargasses (figure 37).
Figure 37. Cartographie sur l'ensemble de la zone d'étude des occurrences de 31 des 38 espèces d'algues brunes
(Ochrophytes) de la zone d'inventaire.
Bathymétrie: GEBCO; 4 809 occurrences: OBIS, GBIF du 19/06/2021.
�88
4
Focus sur les espèces reconnues d'intérêt pour la pêche, leurs distributions
bathymétriques et spatiales
4.1
Les déclarations de captures
Les captures déclarées à la FAO par Haïti, la République dominicaine, Cuba et la Jamaïque ont été consultées
sur les bases de données FishstatJ (FAO, 2021) en se restreignant aux captures en mer dans la zone d'Atlantique
Centre Ouest (zone FAO 31) afin d'identifier les grands groupes de poissons commerciaux contribuant le plus
aux débarquements.
En 2016, celles d'Haïti et de la Jamaïque sont peu détaillées tandis que celles de la République Dominicaine et
de Cuba le sont davantage (figure 38). Les captures de poissons de mer déclarées par Cuba et par la République
dominicaine pouvaient servir de base à la définition de grands groupes d'espèces d'intérêt pour la pêche dans
la région et pouvant faire l'objet de déclarations de captures aux ORGP (figure 39).
De grandes différences existent entre les compositions des débarquements des deux pays mais il est possible
d'extraire des grands groupes d'espèces d'intérêt halieutique indépendamment de leur appartenance à l'un ou
l'autre des peuplements identifiés précédemment.
Dans chaque groupe un examen des distributions bathymétriques de chaque espèce a été opéré à partir des
informations de l'inventaire dressé précédemment ainsi qu'une cartographie de leurs occurrences. Les espèces
signalées comme d'un intérêt commercial uniquement sur le marché des espèces ornementales y seront
signalées d'un astérisque accolé à la fin de leur nom scientifique.
Figure 38. Captures en mer déclarées à la FAO en 2016 (en tonnes) par grandes catégories de produits.
CRUSTACÉS; 550
Madrépores; 10
bêches de mer; 20
MOLLUSQUES
GASTÉROPODES
ET BIVALVES; 200
POISSONS DE
MER RENSEIGNÉS;
0
CRUSTACÉS;
1708
MOLLUSQUES
GASTÉROPODES
ET BIVALVES;
1714
DIVERS POISSONS
MARINS; 4742
POISSONS DE
MER
RENSEIGNÉS;
5401
DIVERS POISSONS
MARINS; 15130
HAÏTI
RÉPUBLIQUE DOMINICAINE
CRUSTACÉS;
350
CÉPHALOPODES
;0
CRUSTACÉS;
5916
DIVERS
POISSONS
MARINS; 5400
MOLLUSQUES
GASTÉROPODES
ET BIVALVES;
3750
POISSONS DE
MER
RENSEIGNÉS;
8343
CUBA
CÉPHALOPODES;
46
DIVERS
POISSONS
MARINS; 12000
SPONGIAIRES;
34
MOLLUSQUES
GASTÉROPODES
ET BIVALVES;
774
JAMAÏQUE
POISSONS DE
MER
RENSEIGNÉS; 0
�89
4.2
Les techniques de pêche utilisées
Si les informations sur les techniques et engins de pêche sont fournies par la littérature sur les pêches d'Haïti,
celles-ci ne permettent pas toujours de les relier aux espèces ciblées. Les bases de données Fishbase et
Sealifebase sont exsangues de ces informations. Les informations sur les techniques de pêche sont toutes
extraites des travaux de la FAO (Cervigón et al., 1993; FAO, 1978, 2002a, 2002b, 2002c). Les informations
collectées sur les techniques de pêche ont une portée générale à l'échelle de la grande région suivie par la
COPACO (zone 31), elles ne sont pas toutes transposables aux pêches d'Haïti et seules des enquêtes auprès
des pêcheurs permettront d'en avoir une représentation précise.
4.2.1
Techniques de pêches ciblant les poissons
Les techniques de pêche répertoriées sont au nombre de 23, certaines sont inclusives (par exemple, le filet
maillant et le filet calé ou le filet dérivant). L'usage est exprimé en pourcentage d'espèces capturées avec la
technique de pêche donnée, par exemple chez les vivaneaux, pour 44 pour cent des espèces pour lesquelles la
technique de pêche a été renseignée, la technique de pêche est le filet maillant; pour 63 pour cent le casier;
pour 88 pour cent la ligne à main; etc. Plusieurs techniques de pêche peuvent être utilisées pour une même
espèce (tableau 24). Le chalut de fond, le chalut à perche et la drague sont indiqués mais leur usage est exclu
dans le cas d'Haïti car inutilisables en raison de la présence des récifs coralliens et du relief accidenté des fonds.
Les techniques de pêche les plus utilisées sont la seine de plage, puis la seine, le filet maillant et le casier,
suivies par la palangre.
4.2.2
Techniques de pêche ciblant les invertébrés marins
26 techniques de pêche aux invertébrés ont été dénombrées (tableau 25) dont trois ne sont pas applicables à
Haïti pour les raisons invoquées précédemment (§ 4.2.1): le chalut de fond, le chalut à perche et la drague. Les
techniques de pêche ciblant les crevettes sont les plus nombreuses, une douzaine en excluant les trois
techniques mentionnées précédemment34. Pour les autres groupes d'invertébrés la collecte à la main est la
technique de pêche la plus utilisée.
Figure 39. Répartition des captures de poissons de mer détaillées dans les déclarations à la FAO de la République
dominicaine et de Cuba en 2016 (en tonnes).
34 Voir également: VENDEVILLE, P. 1990. Tropical Shrimp fisheries types of fishing gears used and their selectivity. FAO
Fisheries Technical Paper, 261, 75 pp. https://www.documentation.ird.fr/hor/fdi:31399
�90
PERROQUETS
ACOUPAS
ROUGETS
BLANCHES
CROSSIES
6
6
83
67
6
72
67
39
54
62
85
77
8
31
-
27
7
20
53
27
7
7
27
53
60
67
20
2040
20
40
40
89
89
89
100
89
78
22
75
75
-
11
11
89
100
44
9
45
73
9
7
29
7
21
7
36
7
29
7
46
43
7
29
14
86
14
57
43
71
25
7
14
29
54
18
57
11
7
7
57
100
100
100
-
7
2
2
2
16
14
5
9
5
7
5
7
27
48
2
16
2
MÉSOPELAGIQUES
OCÉANIQUES
BATHYPELAGIQUES BATHYAUX
ET ABYSSAUX
REQUINS
GORETTES
61
4
26
70
9
70
4
4
4
70
57
48
ÉPIPELAGIQUES OCÉANIQUES
RAIES
CARANGUES
4
67
81
22
7
4
22
37
DÉMERSAUX BAS DE PLATEAU TALUS
BENTHIQUES BAS DE PLATEAU TALUS
AUTRES PÉLAGIQUES
NÉRITIQUES
AUTRES PÉLAGIQUES CÔTIERS
MÉROUS
41
24
59
29
53
88
12
29
29
41
HERBIERS
ANCHOIS
VIVANEAUX
Filet maillant
Filet calé (fond)
Filet dérivant
Trémail
Casier, nasse
Palangre
Palangre de fond
Long-line
Traîne
Ligne à main
Hameçon
Canne
Épervier
Harpon, fusil
Filet petit maillage
Salabarde, lampe
Piège à lampe
Seine
Seine de plage
Chalut de fond
Chalut à perche
Épuisette
Drague
AUTRES RÉCIFAUX
SARDINES
100
20
20
10
80
50
80
-
ENGIN DE PÊCHE
AUTRES CÔTIERS DÉMERSAUX
MULETS
Tableau 24. Fréquences (%) des techniques de pêche ciblant les poissons par groupes d'espèces (Cf texte).
11
11
69
31
5
1
2
29
1
4
9
1
2
4
19
18
35
24
6
41
6
12
35
2
18
20
9
7
5
11
30
80
6
18
29
6
29
71
41
6
12
12
41
6
3
3
19
78
75
69
181
6
6
6
75
19
17
57
26
4
35
4
13
35
22
9
39
35
22
22
14
90
�91
CRABES
PIEUVRES
POULPES
CALMARS
ENCORNETS
GASTÉROPODES
BIVALVES
Filet maillant
Trémail
Casier, nasse
Ligne à main
Hameçon
Trottine
Turlutte (Jigs, jigging)
Épervier
Harpon, fusil
Piège, filet-lampe
Seine
Seine de plage
Chalut de fond
Chalut à perche
Chalut à l'étalage
Verveux, capéchade
Carrelet
Haveneau
Épuisette
Petit filet
À la main (plongée ou à pied)
Pelle, râteau
Pots
Pièges
Drague
Pêche artisanale (nr)
HOMARDS
LANGOUSTES
CIGALES DE MER
Engin de pêche
CREVETTES
Tableau 25. Fréquences des techniques de pêche ciblant les invertébrés par groupes d'espèces exprimées en pourcentage (Cf texte §4.2.1); nr = non renseigné.
0
6
6
19
25
13
88
19
13
19
25
19
13
13
-
13
50
50
13
50
13
50
-
38
6
6
19
6
81
6
44
25
25
6
6
13
75
50
75
100
25
20
40
40
40
-
3
12
97
3
3
-
10
17
100
55
12
12
-
�92
4.3
Distributions bathymétriques et spatiales des principales espèces d'intérêt halieutique
La distribution bathymétrique est illustrée sur une échelle d'un pas de 50 m en indiquant en bleu clair la gamme
bathymétrique des fonds inférieurs à 50 m, gamme de sonde correspondant globalement à la zone exploitée
actuellement par la pêche artisanale; en bleu foncé la gamme de sonde comprise entre 50 et 150 m qui
correspond à une zone d'extension possible de l'activité de la pêche artisanale et enfin en En bleu plus soutenu
les sondes de plus de 150 m jusqu'à 750 m et jusqu'à 1 500 m et au-delà pour les espèces les plus profondes;
cette dernière zone est inaccessible à la pêche artisanale ou accessible dans le cas de la pêche aux pélagiques
océaniques, dédiée à la pêche sur DCP.
4.3.1
Les vivaneaux
Chez les vivaneaux qui contribuent substantiellement aux débarquements en République dominicaine comme
à Cuba, seules trois espèces: le vivaneau dentchien, Lutjanus apodus, le vivaneau cubéra, L. cyanopterus, et le
vivaneau chien, L. jocu; présentent des distributions bathymétriques comprises entièrement dans les 100
premiers mètres de profondeur (figure 40). Les distributions bathymétriques des 14 autres espèces (L.
ambiguus n'étant pas pris en compte faute d'informations sur cette espèce ou hybride rare) s'étendent plus
profondément que l'isobathe des 100 m et chez la plupart au-delà des fonds de 150 m. La distribution spatiale
des occurrences des vivaneaux (figure 41) ne rend pas compte de l'extension plus au large de ces espèces,
hormis quelques points au nord-ouest et au centre-nord de Cuba, au sud de la Jamaïque et au nord de la
République dominicaine. En Haïti, les occurrences sont à proximité de l’île de la Navase. La plupart des
occurrences sont accolées à la côte ou aux récifs coralliens (Cf § 6.2.3).
4.3.2 Les mérous et autres Serranidae
Chez les mérous dont les débarquements étaient conséquents en République dominicaine en 2016, 39 espèces
présentent un intérêt commercial en Haïti, selon les sources consultées et en y associant les autres Serranidae
comme les hamlets et les serrans. Parmi ces espèces 13 seraient dédiées uniquement au commerce des poissons
ornementaux.
Sept espèces ont leurs distributions bathymétriques situées dans les 50 premiers mètres de profondeur, celles
de 20 autres espèces s'étendent au-delà des 50 m mais en-deçà ou jusqu'à 150 m et chez 12 d'entre elles,
s'étendent au-delà de l'isobathe des 150 m (figure 42). De même, la distribution spatiale des occurrences ne
reflète pas l'extension attendue des distributions vers le large à part de rares points à l'est de la Jamaïque et au
sud-ouest d'Haïti mais qui en fait correspond à l'île de la Navase (figure 43).
4.3.3 Les Carangues
Les carangues et autres Carangidae comptent 26 espèces d'intérêt commercial et appartiennent en grande
majorité au peuplement pélagique néritique. Leurs distributions bathymétriques s'étendent en majorité au- delà
de la sonde des 50 m (figure 44). Les occurrences restent pour autant localisées à proximité de la côte ou des
récifs coralliens (figure 45).
Figure 40. Distributions bathymétriques des vivaneaux commerciaux signalés en Haïti.
�93
Figure 41. Cartographie sur l'ensemble de la zone d'étude des occurrences des 18 espèces de vivaneaux de la zone
d'inventaire.
Bathymétrie: GEBCO; 108 781 occurrences: OBIS, GBIF, VertNet du 25/06/2021.
Figure 42. Distributions bathymétriques des mérous et autres Serranidae commerciaux signalés en Haïti
�94
Figure 43. Cartographie sur l'ensemble de la zone d'étude des occurrences des 39 espèces de mérous de la zone
d'inventaire.
Bathymétrie: GEBCO; 85 833 occurrences: OBIS, GBIF, VertNet du 23/06/2021.
Figure 44. Distributions bathymétriques des carangues (Carangidae) commerciales signalées en Haïti.
�95
Figure 45. Cartographie sur l'ensemble de la zone d'étude des occurrences des 26 espèces de carangues et autres
Carangidae de la zone d'inventaire.
Bathymétrie: GEBCO; 40 130 occurrences: OBIS, GBIF, VertNet du 21/06/2021.
4.3.4
Les gorettes et autres Haemulidae
Chez les gorettes et autres Haemulidae, seules six espèces ont leur distribution qui s'étend au-delà des 50 m,
chez une seule elle s'étend au-delà de 100 m et chez aucune, au-delà des 150 m (figure 46). Les trois quarts de
ces espèces se rattachent au peuplement de récifs coralliens et la distribution des occurrences en témoigne
(figure 47).
4.3.5
Les perroquets (Scaridae)
Chez les perroquets, quatre des 16 espèces sont destinées uniquement au marché des espèces ornementales. 13
espèces sont inféodées aux récifs coralliens et les trois autres aux herbiers. Les distributions bathymétriques
de 12 espèces sur les 16, sont contenues dans les 50 premiers mètres, aucune ne s'étend au-delà de 106 m
(figure 48). Leur distribution spatiale (figure 49) est fidèle à celle des récifs coralliens.
4.3.6
Les acoupas et autres Sciaenidae
Chez les acoupas et autres Sciaenidae (mamselle, tambour, ombrines, etc.) neuf espèces sur les 14 espèces
d'intérêt commercial ont leurs distributions benthiques en-deçà de la sonde des 50 m et toutes en-deçà des 150
m, au maximum jusqu'à 113 m (figure 50). Leur distribution spatiale est accolée à la côte (figure 51).
4.3.7
Les rougets (Mullidae)
Chez les cinq espèces de rougets, seule la distribution bathymétrique du capucin jaune, Mulloidichthys
martinicus, est en-deçà de 50 m, les distributions benthiques des quatre autres s'étendent entre 50 et 100 m
(figure 52). Les occurrences enregistrées dans les bases OBIS, GBIF et VertNet sont proches de la côte (figure
53).
4.3.8
Les blanches (Gerreidae)
Les blanches et autres Gerreidae sont cantonnées à la côte sur des fonds de moins de 50 m à l'exception de la
blanche gros yaya, Diapterus rhombus, et de la blanche espagnole, Eucinostomus gula, dont les distributions
s'étendent au-delà de 50 m (figure 54). La cartographie rend compte d'occurrences accolées à la côte (figure
55).
4.3.9
Les crossies (Centropomidae)
Les distributions bathymétriques des quatre crossies ou brochets, Centropomidae (figure 56) sont toutes dans
des fonds de moins de 50 m. Ce sont des espèces typiquement côtières (figure 57).
�96
Figure 46. Distributions bathymétriques des Gorettes et autres Haemulidae commerciaux signalés en Haïti.
Figure 47. Cartographie sur l'ensemble de la zone d'étude des occurrences des 19 espèces de gorettes et Haemulidae
de la zone d'inventaire.
Bathymétrie: GEBCO; 149 383 occurrences: OBIS, GBIF, VertNet du 23/06/2021.
�97
Figure 48. Distributions bathymétriques des perroquets (Scaridae) commerciaux signalés en Haïti.
Figure 49. Cartographie sur l'ensemble de la zone d'étude des occurrences des 16 espèces de perroquets de la zone
d'inventaire.
Bathymétrie: GEBCO; 242 298 occurrences: OBIS, GBIF, VertNet du 23/06/2021.
�98
Figure 50. Distributions bathymétriques des acoupas et autres Sciaenidae commerciaux signalés en Haïti.
Figure 51. Cartographie sur l'ensemble de la zone d'étude des occurrences des 14 espèces d'acoupas et autres
Sciaenidae d'intérêt commercial de la zone d'inventaire.
Bathymétrie: GEBCO; 7 728 occurrences: OBIS, GBIF, VertNet du 19/06/2021.
�99
Figure 52. Distributions bathymétriques des rougets signalés en Haïti.
Figure 53. Cartographie sur l'ensemble de la zone d'étude des occurrences de quatre des cinq espèces de rougets
d'intérêt commercial de la zone d'inventaire.
Bathymétrie: GEBCO; 19 661 occurrences: OBIS, GBIF, VertNet du 25/06/2021.
Figure 54. Distributions bathymétriques des blanches (Gerreidae) signalées en Haïti.
�100
Figure 55. Cartographie sur l'ensemble de la zone d'étude des occurrences des 11 espèces de blanches et autres
Gerreidae de la zone d'inventaire.
Bathymétrie: GEBCO; 6 752 occurrences: OBIS, GBIF, VertNet du 21/06/2021.
Figure 56. Distributions bathymétriques des crossies (Centropomidae) signalés en Haïti.
Figure 57. Cartographie sur l'ensemble de la zone d'étude des occurrences des quatre espèces de crossies ou
brochets de la zone d'inventaire.
Bathymétrie: GEBCO; 1 178 occurrences: OBIS, GBIF, VertNet du 21/06/2021.
�101
4.3.10 Les mulets (Mugilidae)
Les distributions bathymétriques de neuf des dix espèces de mulet sont dans des fonds de moins de 50 m et
proches de la côte, seul le mulet hospe, Mugil hospes, dont l'aire de distribution s'étend de la côte jusqu'aux
fonds de 125 m fait exception (figure 58). Ce sont des espèces typiquement côtières et certaines peuvent
remonter en amont des cours d'eau35 (figure 59).
4.3.11 Les sardines et harengules (Clupeidae)
Les distributions bathymétriques de sept des 10 espèces de sardines et autres Clupeidae d'intérêt commercial
se cantonnent dans les 50 premiers mètres de profondeur. Deux espèces, le hareng d'Atlantique, Clupea
harengus, et l'allache, Sardinella aurita, s'étendent bien au-delà de 150 m. Celle de la sardinelle du Brésil,
Sardinella brasiliensis, s'étend jusqu'aux fonds de 60 m (figure 60). Ces espèces sont côtières et leurs
occurrences sont accolées à la ligne de côte (figure 61).
4.3.12 Les anchois (Engraulidae)
Les anchois sont côtiers et sont cantonnés dans les 70 premiers mètres sous la surface dont neuf espèces entre
0 et 50 m (figure 62). Leurs occurrences sont accolées à la ligne de côte (figure 63).
Figure 58. Distributions bathymétriques des mulets signalés en Haïti.
Figure 59. Cartographie sur l'ensemble de la zone d'étude des occurrences de 7 des 10 espèces de mulets de la zone
d'inventaire.
Bathymétrie: GEBCO; 777 occurrences: OBIS, GBIF, VertNet du 23/06/2021.
35 Les points correspondants à des occurrences les plus en amont des cours d'eaux, les plus éloignés de la côte ou des embouchures ont
été supprimés manuellement.
�102
Figure 60. Distributions bathymétriques des sardines et harengules (Clupeidae) signalés en Haïti.
Figure 61. Cartographie sur l'ensemble de la zone d'étude des occurrences de neuf des 10 espèces de sardines et
harengules (Clupeidae) de la zone d'inventaire.
Bathymétrie: GEBCO; 3 595 occurrences: OBIS, GBIF, VertNet du 25/06/2021.
Figure 62. Distributions bathymétriques des anchois (Engraulidae) signalés en Haïti.
�103
Figure 63. Cartographie sur l'ensemble de la zone d'étude des occurrences de 11 des 12 espèces d'anchois
(Engraulidae) d'intérêt commercial signalées dans la zone d'inventaire.
Bathymétrie: GEBCO; 1 646 occurrences: OBIS, GBIF, VertNet du 19/06/2021.
Figure 64. Distributions bathymétriques des raies signalées en Haïti.
Figure 65. Cartographie sur l'ensemble de la zone d'étude des occurrences des neuf espèces de raies signalées de
la zone d'inventaire.
Bathymétrie: GEBCO; 4 012 occurrences: OBIS, GBIF, VertNet du 25/06/2021.
�104
4.3.13 Les raies
La distribution bathymétrique des raies s'étend pour trois d'entre-elles en-deçà de la sonde des 50 m. L'aire de
distribution de la pastenague longnez, Hypanus americanus, s'étend jusqu'à 53 m; celle de l'aigle de mer
léopard, Aetobatus narinari, jusqu'à 80 m; celle du poisson scie, Pristis pectinata, espèce probablement
disparue dans les eaux haïtiennes, jusqu'à 88 m; celle de la raie ronde, Urobatis jamaicensis, jusqu'à 160 m et
celle de la raie blanc-nez, Raja eglanteria, la plus profonde, jusqu'à 330 m (figure 64). Les trois autres espèces
sont dans les 40 premiers mètres. À noter que la raie Dasyatis hastata est considérée par certains auteurs
comme synonyme de Bathytoshia centroura, la raie des iles, et les informations sur sa distribution
bathymétrique sous son appellation D. hastata n'étaient pas disponibles.
Les occurrences des raies sont accolées à la ligne de côte, ou quand elles sont plus au large, elles restent sur le
plateau continental ou sur des hauts fonds (figure 65).
4.3.14 Les requins
Chez la majorité des requins les distributions bathymétriques s'étendent bien au-delà des 150 m et seules six
d'entre elles sont dans les eaux de moins de 100 m de profondeur (figure 66). Ce groupe d'espèces réunissant
des espèces démersales et pélagiques présente des distributions bathymétriques variées; chez 19 espèces, elles
s'étendent au-delà des 150 m et la roussette boa, Scyliorhinus boa, ne se rencontre qu'à partir de 329 m. La
distribution de ces espèces aux comportements divers, s'en trouve plus dispersée (figure 67); une concentration
située au nord-ouest d'Haïti à mi-distance de Cuba, au niveau du Passage du Vent, correspond à des espèces
de requins pélagiques océaniques; cette zone de concentration se retrouve également chez les poissons osseux
pélagiques océaniques et en particuliers les thons, les marlins et l'espadon. Le Passage du Vent, comme le
détroit de Yucatan et le passage de Mona sont des zones où se concentrent des flottilles de pêche thonière chez
lesquelles les requins participent au bycatch.
Figure 66. Distributions bathymétriques des requins signalés en Haïti.
�105
4.3.15 Les autres poissons côtiers bentho-démersaux
Sur les 68 espèces démersales côtières d'intérêt commercial et n'appartenant pas aux groupes précédemment
abordés, 13 sont destinées au seul marché d'espèces ornementales. La grande majorité de ces espèces ont des
distributions bathymétriques en-deçà de la sonde des 100 m et près des trois quarts ont leurs aires de
distributions dans les 50 premiers mètres de profondeur (figure 68). L'anguille, Anguilla rostrata, qui se
déplace jusqu'à la mer des Sargasses est l'espèce dont la distribution bathymétrique est la plus au large et
explique les points d'occurrences les plus au large au nord-est de la zone d'étude, à proximité de la mer des
Sargasses, dans les eaux de surface des plaines abyssales de Nares et d'Hatteras (figure 69).
4.3.16 Les autres poissons pélagiques côtiers
Les distributions bathymétriques des 14 espèces constituant ce groupe sont toutes en-deçà de la sonde des 40
m (figure 70). Leurs occurrences sont soit à la côte, soit au-dessus du plateau continental (figure 71).
4.3.17 Les autres poissons de récifs coralliens
Le nombre d'espèces de récifs coralliens d'intérêt commercial autres que celles précédemment présentées est
de 132 et parmi celles-ci 59 sont dédiées uniquement au marché d'espèces ornementales. Les distributions
bathymétriques sont en grande majorité en-deçà des fonds de 150 m (figure 72). Seulement 18 espèces d'entre
elles dépassent cette profondeur, soulignant que des récifs coralliens peuvent se trouver à des profondeurs
importantes. C'est ce que montre également la distribution spatiale des occurrences de ces 68 espèces, en
particulier des occurrences sur les bords de la fosse de Yucatan, du bassin Colombien et de la fosse de Porto
Rico au niveau du passage de Mona (figure 73).
4.3.18 Les autres poissons d'herbiers, champs d'algues et fonds à éponges
Le peuplement des herbiers compte 20 espèces d'intérêt commercial autres que celles présentées plus haut.
Parmi celles-ci, 11 sont destinées au seul marché des poissons d'ornement. Mise à part la distribution
bathymétrique de l'anguille des herbiers (seagrass eel), Chilorhinus suensonii, qui s'étend jusqu'aux fonds de
450 m, celles de toutes les autres espèces restent en-deçà des 150 m (figure 74). Les occurrences des 20 espèces
sur la ZEE d'Haïti sont clairsemées (figure 75).
4.3.19 Les autres poissons démersaux de bas de plateau et haut de talus
Parmi les 48 espèces d'intérêt commercial de ce peuplement autres que celles présentées plus haut, sept sont
dédiées uniquement au marché d'espèces ornementales. La distribution de la grande majorité de ces espèces
s'étend au-delà de la sonde des 150 m (figure 76). Les occurrences dans la ZEE d'Haïti sont rares (figure 77).
Figure 67. Cartographie sur l'ensemble de la zone d'étude des occurrences des 28 espèces de requins signalées de
la zone d'inventaire.
Bathymétrie: GEBCO; 12 550 occurrences: OBIS, GBIF, VertNet du 25/06/2021.
�106
Figure 68. Distributions bathymétriques des autres poissons côtiers bentho-démersaux signalés en Haïti.
�107
Figure 69. Cartographie sur l'ensemble de la zone d'étude des occurrences de 66 des 68 espèces d'autres poissons
côtiers bentho- démersaux de la zone d'inventaire.
Bathymétrie: GEBCO; 52 605 occurrences: OBIS, GBIF, VertNet du 28/06/2021.
Figure 70. Distributions bathymétriques des autres poissons pélagiques côtiers signalés en Haïti.
Figure 71. Cartographie sur l'ensemble de la zone d'étude des occurrences des 14 espèces d'autres poissons
pélagiques côtiers de la zone d'inventaire.
Bathymétrie: GEBCO; 8 531 occurrences: OBIS, GBIF, VertNet du 19/06/2021.
�108
Figure 72. Distributions bathymétriques des autres poissons de récifs coralliens signalés en Haïti (en raison du
grand nombre d'espèces, la figure est présentée en deux volets et les gammes de sonde ont été réduites entre 0 et
350 m sur le graphique).
�109
Figure 73. Cartographie sur l'ensemble de la zone d'étude des occurrences de 130 des 132 espèces d'autres poissons
de récifs coralliens d'intérêt commercial de la zone d'inventaire.
Bathymétrie: GEBCO; 815 628 occurrences: OBIS, GBIF, VertNet du 20/06/2021.
Figure 74. Distributions bathymétriques des autres poissons d'herbiers signalés en Haïti.
Figure 75. Cartographie sur l'ensemble de la zone d'étude des occurrences des 20 espèces d'autres poissons des
herbiers de la zone d'inventaire.
Bathymétrie: GEBCO; 26 662 occurrences: OBIS, GBIF, VertNet du 19/06/2021).
�110
Figure 76. Distributions bathymétriques des autres poissons démersaux de bas de plateau et de haut de talus
signalés en Haïti.
�111
Figure 77. Cartographie sur l'ensemble de la zone d'étude des occurrences de 46 des 48 espèces d'autres poissons
démersaux de bas de plateau et de haut de talus de la zone d'inventaire.
Bathymétrie: GEBCO; 18 572 occurrences: OBIS, GBIF, VertNet du 19/06/2021.
4.3.20 Les autres poissons benthiques de bas de plateau et haut de talus
Les distributions bathymétriques de ces 13 espèces se partagent pour moitié en-deçà de la sonde des 100 m et
pour moitié au-delà de la sonde des 150 m (figure 78). Les occurrences sont rares dans la ZEE d'Haïti (figure
79).
4.3.21 Les autres poissons néritiques épipélagiques
Chez ces espèces, 14 se rencontrent dans les 50 premiers mètres sous la surface ou moins, six peuvent se
rencontrer à plus de 150 m sous la surface, mais à moins de 200 m à l'exception du poisson sabre fleuret,
Benthodesmus tenuis, qui se rencontre entre 200 et 850 m (figure 80). La plus forte concentration des
occurrences aux abords d'Haïti se situe dans le passage du Vent qui sépare l'île d'Hispaniola de celle de Cuba
(figure 81).
4.3.22 Les poissons épipélagiques océaniques
Chez les poissons pélagiques océaniques, les distributions bathymétriques s'étendent toutes au-delà des 50 m
sauf celle du rémora blanc, Echeneis neucratoides, et celle du thon à nageoires noires, Thunnus atlanticus
(figure 82). Les 22 espèces de ce groupe sont toutes rattachées au peuplement huit détaillé plus haut avec sa
distribution spatiale (figure 21). La cartographie des sept espèces de thons (figure 83) et celle des makaires et
de l'espadon (figure 84) rendent compte de fortes concentrations au niveau du passage du Vent comme au
niveau des détroits de Yucatan et de Floride, ainsi qu'au niveau du passage de Mona, zones exploitées par les
flottilles de pêche thonière états-uniennes.
4.3.23 Les poissons mésopélagiques océaniques
Les distributions bathymétriques de toutes ces espèces s'étendent bien au-delà des fonds de 200 m. Pour
apporter une information la plus complète possible, l'échelle bathymétrique a été étendue jusqu'aux sondes de
1 500 m (figure 85), mais la distribution bathymétrique de trois espèces s'étend bien au-delà: 7 625 m pour
l'espèce la plus profonde, Eurypharynx pelecanoides. Bien que les occurrences soient peu nombreuses, leur
cartographie montre également une concentration au niveau du passage du Vent (figure 86).
4.3.24 Les poissons bathypélagiques, bathyaux et abyssaux
Les distributions bathymétriques de la plupart de ces espèces s'étendent au-delà de 1 500 m, en moyenne
2 700 m et chez l'espèce la plus profonde jusqu'à 5 055 m (figure 87). Les occurrences sont peu nombreuses
sur la ZEE d'Haïti, elles se situent au large de la limite des eaux territoriales (figure 88).
�112
Figure 78. Distributions bathymétriques des autres poissons benthiques de bas de plateau et de haut de talus
signalés en Haïti.
Figure 79. Cartographie sur l'ensemble de la zone d'étude des occurrences des 13 espèces d'autres poissons
benthiques de bas de plateau et de haut de talus de la zone d'inventaire.
Bathymétrie: GEBCO; 7 588 occurrences: OBIS, GBIF, VertNet du 19/06/2021.
�113
Figure 80. Distributions bathymétriques des autres poissons néritiques épipélagiques signalés en Haïti.
Figure 81. Cartographie sur l'ensemble de la zone d'étude des occurrences de 26 des 28 espèces d'autres poissons
néritiques épipélagiques de la zone d'inventaire.
Bathymétrie: GEBCO; 22 653 occurrences: OBIS, GBIF, VertNet du 19/06/2021.
�114
Figure 82. Distributions bathymétriques des poissons épipélagiques océaniques signalés en Haïti.
Figure 83. Cartographie sur l'ensemble de la zone d'étude des occurrences des sept espèces de thons de la zone
d'inventaire.
Bathymétrie: GEBCO; occurrences: 14 122 dans OBIS, GBIF et VertNet du 29/06/2021.
�115
Figure 84. Cartographie sur l'ensemble de la zone d'étude des occurrences des cinq espèces de makaires de marlins
et de l'espadon de la zone d'inventaire.
Bathymétrie: GEBCO; occurrences: 22 546 dans OBIS, GBIF et VertNet du 29/06/2021; les occurrences de l'espadon
en représente l'essentiel: 20 188.
Figure 85. Distributions bathymétriques des poissons mésopélagiques océaniques signalés en Haïti.
Figure 86. Cartographie sur l'ensemble de la zone d'étude des occurrences des 15 espèces de poissons
mésopélagiques océaniques de la zone d'inventaire.
Bathymétrie: GEBCO; 1 942 occurrences: OBIS, GBIF, VertNet du 19/06/2021.
�116
Figure 87. Distributions bathymétriques des poissons bathypélagiques, bathyaux et abyssaux signalés en Haïti.
Figure 88. Cartographie sur l'ensemble de la zone d'étude des occurrences de 17 des 18 espèces de poissons
bathypélagiques, bathyaux et abyssaux de la zone d'inventaire.
Bathymétrie: GEBCO; 3 722 occurrences: OBIS, GBIF, VertNet du 20/06/2021.
�117
5
Spécificités des espèces récifales
5.1
La reproduction
Les espèces du peuplement des récifs coralliens et de celui des herbiers qui lui est étroitement associé, ont
montré trois traits particuliers de leur système de reproduction: l'hermaphrodisme, les organisations sociales
liées à la reproduction et le comportement agrégatif à la période de reproduction. Ces particularités ont été
mentionnées dans la présentation de quelques espèces (Cf. § 3.2.1.3 et § 3.2.1.4). L'objectif de cet exposé est
de présenter une vision à l'échelle de ces deux peuplements afin de sensibiliser les gestionnaires des pêches
aux mesures particulières qu'il conviendrait de prendre en termes de réglementation des pêches et en terme
d'aménagement.
5.1.1
L'hermaphrodisme
L'hermaphrodisme n'est pas rare chez les poissons téléostéens, c'est l'expression des deux fonctions
reproductives mâles et femelles chez chaque individu d'une même espèce. Chez les espèces gonochoriques, le
dimorphisme s'exprime dès les premiers stades de la vie et les individus seront prédéterminés mâles ou femelles
dès la naissance. Chez les hermaphrodites, les organes des deux sexes sont présents et peuvent s'exprimer soit
simultanément (hermaphrodisme simultané ou synchrone), ou de manière séquentielle, les gonades de chacun
des deux sexes s'exprimant les unes après les autres après maturation au cours du cycle vital (hermaphrodisme
séquentiel). Les espèces hermaphrodites séquentielles sont protogynes lorsque les gonades femelles
s'expriment les premières, elles sont protandres lorsque les gonades mâles sont fonctionnelles les premières.
Les espèces protogynes, sont monandriques lorsque tous les mâles sont, suite à la maturation des gonades,
issus de femelles; ils sont diandriques lorsque certains individus ont des gonades mâles fonctionnelles dès leur
première maturité et que d'autres sont issus de femelles, il y aura alors des mâles primaires et des mâles
secondaires; généralement les mâles primaires seront plus féconds que les mâles secondaires36. De même des
espèces protandres seront soit monogyniques lorsque toutes les femelles sont issues de mâles après maturation
de leurs gonades ou digyniques lorsque coexistent des femelles de première génération, non issues de mâles,
et des femelles issues de mâles. Enfin chez certaines espèces protogynes, des femelles peuvent ne pas changer
de sexe, il s'agira alors de femelles primaires, les autres étant des femelles hermaphrodites; les femelles
primaires seront généralement plus fécondes que les femelles hermaphrodites.
Pour être complet sur les phénomènes d'hermaphrodisme, il faut évoquer le cas d'hermaphrodisme
exceptionnel ou anormal, qui provient de perturbations chimiques ou hormonales chez des espèces de poissons
où coexistent les tissus gonadiques mâles et femelles mais chez lesquelles d'ordinaire un seul sexe est exprimé:
des cas ont été observés chez des Clupeidae et des Bothidae; ainsi que les cas d'androgynie, lorsqu'un individu
d'une espèce revêt les apparences (couleurs, taille, etc.) d'une femelle et que ses organes sexuels fonctionnels
sont mâles, ou à l'inverse qu'un individu revête les apparences d'un mâle lorsque ses organes sexuels
fonctionnels sont femelles.
Dans la littérature, la question de l'hermaphrodisme a été abordée sous l'angle de la phylogénèse (Sadovy de
Mitcheson et Liu, 2008), sous l'angle d'études de certaines familles de téléostéens (Robertson et Warner, 1978;
Warner et Robertson, 1978; Barlow, 1975). Lors de ce travail d'inventaire sur Haïti, il est apparu que les
espèces présentant des cas d'hermaphrodisme étaient le plus souvent rattachées aux peuplements de récifs
coralliens et des herbiers, ces deux peuplements étant étroitement imbriqués. Les espèces hermaphrodites
représentent 21 pour cent des espèces du peuplement des récifs coralliens et 10 pour cent des espèces du
peuplement d'herbiers, champs d'algues et fonds à éponges (tableau 26).
L'hermaphrodisme séquentiel d'espèces exploitées est à prendre en compte dans la gestion des pêches. Leurs
populations sont plus vulnérables à la pêche que les populations gonochoriques, car leur potentiel reproducteur
se voit plus fortement réduit (Huntsman et Schaaf, 1994); une sélectivité inappropriée des engins de pêche
peut aggraver l'effet de la mortalité sur l'équilibre du sexe- ratio.
On doit signaler un cas d'hermaphrodisme protandre chez le crossie blanc, Centropomus undecimalis, une
espèce du peuplement des poissons démersaux côtiers.
36 Cette prévalence généralement constatée, n'est pas systématique. Il en est de même pour les femelles.
�118
Tableau 26. Espèces hermaphrodites recensées dans l'inventaire des poissons téléostéens d'Haïti. Chez toutes ces
espèces il s'agit de protogynie; lorsqu'il a pu être renseigné le type est monandrique (m) ou diandrique (d), sinon
séquentiel (séq); le type (hs) correspond à des hermaphrodites synchrones. La taille de changement de sexe est
indiquée.
Famille
Récifs coralliens
Cirrhitidae
Gobiidae
Nom scientifique
Amblycirrhitus pinos
Coryphopterus eidolon
Coryphopterus personatus
Lythrypnus spilus
Priolepis hipoliti
Tigrigobius multifasciatus
Labridae
Bodianus rufus
Clepticus parrae
Halichoeres bivittatus
Halichoeres garnoti
Halichoeres maculipinna
Halichoeres pictus
Lachnolaimus maximus
Thalassoma bifasciatum
Pomacanthidae
Holacanthus tricolor
Scaridae
Scarus coelestinus
Scarus coeruleus
Scarus guacamaia
Scarus iseri
Scarus taeniopterus
Scarus vetula
Sparisoma atomarium
Sparisoma aurofrenatum
Sparisoma chrysopterum
Sparisoma rubripinne
Sparisoma viride
Serranidae
Cephalopholis cruentata
Cephalopholis fulva
Dermatolepis inermis
Epinephelus adscensionis
Epinephelus guttatus
Epinephelus itajara
Epinephelus morio
Epinephelus striatus
Hypoplectrus aberrans
Hypoplectrus chlorurus
Hypoplectrus gemma
Hypoplectrus gummigutta
Hypoplectrus guttavarius
Hypoplectrus indigo
Hypoplectrus nigricans
Hypoplectrus puella
Hypoplectrus unicolor
Mycteroperca bonaci
Mycteroperca interstitialis
Mycteroperca tigris
Serranus flaviventris
Serranus tabacarius
Serranus tigrinus
Serranus tortugarum
Herbiers, champs d'algues et fonds à éponges
Labridae
Halichoeres poeyi
Xyrichtys martinicensis
Xyrichtys novacula
Scaridae
Cryptotomus roseus
Serranidae
Alphestes afer
Nom vernaculaire
L max (cm)
Grimpeur des Caraïbes
Gobie pâle
Gobie nageur masqué
Bluegold goby (En)
Rusty goby (En)
Gobie momie
Pourceau espagnol
Donzelle créole
Slippery dick (En)
Girelle à tête jaune
Clown wrasse (En)
Painted wrasse (En)
Labre capitaine
Girelle tête bleue
Demoiselle beauté
Perroquet noir
Perroquet bleu
Perroquet arc-en-ciel
Perroquet rayé
Perroquet princesse
Perroquet périco
Perroquet à tâche verte
Perroquet tacheté,
Perroquet vert
Perroquet basto
Perroquet feu
Coné essaim(Mérou),
coné ouatalibi
Mérou marbré
Grand gueule
Mérou couronné
Mérou géant
Mérou rouge
mérou rayé
Hamlet
Hamlet queue jaune
Hamlet bleu
Hamlet doré
Hamlet timide
Hamlet indigo
Hamlet noir
Hamlet marbré
Hamlet unicolore
Badèche bonaci
Badèche gueule jaune
Badèche tigre
Twinspot bass (En)
Serran tabac
Serran tigré
Serran craie
9,5
6,0
4,0
2,5
4,0
5,0
50,0
30,0
35,0
30,0
18,0
13,0
91,0
25,0
35,0
77,0
120,0
120,0
35,0
35,0
61,0
25,0
28,0
46,0
18,0
64,0
42,6
41,0
91,0
62,0
76,0
250,0
125,0
122,0
13,0
13,0
13,0
13,2
13,0
15,0
15,2
15,2
13,0
150,0
84,0
101,0
8,0
22,0
29,0
8,0
Blackear wrasse (En)
Rason rose
Donzelle lame
Perroquet à lèvre bleue
Varech
20,0
15,0
38,0
13,0
13,0
L commune
(cm)
28,0
22,0
35,0
30,0
50,0
35,0
70,0
18,0
22,0
32,0
20,0
25,0
30,0
38,,0
20,0
25,0
50,0
35,0
40,0
150,0
50,0
70,0
40,0
40,0
16,0
type
L ♀ >> ♂
hs
hs
m
m
m
d
m
d
d
m
d
2,0
17,28
15,78
30,2
7,3
10,9
7,9
30,0 à 40,0
8,3
d
9,6
m
m
m
?
m
25,2
5,5
17,5
séq
séq
20,0 à 23,0
20,0
séq
28,0 à 38,0
séq
d
hs
hs
hs
hs
hs
hs
hs
hs
hs
m
séq
m
hs
hs
hs
hs
75,5
30,0 à 80,0
25,0
82,5 à 125,0
37,0 à 45,0
d
8,3
m
séq
5,75
20,0
�119
5.1.2
Les agrégations en période de reproduction
L'agrégation en période de reproduction, «Fish Spawning Aggregation» (FSA), est une concentration répétée
d'animaux marins conspécifiques37, rassemblés dans le but de frayer, qui est prévisible dans le temps et dans
l'espace. La densité (le nombre d'individus participant à l'agrégation de reproduction) est d'au moins quatre
fois supérieure à celle de rassemblements en dehors de la période de ponte (par exemple, bancs). L'agrégation
de reproduction se traduit par une source ponctuelle de masse de progéniture (Domeier, 2012). Ce phénomène
ne se restreint pas aux seules communautés de poissons des récifs coralliens, ni aux seuls poissons, par exemple
des concentrations de crabes de terre ou de crabes bleus, surviennent en période de ponte, ainsi les Crabes
zombi, Gecarcinus ruricola, donnent lieu à de spectaculaires invasions tous les ans au sud-est de Cuba, lors
de leur migration pour pondre en mer dans la baie des Cochons au mois de mai; il en est de même en Floride
où les crabes bleus, Callinectes sapidus, envahissent les rues chaque année au mois d'août; mais chez les
poissons, la plupart des espèces formant des agrégations appartiennent au peuplement des récifs coralliens.
On distingue des agrégations résidentes (AR), lorsqu'elles s'alimentent d'individus à proximité de la zone
d'agrégation, celle-ci se situant le plus souvent sur le territoire où vivent ces espèces; le phénomène se
produisant en quelques heures et la ponte survenant à des heures particulières, étant également rapide; le
phénomène pouvant se répéter pendant une saison ou tout au long de l'année et par opposition, les agrégations
transterritoriales (AT), alimentées sur une vaste zone, plus large que les territoires où vivent les individus de
l'espèce; le phénomène a alors lieu en-dehors des territoires où vit l'espèce et le processus d'agrégation nécessite
plusieurs jours, voire plusieurs semaines, l'agrégation constituée persistant pendant plusieurs jours, voire
plusieurs semaines; ce type d'agrégation de reproduction se produit à une période donnée de l'année. La base
de données internationale SCRFA38 fournit des informations sur les agrégations de poissons lors de la
reproduction. Sur les 39 espèces de l'inventaire des poissons identifiées comme connaissant les processus
d'agrégation pour la reproduction, 74 pour cent sont rattachées aux peuplements 3 et 4 (tableau 27) et les seuls
Serranidae et Lutjanidae en représentent 38 pour cent.
Les principaux cas d'agrégation de reproducteurs seront présentés.
Tableau 27. Espèces de poissons de l'inventaire établi, formant des agrégations en période de reproduction. Type:
agrégation résidente (AR); agrégation transterritoriale (AT); agrégation non confirmée (?). Les peuplements
(Pplt) sont ceux identifiés dans l'inventaire des poisons Adapté de Sadovy de Mitcheson et Colin, (2012).
Famille, nom scientifique Nom vernaculaire
Acanthuridae
Acanthurus bahianus
Acanthurus coeruleus
Balistidae
Balistes vetula
Canthidermis sufflamen
Carangidae
Carangoides bartholomaei
Caranx hippos
Caranx latus
Caranx ruber
Decapterus macarellus
Trachinotus falcatus
Labridae
Clepticus parrae
Halichoeres bivittatus
Lachnolaimus maximus
Thalassoma bifasciatum
Lutjanidae
Lutjanus analis
Lutjanus apodus
Lutjanus cyanopterus
Lutjanus griseus
Lutjanus jocu
Lutjanus synagris
Ocyurus chrysurus
Type Pplt
Chirurgien marron
Chirurgien bayolle
AR
AR
p3
p3
baliste royal
Ocean triggerfish (En)
AR
AR
p3
p4
Carangue grasse
Carangue crevalle
Carangue mayole
Carangue comade
comète maquereau
Pompaneau plume
?
?
?
?
?
?
p7
p7
p7
p7
p7
p7
Donzelle créole
Slippery dick (En)
Labre capitaine
Bluehead wrasse (En)
AR
AR
AR
AR
p3
p3
p3
p3
Sorbe
Vivaneau dent chien
Vivaneau cubéra
Carde gris
Vivaneau chien
Vivaneau gazou
Colas
AT
AT
AT
AT
AT
AT
?
p3
p3
p3
p3
p3
p3
p3
Famille, nom scientifique Nom vernaculaire
Megalopidae
Megalops atlanticus
Mugilidae
Mugil cephalus
Mullidae
Pseudupeneus maculatus
Pomacentridae
Abudefduf saxatilis
Chromis multilineata
Scaridae
Scarus iseri
Sparisoma rubripinne
Sparisoma viride
Scombridae
Acanthocybium solandri
Serranidae
Epinephelus adscensionis
Epinephelus guttatus
Epinephelus itajara
Epinephelus striatus
Mycteroperca bonaci
Mycteroperca tigris
Mycteroperca venenosa
Paranthias furcifer
Sphyraenidae
Sphyraena barracuda
37 Se dit de deux ou plusieurs organismes appartenant à la même espèce.
38 Science and Conservation of Fish Aggregations: https://www.scrfa.org/
Type Pplt
Tarpon
?
p2
Mulet cabot
?
p1
rouget barbet tacheté AT ?
p4
Castagnole
Sergent cromis
p3
p3
Perroquet rayé
Perroquet basto
Perroquet feu
AR
AR
?
p3
p3
p3
Thazard
?
p7
Grand gueule
mérou couronné
Mérou géant
mérou rayé
Badèche bonaci
Badèche tigre
Badèche de roche
Badèche créole
AT
AT
AT
AT
AT
AT
AT
?
p3
p3
p3
p3
p3
p3
p3
p3
Barracuda
?
p7
�120
Figure 89. Lieux d'agrégations de reproduction du
mérou rayé Epinephelus striatus répertoriés depuis
1884 dans les Caraïbes (cercles noirs) et zones de
résidence de l'espèce établies à partir des données de
Fishbase (rectangles gris), source: (Kobara et al.,
2013).
Figure 90. Situations d'agrégations de reproduction de
plusieurs espèces au Belize: (1) Epinephelus striatus; (2)
Mycteroperca bonaci, M. venenosa, M. tigris; (3)
Lutjanus jocu; (4) L. cyanopterus; (5) Lachnolaimus
maximus, Lactophrys trigonus, L. triqueter, source:
(Kobara et al., 2013).
Le mérou rayé, Epinephelus striatus, est la première espèce qui ait donné lieu à des observations scientifiques
sur ses importantes et spectaculaires agrégations de reproducteurs (Sadovy de Mitcheson, Heppel et Colin,
2012). L'espèce est protogyne séquentielle, chez laquelle les femelles peuvent se transformer en mâles à des
tailles assez grandes (entre 30 et 80 cm). Sa ponte n'a jamais été observée en-dehors des agrégations. Elle se
reproduit au large, les premiers cas observés aux Bahamas faisaient état de concentrations de 30 000 à 100 000
individus. Les agrégations se produisent à des périodes données, entre décembre et mars, entre une heure avant
et 20 minutes après le coucher du soleil, les sites sont des récifs situés au large. Les individus migrent vers les
lieux d'agrégation sur des distances de leurs territoires de résidence pouvant atteindre 220 km (figure 89). Les
sites d'agrégation de frai se trouvent sur les flancs de récifs au large, à la limite des accores (figure 90). Les
individus adoptent le même schéma de migration vers les lieux d'agrégation, d'une année sur l'autre. Faute de
réglementations appropriées et 50 ans de surpêche, l'espèce est considérée par l'IUCN dans un état critique.
Les stocks se maintiennent, permettant le maintien d'une pêche, uniquement dans les pays qui ont mis en place
une réglementation (îles Turques-et-Caïques, Îles Caïmanes, les Bahamas). Il a été constaté une diminution
importante des sites d'agrégation de ponte. Les mesures à prendre sont: (i) empêcher la surpêche sur les lieux
d'agrégation, la mesure la plus efficace étant la fermeture de la zone à la pêche; (ii) protéger les stades
subadultes, par l'instauration de taille minimale de capture; (iii) protéger les zones d'agrégation où la population
de mérous rayés est fragilisée en instaurant une zone refuge (no-take zone); (iv) renforcer les fermetures
saisonnières à la pêche; (v) mettre en place des stratégies d'aménagement régionales pour prendre en compte
les migrations à des fins de reproduction à moyennes échelles et transnationales; (vi) harmoniser les politiques
des pêches au niveau régional (transnational) sur l'usage de la ressource en mérous rayés (par exemple, pêche
vs tourisme écologique et subaquatique considéré comme 20 fois plus lucratif que la pêche).
Dans la zone d'étude, les agrégations de frai du mérou couronné, Epinephelus guttatus, espèce protogyne, ont
été observées à Porto Rico, aux Îles Vierges britanniques et en Jamaïque (Nemeth, 2012) (figure 91). Les
agrégations sont formées de plusieurs groupes constitués de mâles et des trois à cinq femelles de son harem.
La ponte a lieu de 1 à 2 m au-dessus d'un récif corallien proche des tombants. La fécondité des femelles de
41 cm est de 1 500 000 œufs, soit 15 fois plus élevée que celle des femelles de 31 cm (cas de femelles
primaires, Cf. 5.1.1). Les agrégations peuvent rassembler de 100 à plus de 80 000 individus. Aux Îles Vierges
britanniques, les mérous arrivent sur les lieux d'agrégation après la mi-décembre et se dispersent en fin février.
Les lieux de ponte sont situés entre 5 et 33 km des territoires de résidence.
La pêche sur agrégation du mérou couronné a causé le déclin ou l'effondrement de plusieurs stocks dans les
Caraïbes.
�121
Figure 91. Lieux d'agrégations de reproduction du
mérou couronné Epinephelus guttatus, répertoriés
depuis 1884 dans les Caraïbes (cercles noirs) et zones
de résidence de l'espèce établies à partir des données
de Fishbase (rectangles gris).
Figure 92. Lieux d'agrégations de reproduction du
vivaneau sorbe, Lutjanus analis, répertoriés depuis
1884 dans les Caraïbes (cercles noirs) et zones de
résidence de l'espèce établies à partir des données de
Fishbase (rectangles gris).
Source: (Kobara et al., 2013).
Source: (Kobara et al., 2013)
En l'absence de réglementation de la pêche sur les agrégations de reproduction, le volume des débarquements
de cette espèce a diminué de 65 pour cent à Porto Rico et de 95 pour cent aux Bermudes durant les années
1980s. Il a été observé que dans ces agrégations les mâles mordaient aux hameçons plus facilement que les
femelles ce qui a accentué le déséquilibre du sex-ratio dans la population résiduelle, accentuant l'effet négatif
des pêches sur espèces hermaphrodites séquentielles. Les mesures de réglementation par fermetures
saisonnières ont permis des améliorations des populations de mérous couronnés et parfois le retour des
phénomènes d'agrégation à la reproduction qui avaient disparu.
Les mérous géants, Epinephelus itajara, forment des agrégations de frai au-dessus de récifs coralliens. Après
une incubation de 2 jours des œufs pélagiques, les larves pélagiques sont transportées du large vers le littoral
et les zones de mangroves qui jouent le rôle de nourricerie pour une période de 35 à 80 jours (Ferreira et al.,
2012). Les juvéniles adoptent ensuite la lisière des mangroves pendant cinq à six ans avant de gagner les
habitats des adultes dans les récifs plus au large ou dans les herbiers. La taille de première maturité des mâles
est de 115,5 cm, soit des individus de cinq à six ans, celle des femelles est de 122,5 cm, soit de six ans. Les
agrégations sont constituées de 100 individus, parfois un peu plus; le lieu et la période sont constants et les
reproducteurs se retrouvent d'une année sur l'autre, à la même période, sur les mêmes lieux. La phase lunaire
semble jouer un rôle sur le déclenchement de la ponte. La période d'agrégation de ponte s'étend d'août à
décembre dans le golfe du Mexique et de juillet à août dans le nord-est des Caraïbes. Le déclin des populations
de mérous géants peut être attribué à la détérioration de leurs habitats, en particulier les mangroves, et à la
surpêche. L'espèce est classée comme vulnérable par l'IUCN. De nombreuses agrégations ont disparu. Une
interdiction de la pêche au mérou géant a permis de constater quelques signes d'amélioration de la population
dans cette zone, mais dans l'ensemble de la zone, la détérioration des mangroves ralentit les effets des
fermetures qui à elles seules ne suffisent pas à permettre une rapide amélioration de l'ensemble des populations.
Le vivaneau Sorbe, Lutjanus analis, se reproduit au cours d'importantes agrégations au large des zones de
résidence et toujours aux mêmes endroits d'une année sur l'autre, sur les pentes de récifs du large (figure 90 et
figure 92). Les agrégations durent plusieurs semaines, au cours de plusieurs mois. Elles ont été signalées se
dérouler entre avril et septembre, à la pleine lune où au 3ème quartier. La part des captures réalisées sur les
agrégations avait été estimée à 50 pour cent des captures annuelles totales (Sadovy de Mitcheson, Colin et
Sakaue, 2012). Les populations de cette espèce ont fait l'objet de peu de mesures de réglementation et quand
celles-ci existaient, elles n'étaient pas respectées. Néanmoins à Cuba et en Floride, il a pu être constaté un
report de l'effort de pêche en saison de reproduction vers les périodes d'absence de reproduction.
�122
Dans une zone mise en réserve (no-take), une augmentation du nombre d'individus participant aux agrégations
de ponte a été constatée. L'espèce est évaluée comme quasi menacée par l'IUCN.
Le vivaneau cubéra, Lutjanus cyanopterus, le plus grand des vivaneaux d'Atlantique-Centre-Ouest, se
reproduit en agrégations de plusieurs centaines, parfois plusieurs milliers d'individus, toujours dans les mêmes
lieux, sur les pentes de récifs du large ou au-dessus de zones sableuses en bordure du plateau et toujours aux
mêmes périodes, entre avril et juillet, les agrégations se forment autour de la pleine lune et la ponte a lieu au
coucher du soleil. Le vivaneau cubéra se reproduit dans les mêmes endroits et aux mêmes périodes que le
vivaneau chien, Lutjanus jocu, et le carde gris, L. griseus. Le requin baleine, Rhincodon typus, est connu pour
consommer les produits de la ponte de ces vivaneaux. Dans la région, à l'exception du Belize qui a mis en
place des zones protégées, réservées à l'écotourisme pour l'observation des requins- baleines. Le vivaneau
cubéra ne fait pas l'objet de réglementations particulières. L'espèce est évaluée comme vulnérable par l'IUCN.
Chez la girelle à tête bleue, Thalassoma bifasciatum, un Labridae, les œufs sont pélagiques et le stade larvaire
qui dure une cinquantaine de jours est pélagique, permettant une large diffusion des individus. Les lieux
d'accouplement et de ponte sont proches du lieu de résidence et sont atteints en quelques minutes. Les courants
ascendants et descendants sur les bords du récif sont utilisés par les femelles notamment pour aller libérer les
œufs pélagiques à la surface. Il semble que les lieux d'accouplement soient choisis par les femelles et que
celles-ci fassent l'objet d'un apprentissage social car il a été observé que ces lieux d'accouplement se
transmettaient sur plusieurs générations (Warner, 2012).
Chez les poissons perroquets, Scaridae, comme le perroquet rayé, Scarus iseri, les agrégations ont lieu en fin
d'après-midi au sommet des récifs et la reproduction a lieu pendant environ une heure, débutant une heure et
demie avant le coucher du soleil. Les mêmes sites d'agrégation de frai ont pu être observés à plusieurs années
d'intervalles (Colin, 2012a). Dans la plupart des cas les perroquets pondent à marée haute. Ces espèces ne
présentent pas d'intérêt commercial important, sinon pour le commerce de poissons d'ornement et n'ont pas
donné lieu à la mise en place de réglementations particulières; pourtant leur rôle dans l'équilibre des récifs est
important, car ces herbivores contribuent à y limiter la prolifération d'algues.
Les Carangidae vivent en bancs. Il est le plus souvent difficile de parler d'agrégations de reproduction selon la
définition admise, les rassemblements en période de reproduction étant de tailles comparables à ceux des bancs
en-dehors de la période de reproduction. Des agrégations de ponte ont été mentionnées chez le pompaneau
plume, Trachinotus falcatus, à Belize en avril et août sous forme d'un rassemblement de 300 individus
constitué de sous-groupes de cinq à neuf poissons ainsi que chez la carangue grasse, Carangoides
bartholomaei, observé une fois en avril à Belize et chez la carangue mayole, Caranx latus, en avril, juillet et
août (Colin, 2012b).
Des agrégations de ponte ont été observées à Porto Rico chez les poissons chirurgiens, Acanthuridae: le
chirurgien marron, Acanthurus bahianus, et le chirurgien bayolle, A. coeruleus. Sur 12 années consécutives,
les sites étaient exactement identiques. Les agrégations se produisent aux périodes les plus froides de l'année,
de décembre à mars et il a pu être observé des agrégations de 40 jours, hors saison, entre avril et novembre
(Colin et Clavijo, 2012). Pendant la saison de reproduction, l'agrégation et la ponte se produisaient à toutes les
phases lunaires. Le chirurgien bayolle a une périodicité d'agrégation de reproduction en hiver austral
clairement calée sur les phases lunaires, entre la pleine lune et la nouvelle lune. Les agrégations peuvent
rassembler jusqu'à 20 000 individus sur une zone de 500 à 600 mètres de rayon. La localisation des sites de
reproduction le long des bords des récifs, devrait être possible en organisant les recherches en fin d'après-midi
en février, la pleine période de reproduction. Comme les Labridae, les Acanthuridae sont des herbivores et
participent au bon état des récifs en les débarrassant des algues.
La gestion des espèces formant des agrégations de frai passe par la localisation des lieux où elles se forment,
souvent stables d'une année sur l'autre, afin de concevoir des mesures de protection comme des fermetures
saisonnières ou des réserves localisées.
�123
5.2
Les risques de ciguatera
La ciguatera est une intoxication alimentaire, ichtyosarcotoxisme, provoquée par l’ingestion de chair de
poisson contaminée par un dinoflagellé benthique, Gambierdiscus toxicus, qui se développe sur les récifs
coralliens morts. Ce dinoflagellé synthétise des ciguatoxines, il se développe au milieu d’autres algues et sera
ingéré par des poissons brouteurs qui accumulent alors les toxines. L'accumulation des toxines se produit le
long de la chaîne trophique, contaminant les maillons successifs qui acquièrent leur toxicité sans affecter les
qualités organoleptiques des poissons contaminés, rendant impossible leur détection. Chez les espèces
prédatrices , des niveaux trophiques supérieurs et connues pour entrainer la ciguatera, les individus les plus
grands présenteront les risques les plus importants.
Le développement de la ciguatera est étroitement lié à l'état des récifs coralliens, les algues toxiques se
développant sur des coraux morts ou en voie d'extinction. Le réchauffement et l'acidification des eaux des
océans, les tempêtes et les cyclones sont autant de facteurs contribuant à la mortalité des coraux et donc à la
propagation de la ciguatera (Gingold, Strickland et Hess, 2014).
La ciguatera provoque des démangeaisons, d'où son autre appellation de «gratte». Les symptômes sont le plus
souvent digestifs et apparaissent entre 30 minutes et 48 heures après le repas, plus rarement au-delà de 24
heures. Ce sont des douleurs abdominales, des nausées, des vomissements et des diarrhées, un prurit de la
paume des mains et de la plante des pieds qui peut parfois être généralisé. Les autres symptômes possibles sont
des troubles de la coordination et de l'équilibre, hallucinations, céphalées, vertiges, engourdissements,
fourmillements surtout au niveau des extrémités et du visage. Le patient peut se plaindre de sensations de
brûlure ou de décharges électriques au contact d'objets froids; il peut présenter une bradycardie, une
hypotension ainsi que des douleurs musculaires, articulaires et une fièvre. Les symptômes gastro-intestinaux
disparaissent généralement entre un et quatre jours (Hossen et al., 2013). Cette pathologie peut être grave mais
elle est rarement mortelle (Bagnis, 1981).
Sur le plan épidémiologique, le «Center for Disease Control and Prevention», estime que le nombre de cas de
ciguatera annuel dans le monde se situe entre 10 000 et 50 000 mais en prenant en compte les cas non déclarés,
la fourchette de 50 000 à 500 000 est avancée (Friedman et al., 2017; Hossen et al., 2013). Il existe plusieurs
observatoires régionaux dédiés à la ciguatera. Les cas sont signalés également sur les réseaux de surveillance
sanitaire: dans les Caraïbes la CARPHA (Caribbean Public Health Agency) et aux Antilles françaises, les
Agences régionales de santé (ARS). Pour prévenir les intoxications, des campagnes de sensibilisation sont
organisées par les structures de santé comme en Guadeloupe par voie d'affiches (Cf annexe III).
Les études épidémiologiques de la ciguatera en Haïti sont rares. En 1978, Bagnis a réalisé une enquête dans
plusieurs îles des Caraïbes: Cuba, la Jamaïque, Haïti, Porto Rico, les Îles Vierges britanniques et les Antilles
françaises (Bagnis, 1981). L'auteur a dressé une liste des principales espèces ayant été signalées comme
responsables de cas de ciguatera.
Plus tard, le cas de six soldats US en poste en Haïti, victimes de ciguatera qui a pu être imputée à la sériole
couronnée, Seriola dumerili, a fait l'objet d'une étude approfondie (Poli et al., 1997; Reverte et al., 2014).
5.2.1
Récapitulatif sur les espèces à ciguatera signalées en Haïti:
La base de données Fishbase fait mention de la ciguatera en s'appuyant sur les cas déclarés. Pour une espèce
sont indiqués le lieu (pays), la fréquence et les références bibliographiques correspondantes. Les fréquences
sont: fréquente, occasionnelle, rare et non-établie (cas douteux).
Les espèces ciguatogènes de l'inventaire établi plus haut se retrouvent en très grand nombre dans le
peuplement : trois des espèces inféodées aux récifs coralliens et ensuite dans le groupe sept des pélagiques
néritiques qui compte des espèces prédatrices des poissons coralliens (figure 93). Six familles rassemblent plus
de 50 pour cent des espèces ciguatogènes: les Carangidae, les Lutjanidae, les Serranidae, les Scaridae, les
Haemulidae et les Monacanthidae (figure 94).
La liste des espèces signalées comme présentant des risques de ciguatera issue de l'inventaire établi dans cette
étude et leurs niveaux de risque tels qu'ils sont renseignés dans Fishbase a été comparée à la liste établie par
Bagnis à la suite de son enquête en 1978 dans le cas d'Haïti (tableau 28).
�124
Figure 93. Nombre d'espèces par fréquence de signalement de cas de ciguatera selon les peuplements
Figure 94. Nombre d'espèces par fréquence de signalement de cas de ciguatera selon les familles de poissons
�125
Tableau 28. Inventaire des espèces ciguatogènes signalées par Fishbase et par Bagnis en 1978 (Bagnis, 1981). Risques de ciguatera dans Fishbase: douteux (o), rare (+), occasionnel (++),
fréquent (+++); En Haïti en 1978: Espèce absente (-), sans cas signalé (.), toxicité exceptionnelle, limitée dans le temps (+), toxicité locale d'individus de grande taille (++), toxicité partout
des individus de grande taille (+++).
Famille et espèce
ACANTHURIDAE
Acanthurus bahianus
Acanthurus chirurgus
Acanthurus coeruleus
ALBULIDAE
Albula vulpes
ANTENNARIIDAE
Histrio histrio
BALISTIDAE
Balistes capriscus
Balistes vetula
Canthidermis maculata
BELONIDAE
Tylosurus crocodilus
crocodilus
CARANGIDAE
Alectis ciliaris
Caranx bartholomaei
Caranx crysos
Caranx hippos
Caranx latus
Caranx lugubris
Caranx ruber
Decapterus macarellus
Elagatis bipinnulata
Selar crumenophthalmus
Selene setapinnis
Selene vomer
Seriola dumerili
Seriola rivoliana
Trachinotus goodei
Fishbase
+
+
+
Haïti 1978
o
-
o
-
o
+++
o
.
.
-
++
.
Famille et espèce
MALACANTHIDAE
Malacanthus plumieri
MEGALOPIDAE
Megalops atlanticus
MONACANTHIDAE
Aluterus monoceros
Aluterus schoepfii
Aluterus scriptus
Cantherhines pullus
Monacanthus ciliatus
Stephanolepis hispidus
Stephanolepis setifer
MULLIDAE
Mulloidichthys martinicus
o
+++
++
+++
+++
+++
+++
o
o
o
o
o
o
+++
o
.
+++
++
+++
++
.
++
++
-
Pseudupeneus maculatus
MURAENIDAE
Gymnothorax moringa
OGCOCEPHALIDAE
Ogcocephalus vespertilio
OPHICHTHIDAE
Ophichthus ophis
OSTRACIIDAE
Acanthostracion polygonius
Acanthostracion quadricornis
Lactophrys bicaudalis
Lactophrys trigonus
Lactophrys triqueter
POMACANTHIDAE
Holacanthus ciliaris
Holacanthus tricolor
+
.
.
Fishbase
Haïti 1978
o
-
o
-
o
o
+
+
+
o
o
-
+
.
+
-
+++
++
o
-
o
-
++
++
++
o
++
-
+
+
-
�126
Famille et espèce
CHAETODONTIDAE
Chaetodon capistratus
Chaetodon sedentarius
CLUPEIDAE
Opisthonema oglinum
CORYPHAENIDAE
Coryphaena hippurus
DASYATIDAE
Hypanus americanus
DIODONTIDAE
Diodon holocanthus
EPHIPPIDAE
Chaetodipterus faber
GERREIDAE
Gerres cinereus
HAEMULIDAE
Anisotremus surinamensis
Anisotremus virginicus
Haemulon album
Haemulon aurolineatum
Haemulon bonariense
Haemulon flavolineatum
Haemulon melanurum
Haemulon plumieri
Haemulon sciurus
HEMIRAMPHIDAE
Hemiramphus brasiliensis
Hyporhamphus
unifasciatus
HOLOCENTRIDAE
Holocentrus adscensionis
Holocentrus rufus
Sargocentron coruscum
Fishbase
Haïti 1978
Famille et espèce
Pomacanthus arcuatus
Pomacanthus paru
PRIACANTHIDAE
Heteropriacanthus cruentatus
Priacanthus arenatus
SCARIDAE
Scarus coeruleus
Scarus guacamaia
Scarus iseri
o
+
-
o
-
o
-
+
-
++
-
+
-
o
-
o
++
++
++
++
++
++
++
++
-
o
0
-
Scarus taeniopterus
Scarus vetula
Sparisoma aurofrenatum
Sparisoma chrysopterum
Sparisoma radians
Sparisoma rubripinne
Sparisoma viride
SCIAENIDAE
Equetus lanceolatus
SCOMBRIDAE
Acanthocybium solandri
Euthynnus alletteratus
Katsuwonus pelamis
Sarda sarda
Scomberomorus cavalla
Scomberomorus regalis
SCORPAENIDAE
Scorpaena plumieri
SERRANIDAE
++
++
+
-
Alphestes afer
Cephalopholis cruentata
Cephalopholis fulva
Epinephelus adscensionis
Fishbase
+
o
Haïti 1978
-
o
o
-
+
o
+
.
+
.
+
+
+
+
+
+
+
.
o
-
o
++
o
++
+++
+++
+
++
++
o
-
+
o
+
+++
+
.
.
�127
Famille et espèce
LABRIDAE
Bodianus rufus
Halichoeres radiatus
Lachnolaimus maximus
LUTJANIDAE
Apsilus dentatus
Lutjanus analis
Lutjanus apodus
Lutjanus buccanella
Lutjanus cyanopterus
Lutjanus griseus
Lutjanus jocu
Lutjanus mahogoni
Lutjanus purpureus
Lutjanus synagris
Lutjanus vivanus
Ocyurus chrysurus
Pristipomoides
aquilonaris
Fishbase
Haïti 1978
+++
+
+++
.
++
+
+++
+++
o
+++
+++
+++
o
+
+++
+
+
.
++
++
.
++
.
.
-
Famille et espèce
Epinephelus guttatus
Epinephelus morio
Epinephelus striatus
Hypoplectrus puella
Mycteroperca bonaci
Mycteroperca tigris
Mycteroperca venenosa
Rypticus saponaceus
SPARIDAE
Calamus bajonado
Calamus calamus
Calamus penna
Calamus pennatula
SPHYRAENIDAE
Sphyraena barracuda
Sphyraena picudilla
Fishbase
++
+++
+
+
+++
o
+++
o
Haïti 1978
+
.
++
++
++
-
o
++
+
+
-
+++
o
+++
.
�128
5.3
Le commerce des espèces marines ornementales
Le commerce international des espèces aquatiques d'ornement est mal connu, peu encadré, peu régulé. Les
travaux sur ce sujet sont rares alors que ce commerce connaît une expansion depuis ces 30 dernières années et
que le nombre d'aquariums particuliers et publics ne cesse d'augmenter. L'aquariophilie se scinde en deux
mondes : celui de l'eau douce et celui de l'eau de mer. Chez ce dernier, le nombre d'aquariums privés et publics
était évalué à 2 millions en 2012 (Rhyne et al., 2012). Le nombre de poissons d'ornement échangés dans le
monde était évalué à plus de 2 milliards dans les années 2000s (Monticini, 2010). Dans les années 1990s les
poissons de mer représentaient 20 pour cent des poissons d'ornement échangés (Dufour, 1998). Les plus grands
importateurs sont les États-Unis, puis la Grande Bretagne, l'Allemagne, la France puis l'Italie; la Chine et le
Japon sont également de gros importateurs. Des études récentes du marché de l'aquariophilie d'eau de mer
montrent que la majorité des espèces mises sur le marché proviennent des écosystèmes de récifs coralliens
(Rhyne et al., 2012, 2017; Monticini, 2010).
Le commerce des espèces ornementales concerne les poissons de récifs coralliens et d'herbiers (Cf. §3.2.1.3 et
§3.2.1.4), mais également les invertébrés: crustacés, gastéropodes, oursins, étoiles de mer, concombres de mer
et les coraux vivants. Cette activité n'est donc pas sans conséquences sur l'équilibre des écosystèmes sujets à
cette extraction.
Les travaux récents se sont focalisés sur le plus gros marché mondial, celui des États-Unis d’Amérique. Entre
mai 2004 et mai 2005 selon les déclarations douanières, 11 003 181 poissons de mer ont été importés aux
États-Unis d’Amérique et parmi les 15 familles contribuant le plus à ce commerce (figure 95), mise à part la
famille des Pseudochromidae, toutes les autres sont présentes en Haïti et sont rattachées aux peuplements des
récifs coralliens et des herbiers.
L'étude poursuivie après 2005 a permis de mieux identifier les circuits d'approvisionnement du marché des
espèces ornementales marines aux États-Unis d’Amérique (Rhyne et al., 2017). Il en ressort que le principal
pays d'exportation de poissons de récifs sur les États-Unis d’Amérique en provenance d'Amérique centrale,
d'Amérique du Sud et des Caraïbes39 est Haïti (figure 96) et il en est de même pour les invertébrés sur la période
2008- 2011 (figure 97).
Figure 95. Distribution du nombre d'individus importés aux États-Unis d’Amérique en 2004-2005, par famille des
principales espèces de poissons marins.
Source: Rhyne et al. (2012).
39 Voir le site sur les flux d'importations et exportations du commerce des organismes marins: https://www.aquariumtradedata.org/
�129
Les études sur la pêche en Haïti sont peu prolixes sur la filière d'exportation d'espèces ornementales, cependant
l'une d'elle mentionne qu'un exportateur de poissons d'aquariums produirait 1 500 000 unités par an (Damais
et al., 2007), une autre relève que la filière exportatrice d'espèces ornementales est marginale, considérée
comme un sous-secteur de la filière de la pêche et peu réglementée; sept sociétés seraient impliquées dans cette
activité et localisées à Fort-Liberté, Cap-Haïtien et Dame Marie ; elles produiraient 800 000 unités par an et
les auteurs préconisaient une gestion de cette pêche de poissons d'ornement (Mateo et Haughton, 2003). Breuil
citant des sources du MARNDR situe l'émergence de la filière de poissons ornementaux en 1995-96 et avance
le chiffre de 817 000 individus exportés en 1998.
Ces ordres de grandeurs de production sont en cohérence avec les chiffres avancés dans les études du marché
américain et en provenance d'Haïti, compte tenu d'une forte probabilité de sous déclaration d'importation. Ces
chiffres de plusieurs centaines de milliers d'individus capturés pour ce marché peuvent apparaître importants
et doivent être remis en perspective: la taille des individus destinés au marché des espèces ornementales est
petite (entre 1 et 5 cm pour la catégorie S, entre 2,25 et 10 cm pour la catégorie M et entre 5 et 14 cm pour la
catégorie L selon les espèces40). En se basant sur 74 espèces signalées pour avoir un intérêt commercial sur ce
marché et appartenant à 14 des familles fournissant le plus d'espèces et d'individus sur le marché international,
le poids des exportations d'Haïti serait compris entre 87 et 164 kg annuel entre 2000 et 2011 dans l'hypothèse
basse où tous les poissons auraient appartenu à la catégorie S et entre 2 t et 4 t dans l'hypothèse haute de
poissons uniquement de catégorie L. S'agissant du nombre d'individus, il peut être comparé aux nombres de
poissons recrutés; par exemple en Guyane française, avec seulement 370 km de côte, le recrutement annuel
dans la pêcherie de vivaneau rouge (Lutjanus purpureus) s'établissait entre 106 et 4.106 individus entre 1986
et 2006, soit quatre à 16 fois plus que le nombre d'individus exportés en 2008 par Haïti qui était le plus élevé,
sachant que dans l'exemple de la pêcherie guyanaise, le recrutement ne concerne qu'une espèce et des individus
plus grands (20 cm) donc plus âgés (Vendeville, Rosé et Viera, 2008).
Mais tous les individus capturés ne survivent pas jusqu'à leur arrivée dans les aquariums ni au lieu de
destination à l'export, les estimations de la mortalité sont très variables, de 2 pour cent à 73 pour cent (Stevens
et al., 2017); pour une mortalité totale post capture de 30 pour cent, elle se décomposerait en 15 pour cent de
mortalité immédiatement après capture, 10 pour cent lors des différentes étapes du transport et 5 pour cent sur
le lieu de stockage. De bonnes pratiques permettraient de réduire cette mortalité à 5 pour cent (Monticini,
2010). En première analyse, le prélèvement à destination du marché des espèces ornementales apparaît comme
mineur en comparaison de celui de la pêche traditionnelle. Toutefois, l'absence d'évaluations de l'état des
populations de la plupart des espèces ciblées pour ce marché ne permet pas d'être aussi catégorique sur son
faible impact, les populations de certaines de ces espèces sont évaluées comme menacées à divers degrés, par
exemple celles de mérou rayé, Epinephelus striatus, et de mérou de Varsovie, Hyporthodus nigritus, sont
évaluées en état critique et celles de plusieurs autres espèces menacées à divers degrés et non protégées par la
CITES (Cf § 7); l'effet sur ces espèces est difficilement appréhendables.
Figure 96. Nombre de poissons marins exportés sur le
marché aquariophile des États-Unis d’Amérique à
partir d'Amérique centrale, d'Amérique du Sud et des
Caraïbes entre 2000 et 2011
Figure 97. Nombre d'invertébrés marins exportés sur
le marché aquariophile des États-Unis d’Amérique à
partir d'Amérique centrale, d'Amérique du Sud et des
Caraïbes entre 2008 et 2011
40 Sur les sites de vente aux particuliers, les produits sont classés selon les classe XS (very small), S (small), M (medium), L (Large)
et XL (very large).
�130
De plus, 60 pour cent des espèces signalées d'intérêt pour le marché aquariophile, sont signalées également
d'intérêt pour la consommation humaine; pour celles-ci, les captures destinées au marché d'espèces
ornementales s'ajoutent aux captures de la pêche traditionnelle. Par ailleurs, cette activité peut avoir des effets
négatifs: la dégradation des coraux durs par prélèvements; l'accroissement des risques d'introduction d'espèces
invasive (par exemple, Pterois volitans dans les Caraïbes) et de risques sanitaires, notamment par l'apport
d'agents pathogènes dans l'eau des poissons (par exemple, Vibrio cholerae, Salmonella spp.) (Hignette, 2003).
6
Les habitats essentiels des ressources marines
6.1
Les zones fonctionnelles d'intérêt halieutique
Les organismes marins occupent plusieurs habitats successifs au cours de leur cycle vital, comme cela l'a été
mentionné à plusieurs reprises chez les poissons à partir de cas spécifiques (Cf. § 3.2.1 et § 5.1.2). Certains de
ces différents habitats sont apparus essentiels au renouvellement des populations aquatiques, conduisant les
scientifiques à formuler le concept de «zones fonctionnelles halieutiques»
pour les espèces d'intérêt halieutique (Delage et Le Pape, 2016; Regimbart, Guitton et Le Pape; 2018). Une
zone fonctionnelle halieutique est définie comme un espace en mer (jusqu'à la limite de la dessalure des eaux)
au sein duquel se déroule une phase du cycle de vie d'une ressource halieutique; les phases du cycle vital étant
la naissance (ponte), la vie larvaire, les phases de croissance, d'alimentation et de maturation (phase juvénile
avant maturité et phase adulte), le processus de reproduction et les migrations entre ces stades.
Sous l'impulsion de l'Agence Française pour la Biodiversité, un inventaire des zones fonctionnelles
halieutiques a été entrepris sur le territoire français. L'inventaire réalisé aux Antilles françaises (Astrou et al.,
2018) réalisé dans des conditions très différentes de celles de la France continentale, est par de nombreux
aspects transférable à la situation d'Haïti et l'exposé sur ces zones fonctionnelles halieutiques et leurs enjeux
s'appuiera sur cette étude.
Ces zones fonctionnelles se déclinent en:
-
Zone de ponte (frayère): de la fécondation à l'éclosion;
-
Zone de dispersion larvaire: de l'éclosion à la dernière métamorphose;
-
Zone de nourricerie; de la dernière métamorphose à la première maturation;
-
Zone de reproduction (frayère): de la maturation à l'émission de gamètes;
-
Zone(s) de croissance adulte: de l'émission de gamètes à la maturation suivante;
- Zone de migration: trajets entre deux zones fonctionnelles.
▪ Une frayère est une zone où les individus reproducteurs se regroupent pour émettre leurs gamètes. La
zone de ponte est la zone où sont émis les ovocytes fécondés. Du fait de l’étroite relation entre ces deux
types de zones pour une très forte proportion d’espèces d’intérêt halieutique, celles-ci sont regroupées
sous le terme de frayère comprenant la zone sur laquelle a lieu l’action de reproduction et celle où les
embryons sont émis. Cette zone doit réunir des conditions physiques (granulométrie du fond, vitesse de
courant, température) et chimiques, particulièrement la salinité; elle est généralement associée à des
conditions de fortes productivités (estuaires, upwellings).
▪ Une zone de nourricerie se définit comme une aire géographique au sein de laquelle les juvéniles d’une
même espèce se regroupent afin d’optimiser leur croissance jusqu’à la première maturation sexuelle.
Cette zone est sélectionnée par les organismes en fonction de leurs besoins: disponibilité en nourriture,
présence de refuge, conditions physico-chimiques ou encore compétition avec d’autres espèces pour les
ressources (Delage et Le Pape, 2016). Ces zones réunissent des conditions physiques et chimiques
adaptées aux besoins physiologiques de l'espèce; des ressources trophiques abondantes et adaptées à
l'espèce; une protection contre les prédateurs et enfin une connectivité inter-habitats permettant une
colonisation par les larves et une migration vers les territoires des adultes.
▪ Une zone ou voie de migration est pour une espèce non sédentaire, la zone où s'effectue le transport entre
les différentes zones fonctionnelles occupées aux différents stades de vie; une ou plusieurs phases de
migration doivent avoir lieu: soit par dérive passive pour les œufs et les larves; soit par nage active, pour
gagner les territoires des adultes à partir des nourriceries ou pour se reproduire (Cf. § 5.1.2), ce sont là des
�131
migrations ontogéniques, ou enfin pour s'alimenter (par exemple, des espèces des récifs coralliens
s'alimentant sur des herbiers, § 3.2.1.3 et § 3.2.1.4).
Dans les Caraïbes, les juvéniles de poissons s’établissent préférentiellement dans les petits fonds (0-5 m).
Durant cette phase de recrutement, les juvéniles arrivent en masse et sont susceptibles de se sédentariser sur
différents types d’habitats tels que les mangroves, les herbiers de Magnoliophytes marins, les communautés
coralliennes et les fonds durs peu profonds, artificiels ou naturels ainsi que les fonds sédimentaires. Ces milieux
et leurs connectivités avec les autres zones fonctionnelles halieutiques seront donc essentiels (figure 98).
6.1.1
Les frayères
Les processus de reproduction accompagnés d'agrégation ont été évoqués précédemment, en distinguant les
agrégations transterritoriales et les agrégations résidentes (§ 5.1.2). Un inventaire des espèces donnant lieu à
ces agrégations avait pu être présenté (tableau 37). Un inventaire d'agrégations transterritoriales des sites
connus et dans la zone d'étude ou à proximité peut-être dressé en se référant à plusieurs études (Nemeth, 2009;
Kobara et al., 2013) et à la base de données internationale sur la conservation des agrégations de poissons
(SCRFA, 2020)41 (tableau 29). L'inventaire des espèces de poissons utilisant des frayères résidentes établi aux
Antilles française (Astrou et al., 2018) est transposable en Haïti où ces espèces sont communes (tableau 30).
Figure 98. Relations entre différents habitats de nourriceries et leur connectivité pour les espèces effectuant des
migrations ontogéniques.
Source: Astrou et al. (2018).
41 https://www.scrfa.org/database/index.php
�132
Tableau 29. Liste des espèces sujettes à des agrégations de reproduction transterritoriales dans la zone d'étude.
Les localisations sont celles dont l'existence a été scientifiquement confirmée. Les phases lunaires lorsqu'elles sont
renseignées sont la pleine lune (PL), le 1er quartier (Q1), le 3ème quartier (Q3), la nouvelle lune (NL). La distance
parcourue sépare le lieu de résidence de l'espèce de son lieu de reproduction.
Famille
Espèce
Localisation
Serranidae
Epinephelus striatus
Bermudes
Belize
Îles Caïmanes
Mexique
St- Thomas (Îles Vierges
britanniques)
Bermudes
Porto Rico
St-Thomas (Îles Vierges
britanniques)
Ste-Croix (Îles Vierges
britanniques)
Mexique
Antilles néerlandaises
E. guttatus
E. adscensionis
E. itajara
E. morio
Mycteroperca bonaci
M. venenosa
M. tigris
Lutjanidae
Carangidae
M. interstitialis
Lutjanus analis
L. jocu
L. synagris
L. cyanopterus
L. campechanus
L. apodus
Ocyurus chrysurus
Carangoides
bartholomaei
Caranx ruber
C. lugubris
C. latus
Ephippidae
Scombridae
Labridae
Haemulidae
C. hippos
Seriola dumerili
Trachinotus falcatus
Decapterus macarellus
Chaetodipterus faber
Scomberomorus cavalla
Lachnolaimus maximus
Haemulon album
Bermudes
Belize
Bahamas
Belize
Porto Rico
St- Thomas (Îles Vierges
britanniques)
Îles Caïmanes
Porto Rico
St-Thomas (Îles Vierges
britanniques)
Îles Turques-et-Caïques
Période
Phase lunaire
Déc-jan PL ou Q1
Jan-fév PL ou Q3
Déc à fev PL
Jan à mars PL Q3
Effectif des
agrégations (n)
150 000
3 000
5 200
1 000
2 000
Distance
parcourue (km)
100- 250
20
Mai à août PL
Jan-fév PL
Déc-à fév- PL
3 000
80 000
5- 20
18
6- 32
Déc à fév- PL
3 000
2- 16
Fév-mars PL
Déc à fév PL
10 000
Mai à août PL
Déc-à mars Q3
Jan Q3
Jan- fév- marsavr Q1
Déc à mai Q3
Fév à mai PL Q3
Jan- fév Q1
Jan à avr PL
PL
140
900
900
250
> 5 000
100- 200
Déc à mars PL
Bahamas
Belize
Cuba
Ste- Croix (Îles Vierges
britanniques)
Belize
Cuba
Belize
Avril
Mars à juin PL
Avr à août PL
Mars à mai
Belize
Belize
Fév- mars PL
Fév à oct
Îles Caïmanes
Belize
Îles Caïmanes
Îles Caïmanes
Belize
Belize
Belize
Belize
Îles Caïmanes
Jan- fév
Fév à oct Q3
Jan- fév
Jan- fév PL
Fév à oct PL Q3
Fév à oct PL Q3
Fév à oct PL
Fév à oct Q3
Jan- fév
Belize
Belize
Avr- mai PL Q3
Fév à juin PL
Avr à juin PL Q3
Avril à sept Q1 PL
Mars à oct PL Q3
1 000
10 000
500
> 12
�133
Famille
Espèce
Localisation
Balistidae
Canthidermis sufflamen
Xanthichthys ringens
Balistes vetula
Calamus bajonado
Lactophrys trigonus
Lactophrys triqueter
Belize
Belize
Période
Phase lunaire
Avr à juin PL Q3
Mars à août PL Q3
Belize
Belize
Belize
Déc- jan PL Q3
Fév- mars PL Q3
Jan-à mars PL Q3
Sparidae
Ostraciidae
Effectif des
agrégations (n)
Distance
parcourue (km)
Tableau 30. Espèces de poissons utilisant les frayères résidentes, caractéristiques, localisation et effectifs des
agrégations de ponte (Nemeth, 2009)
Familles
Espèce
Acanthuridae
Acanthurus bahianus
Carangidae
Gerreidae
Labridae
Scaridae
Habitat d'agrégation de
ponte
Localisation
Récif frangeant côtier ou de Porto Rico
milieu de plateau, pente
externe de récif ou bordure
de plateau
A. coeruleus
Récif frangeant côtier ou de Porto Rico
milieu de plateau, pente
Belize
externe de récif ou bordure Bahamas
de plateau
Carangoides
Pente externe de récif ou
Belize
bartholomaei
bordure de plateau
Caranx latus
Pente externe de récif ou
Îles Caïmanes
bordure de plateau
C. lugubris
Pente externe de récif ou
Îles Caïmanes
bordure de plateau
C. ruber
Pente externe de récif ou
Îles Caïmanes
bordure de plateau
Decapterus macarellus Pente externe de récif ou
Îles Caïmanes
bordure de plateau
Trachinotus falcatus
Pente externe de récif ou
Belize
bordure de plateau
Gerres cinereus
Embouchure de chenal ou
Îles Turques-etchenal de récif frangeant
Caïques
Clepticus parrae
Pente externe de récif ou
Porto Rico
bordure de plateau
Thalassoma bifasciatum Pente récifale de lagon peu
Panama
profond ou arrière récif, pâté Îles Vierges
corallien ou épave, sommet britanniques, Étatsdes récifs frangeant ou récif Unis d’Amérique
exposé du large
Bahamas
Scarus iseri
Récif frangeant côtier ou de Porto Rico
milieu de plateau, pente
Jamaïque
externe de récif ou bordure
de plateau
Sparisoma rubripinne
Fond sableux, récif frangeant St John (Îles Vierges
côtier ou de milieu de plateau britanniques, ÉtatsUnis d’Amérique)
St Thomas (Îles
Vierges
britanniques, ÉtatsUnis d’Amérique)
Bermudes
Effectif agrégé Distance du site de
(n)
résidence (km=
20 000
0,9 – 1,0
500
100 000
≈300
200-400
80-100
100
200
100
< 1,5
�134
6.1.2
Les nourriceries
Dans les Caraïbes, les nourriceries se partagent entre trois types de milieux: Les herbiers, les mangroves et les
récifs coralliens. L'étude réalisée aux Antilles françaises recouvre des espèces communes avec Haïti et se réfère
aux mêmes types de milieu. Les herbiers proches des mangroves seront distingués de ceux proches des récifs.
Les bordures de mangroves, sous les influences des eaux continentales au niveau des estuaires ou sous
l'influence directe des eaux océaniques, constituent des milieux particuliers où les conditions
physicochimiques et hydrologiques sont très différentes des mangroves proprement dites. Selon les espèces,
les juvéniles se distribueront dans l'un ou plusieurs de ces cinq types d'habitats (tableau 31).
Tableau 31. Distribution entre cinq habitats de nourriceries d'espèces d'intérêt halieutique recensées aux Antilles
françaises et présentes en Haïti (Astrou et al., 2018).
Famille
Nom scientifique
Acanthuridae
Acanthurus bahianus
Acanthurus chirurgus
Acanthurus coeruleus
Platybelone argalus
argalus
Strongylura timucu
Tylosurus crocodilus
crocodilus
Caranx latus
Caranx ruber
Chloroscombrus chrysurus
Oligoplites saurus
Selene vomer
Trachinotus falcatus
Centropomus undecimalis
Harengula clupeola
Harengula humeralis
Opisthonema oglinum
Conger triporiceps
Chaetodipterus faber
Gerres cinereus
Haemulon aurolineatum
Haemulon bonariense
Haemulon chrysargyreum
Haemulon flavolineatum
Haemulon parra
Haemulon plumierii
Haemulon sciurus
Hemiramphus balao
Hemiramphus brasiliensis
Hyporhamphus
unifasciatus
Holocentrus adscensionis
Holocentrus rufus
Myripristis jacobus
Bodianus rufus
Clepticus parrae
Lachnolaimus maximus
Lutjanus analis
Lutjanus apodus
Lutjanus griseus
Lutjanus jocu
Lutjanus mahogoni
Belonidae
Carangidae
Centropomidae
Clupeidae
Congridae
Ephippidae
Gerreidae
Haemulidae
Hemiramphidae
Holocentridae
Labridae
Lutjanidae
Herbiers
proches de
mangroves
Herbiers
proches de
récifs
mangroves
Bordures de Récifs
mangroves coralliens
�135
Famille
Monacanthidae
Mugilidae
Mullidae
Muraenidae
Ostraciidae
Pomacanthidae
Pomacentridae
Priacanthidae
Scaridae
Scombridae
Scorpaenidae
Serranidae
Sparidae
Sphyraenidae
Synodontidae
Tetraodontidae
Triglidae
Nom scientifique
Lutjanus synagris
Ocyurus chrysurus
Rhomboplites aurorubens
Cantherhines macrocerus
Cantherhines pullus
Mugil curema
Mulloidichthys martinicus
Pseudupeneus maculatus
Gymnothorax funebris
Gymnothorax miliaris
Gymnothorax moringa
Gymnothorax vicinus
Acanthostracion
polygonius
Acanthostracion
quadricornis
Lactophrys trigonus
Lactophrys triqueter
Holacanthus tricolor
Pomacanthus paru
Abudefduf saxatilis
Heteropriacanthus
cruentatus
Scarus iseri
Scarus taeniopterus
Scarus vetula
Sparisoma aurofrenatum
Sparisoma chrysopterum
Sparisoma rubripinne
Sparisoma viride
Scomberomorus regalis
Scorpaena plumieri
Cephalopholis cruentata
Cephalopholis fulva
Epinephelus striatus
Mycteroperca interstitialis
Mycteroperca tigris
Paranthias furcifer
Archosargus rhomboidalis
Calamus calamus
Sphyraena barracuda
Sphyraena picudilla
Synodus intermedius
Sphoeroides testudineus
Prionotus punctatus
Herbiers
proches de
mangroves
Herbiers
proches de
récifs
mangroves
Bordures de Récifs
mangroves coralliens
�136
6.1.3
La gestion des Zones Fonctionnelles d'Intérêt Halieutiques
Une fois les zone fonctionnelle d'intérêt halieutique d'importance (ZFHI) identifiées, il sera possible de les
hiérarchiser selon l'importance de leur rôle dans le cycle vital des espèces d'intérêt halieutique et dans le
renouvellement de leurs populations (figure 99).
Figure 99. Démarches permettant d'aboutir à l'identification des Zones Fonctionnelles Halieutiques d'Importance
puis de Zones Fonctionnelles Prioritaires et éventuellement des Zones de Conservation Halieutique
Source: Regimbart, Guitton et Le Pape (2018).
�137
6.2
Les zones fonctionnelles halieutiques d'intérêt majeur en Haïti
6.2.1
Les herbiers
En Haïti, huit espèces végétales participant aux herbiers marins ont été signalées (tableau 32). Habituellement,
quand les conditions sont réunies (substrat, richesse en matières organiques) la colonisation se fait par
Halodule wrightii et Syringodium filiforme, Thalassia testudinum venant s'établir après. Les herbiers constitués
sont multispécifiques où prédominent Thalassia testudinum. L'herbe à canard, Ruppia maritima, est une plante
marine et d'eaux saumâtres, elle se rencontre dans la zone subtidale entre 1 et 3 m de profondeur. Le
remplacement de Thalassia testudinum par d'autres espèces traduit un déséquilibre du milieu et sa dégradation.
Bien qu'elles ne soient pas rattachées aux herbiers, deux espèces peuvent être signalées car elles jouent
également un rôle de refuge contre les prédateurs pour les juvéniles et de fourrage pour les espèces herbivores:
le potamot pectiné, Stuckenia pectinata , qui est une plante ubiquiste, présente en eau-douce et en eaux
saumâtres et la fougère des mangroves, Acrostichum aureum, qui se rencontre dans les lagunes et les marais
d'eaux saumâtres, à proximité des mangroves, ce n'est pas une Magnoliopsida comme les espèces précédentes,
mais une Polypodiopsida.
Qu'en est-il des herbiers marins en Haïti? Les informations sur ces herbiers, leurs compositions et leurs
localisations sont rares mais quatre études peuvent être signalées. La première réalisée au nord de la baie de
Port-au-Prince, rend compte d'un bon état des herbiers de cette région, peu impactés par les dépôts
sédimentaires et constitués en majorité de Thalassia testudinum et de Syringodium filiforme (Louis et al.,
2006); la seconde réalisée dans la région de Port-Salut, fait état de la présence de Halodule beaudettei avec les
espèces précédentes (ReefCheck, 2013); la troisième réalisée dans le Parc des trois Baies signale la présence
de la grande naïade, Najas marina, de l'herbe à canard, Ruppia maritima, et de la fougère des mangroves,
Acrostichum aureum (Kramer et al., 2016); enfin l'étude préalable à une proposition d'instauration d'AMPs
formulée par FoProBiM et ReefFix (Wiener, 2013), permet de mesurer la situation des herbiers en Haïti et
avance des estimations de leurs surfaces. Sur les 10 sites proposés (figure 100), seul celui de Caracol (les trois
Baies) comprend une vaste zone d'herbiers totalisant 7 140 ha (figure 101), soit, rapportée à la surface de
799 588 ha de l'ensemble des 10 sites, moins d’un pour cent. Sauf omissions de zones d'herbiers proches des
autres sites, 90 pour cent des sites sont dénués de Zones Fonctionnelles Halieutiques en herbiers. Mais une
diminution des surfaces des herbiers est rapportée (MdE, 2016, 2019). En l'absence de données quantitatives
sur l'ensemble du littoral haïtien, il est difficile de poser un diagnostic à l'échelle du pays.
Les huit espèces constituant les herbiers et les deux espèces d'eaux saumâtres sont signalées dans les bases de
données sur la biodiversité (Cf annexe I) mais peu d'occurrences sont géo référencées si bien que les principaux
points de la cartographie des herbiers sont situés autour de la Floride, à Porto Rico et quelques-uns en
République dominicaine (figure 102).
Tableau 32. Les huit espèces constitutives des herbiers signalées en Haïti.
Famille
Nom scientifique
Nom vernaculaire
Cymodoceaceae
Halodule beaudettei (Hartog) Hartog,
1964
Halodule wrightii Ascherson, 1868
Syringodium filiforme Kützing, 1860
Halophila decipiens Ostenfeld, 1902
Halophila engelmannii Ascherson,
1875
Najas marina L.
Thalassia testudinum K.D.Koenig, 1805
Ruppia maritima
Herbe à lamentins
0
15
Shoal-grass (En)
Herbe à lamentins
0
0
0
0
15
25
30
14,4
0
0
1
3
10
3
Hydrocharitaceae
Ruppiaceae
Engelmann's sea grass (En)
Grande Naïade
Herbe à tortues
Herbe à canards, Ruppie
maritime
Prof. Min. Prof. Max.
(m)
(m)
�138
Figure 100. Les 10 sites de mise en AMPs proposés par FoProBiM et ReefFix: Fort-Liberté (1); Caracol (2); Baie
d'Acul (3); Gonaïves- Grande saline (4); Arcadins (5); La Gonâve Nord (6); La Gonâve Sud (7); banc de Rochelois
(8); Baradères - Cayemites (9) et Île-à-Vaches -Aquin (10).
Source: (Wiener, 2013).
Figure 101. Site de Caracol où figurent ses zones de mangroves, d'herbiers et de récifs coralliens.
Source: (Wiener, 2013).
Figure 102. Cartographie sur l'ensemble de la zone d'étude des occurrences de huit espèces constituant les herbiers
et de la fougère des mangroves de la zone d'inventaire.
Bathymétrie: GEBCO; 3 487 occurrences: OBIS, GBIF du 23/06/2021).
�139
6.2.2
Les mangroves
La mangrove est un écosystème de marais à l'interface entre les eaux continentales (fleuves, rivières,
ruissellement des eaux pluviales) et les eaux marines. Elles sont occupées par des espèces arbustives, les
palétuviers, occupant le front de mer et formant en arrière une forêt. En Haïti, six espèces sont présentes: le
palétuvier rouge, Rhizophora mangle; le palétuvier noir, Avicennia germinans; le palétuvier blanc,
Laguncularia racemosa; la mangrove à boutons, Conocarpus erectus et les palétuviers gris, Avicennia
schaueriana, A. marina (tableau 33), ces deux dernières espèces étant moins fréquentes.
Les espèces se répartissent selon plusieurs étages successifs (figure 103): en front de mer, directement en
contact avec les eaux marines et soumises aux marées, les palétuviers rouges caractérisés par leurs importants
systèmes de racines aériennes composés de pneumatophores; à l'arrière une forêt bassin, inondée également à
chaque marée mais qui n'est pas en prise directe avec la houle et les eaux océaniques, à prédominance de
palétuviers noirs, et parfois des palétuviers gris, Avicennia schaueriana, signalé à Fort- Liberté (Kramer et al.,
2016); plus influencée par les eaux continentales, par les cours d'eaux et par les ruissellements, l'étage des
palétuviers blancs; enfin au plus profond, l'étage des mangroves à boutons avec parfois des palétuviers gris,
Avicenia marina signalé sur l'île de la Tortue (GBIF, 2019).
Les occurrences géo référencées signalées dans les bases de données sur la biodiversité bien que peu
nombreuses, rendent compte des quatre espèces les plus importantes de mangroves du pays (figure 104).
Les études sur l'évolution des surfaces en mangroves d'Haïti et de leur état sont rares. Un travail a tenté de
retracer l'évolution des surfaces en mangroves du nord d'Haïti, entre la Baie d'Acul et Fort-Liberté à la fin du
XXe siècle (Aubé, 1999). L'auteure a comparé les surfaces de cinq mangroves estimées par l’Association
internationale de développement (IDA) entre 1978 et 1989 concluant que la diminution moyenne entre ces
cinq zones de mangroves était de 42 pour cent, chiffre qui peut induire en erreur car globalement sur l'ensemble
des cinq zones de mangroves d'inégales importances, la diminution est de 27 pour cent (tableau 34), ce qui
reste une diminution importante. En 2016 et en 2019, dans les 5e et 6e rapports nationaux sur la biodiversité,
une surface totale en mangroves en Haïti de 14 243 ha est avancée dont 3 990 ha dans la zone de Caracol,
valeur proche de celle avancée par l'IDA en 1989 pour Caracol (MdE, 2016, 2019). En 2013 une étude de
FoProBiM (Wiener, 2014) évalue la surface totale des principales mangroves d'Haïti à 20 517 ha (tableau 35
et figure 105). Il est à noter que la surface en mangroves de Caracol s'établit à 5 260 ha, une valeur supérieure
aux 4 994 ha estimés par l'IDA en 1978 et aux 3 883 de 1989, ce qui tendrait à montrer qu'après une destruction
importante (-22%) entre 1978 et 1989, une reconstruction s'est opérée entre 1989 et 2013 (+35%). Ces chiffres
devront être confirmés par des analyses complémentaires et un suivi régulier.
Figure 103. Différentes espèces de palétuviers et leurs étages d'occupation.
Source: Impact Mer (2009).
�140
Tableau 33. Les cinq espèces de palétuviers signalées en Haïti.
Famille
Acanthaceae
Combretaceae
Rhizophoraceae
Nom scientifique
Avicennia germinans (L.) L.
Avicennia schaueriana Stapf & Leechman ex Moldenke
Avicennia marina (Forssk.) Vierh.
Conocarpus erectus Linnaeus, 1753
Laguncularia racemosa (L.) C.F. Gaertn.
Rhizophora mangle L.
Nom vernaculaire
palétuvier noir
palétuvier gris
palétuvier gris
mangrove à boutons
palétuvier blanc
palétuvier rouge
Tableau 34. Évolution des surfaces de 5 mangroves de la côte nord d'Haïti entre 1978 et 1989 (Aubé, 1999).
Mangrove
Rivière
Salée
Haut du Cap
Petite Anse
Bord de mer
Caracol
TOTAL
Surface (ha)
1978
1989
nr
97
287
511
168
4 994
5 960
88
258
124
3 883
4 553
Diminution
69 %
50 %
26 %
22 %
27 %
Tableau 35. Surfaces et états des principales Mangroves d'Haïti évalués par FoProBiM en 2013 (Wiener, 2014,
2013).
N° sur la carte*
1
2
3
4
5
6
7
8
9
10
Mangrove
Gonaives‐ Grande Saline
Caracol
Île à Vaches - Aquin
Baradères - Cayemites
Baie de l'Acul
La Gonave nord
La Gonave sud
Arcadins
Fort- Liberté- Lagons aux Bœufs
Rochelois**
TOTAL
Surface (ha)
8 160
5 260
2 309
2 050
879
565
520
475
299
0
20 517
État
Mauvais
Bon
Moyen
Moyen
Bon
Bon
Bon
Mauvais
Moyen
-
* Cf figure 105.
** Il s'agit d'un banc immergé.
Figure 104. Cartographie des occurrences de quatre des six espèces constituant les mangroves de la zone
d'inventaire sur l'ensemble de la zone d'étude.
Bathymétrie: GEBCO; 1 967 occurrences: OBIS, GBIF du 23/06/2021.
�141
Selon les évaluations de FoProBiM de 2013, 42 pour cent des surfaces en mangroves sont en mauvais état, 23
pour cent en état moyen et 35 pour cent en bon état. Les facteurs anthropiques pouvant affecter les mangroves
sont nombreux: la coupe des bois (chauffage, charbon, étayage, construction d'embarcations et de bâtiments),
la pêche, les aménagements hydrauliques et leurs effets sur les berges, le drainage et les canaux des mangroves,
la décharge de déchets, la pollution aux hydrocarbures, l'exposition aux herbicides, la transformation en
surfaces agricoles, résidentielles ou urbaines. Les principaux facteurs naturels perturbateurs sont les cyclones,
les ouragans, les orages, les inondations, les sécheresses, l'érosion, les décharges sédimentaires. L'impact de la
dégradation des mangroves, par l'augmentation de rejets sédimentaires vers le large, du relargage d'eaux douces
ont également des effets sur l'état des herbiers et sur la survie des coraux.
Les mangroves sont propriétés de l'État haïtien et sont protégées par l'article 97 de la loi sur les pêches du 27
novembre 1978 (interdiction de coupe). Cette législation s'est vue renforcée par l'arrêté Ministériel du 10 juillet
2013 interdisant l'exploitation des mangroves et prévoyant leur «restauration systématique».
dans les cinq ans suivant l'arrêté (Martelly, 2013).
6.2.3
Les récifs coralliens
Les coraux durs ou construits sont des cnidaires, hexacoralliaires de l'ordre des Scleratina. Au total, 84 espèces
et un genre ont été signalés dans les ZEE d'Haïti et de l'île de la Navase (Tableau 36 et figure 106).
L’écosystème corallien héberge un tiers des espèces de poissons de l'inventaire établi dans cette étude, au stade
adulte et chez de nombreuses espèces d'intérêt halieutique, également au stade juvénile comme les gorettes
(Haemulidae). Ce milieu fournit aux poissons des abris efficaces pour se protéger des prédateurs et des aliments
(algues, éponges, invertébrés benthiques). Les études réalisées autour de l'île de la Navase (Vermeij, 2003) et
dans le parc des trois Baies (Kramer et al., 2016) ont abondamment contribué à l'inventaire des coraux durs.
De nombreux documents font état de la dégradation rapide des coraux en Haïti, cependant les données de la
littérature ne permettent pas d'en mesurer objectivement et quantitativement l'ampleur et la rapidité. Le MDE,
dans son 5ème rapport sur la diversité biologique avance une estimation de la surface totale occupée par les
coraux en Haïti de 400 km² (MdE, 2016), ce qui représenterait 7 pour cent de la surface du plateau continental;
d'autres sources avancent une couverture de 15 pour cent du plateau continental. Les projets d'instauration
d'AMPs de FoProBiM et ReefFix, couvrent un total de 30 409 ha (tableau 37), soit 76 pour cent de la surface
des récifs coralliens d'Haïti, sur la base d'une surface totale de 400 km².
Figure 105. Localisation des principales mangroves d'Haïti dont les surfaces ont été évaluées par FoProBiM. Les
numérotations (en blanc, de 1 à 10) renvoient aux sites énoncés au tableau 35.
Source: Wiener (2014);
�142
Tableau 36. Liste des 85 espèces et un genre de coraux durs signalés en Haïti et limites de leurs distributions bathymétriques.
Famille
Nom scientifique
Nom vernaculaire
Acroporidae
Acropora cervicornis (Lamarck, 1816)
Acropora muricata (Linnaeus, 1758)
Acropora palmata (Lamarck, 1816)
Acropora prolifera (Lamarck, 1816)
Agaricia agaricites (Linnaeus, 1758)
Agaricia fragilis Dana, 1848
Agaricia humilis Verrill, 1902
Agaricia lamarcki Milne Edwards & Haime, 1851
Agaricia tenuifolia Dana, 1846
Agaricia undata (Ellis & Solander, 1786)
Helioseris cucullata (Ellis & Solander, 1786)
Leptoseris cailleti (Duchassaing & Michelotti, 1864)
Stephanocoenia intersepta (Esper, 1795)
Caryophyllia (Caryophyllia) ambrosia Alcock, 1898
Caryophyllia (Caryophyllia) ambrosia caribbeana Cairns, 1979
Caryophyllia (Caryophyllia) antillarum Pourtalès, 1874
Cladocora arbuscula (Le Sueur, 1820)
Dasmosmilia variegata (Pourtalès, 1871)
Paracyathus pulchellus (Philippi, 1842)
Phyllangia americana Milne Edwards & Haime, 1849
Polycyathus mayae Cairns, 2000
Rhizosmilia maculata (Pourtalès, 1874)
Stephanocyathus (Odontocyathus) coronatus (Pourtalès, 1867)
Stephanocyathus (Stephanocyathus) diadema (Moseley, 1876)
Stephanocyathus (Stephanocyathus) laevifundus Cairns, 1977
Tethocyathus recurvatus (Pourtalès, 1878)
Trochocyathus (Trochocyathus) rawsonii
Deltocyathus agassizi Pourtalès, 1867
Deltocyathus italicus (Michelotti, 1838)
Corail Corne de Cerf
Corail branchu
Corail Corne d'Élan
Corne de cerf diffuse
Corail laitue
Agarice fragile
Agarice
Agarice de Lamarck
Thin leaf lettuce coral (En)
Scroll coral (En)
Corail laitue rayon de soleil
Corail laitue en dentelle
Corail étoile rougissant
Agariciidae
Astrocoeniidae
Caryophylliidae
Deltocyathidae
Corail arbuscule
Corail coupe papilleuse
Phyllange américaine
Corail Corne de Cerf
Prof. Inf.
(m)
Prof. Sup.
(m)
0
0
0
1
0
0
0
0
0
0
0
0
0
311
183
150
0
110
17
0
127
1
543
795
300
320
55
494
200
50
30
30
30
2 000
102
70
80
2 000
80
80
40
100
3018
1 646
730
37
421
250
53
309
1 153
1 250
2 553
1 158
569
700
1 115
2 634
�143
Famille
Nom scientifique
Nom vernaculaire
Dendrophylliidae
Cladopsammia spp. Lacaze-Duthiers, 1897
Enallopsammia rostrata (Pourtalès, 1878)
Tubastraea coccinea Lesson, 1830
Corail ramifié profond
Tubastrée orange
Faviidae
Flabellidae
Fungiacyathidae
Meandrinidae
Colpophyllia breviserialis Milne Edwards & Haime, 1849
Colpophyllia natans (Houttuyn, 1772)
Diploria labyrinthiformis (Linnaeus, 1758)
Favia fragum (Esper, 1795)
Isophyllia rigida (Dana, 1846)
Isophyllia sinuosa (Ellis & Solander, 1786)
Manicina areolata (Linnaeus, 1758)
Mussa angulosa (Pallas, 1766)
Mycetophyllia aliciae Wells, 1973
Mycetophyllia danaana Milne Edwards & Haime, 1849
Mycetophyllia ferox Wells, 1973
Mycetophyllia lamarckiana Milne Edwards & Haime, 1849
Mycetophyllia reesi Wells, 1973
Pseudodiploria clivosa (Ellis & Solander, 1786)
Pseudodiploria strigosa (Dana, 1846)
Scolymia cubensis (Milne Edwards & Haime, 1848)
Scolymia lacera (Pallas, 1766)
Solenastrea bournoni Milne Edwards & Haime, 1849a
Solenastrea hyades (Dana, 1846)a
Javania cailleti (Duchassaing & Michelotti, 1864)
Fungiacyathus (Bathyactis) marenzelleri (Vaughan, 1906)
Dendrogyra cylindrus (Ehrenberg, 1834)
Dichocoenia stokesii (Milne Edwards & Haime, 1849)
Eusmilia fastigiata (Pallas, 1766)
Meandrina jacksoni Weil & Pinzón, 2011
Meandrina mammosa Dana, 1846b
Meandrina meandrites (Linnaeus, 1758)
Corail-cerveau géant
Corail cerveau de Neptune
Corail balle de golf
Corail étoile rugueux
Corail cactus sinueux
Corail rose
Corail fleur épineux
Corail cactus rugueux
Corail cactus à crêtes basses
Corail cactus rugueux
Corail cactus ride
Corail cactus à bulbes
Corail cerveau bosselé
Corail cerveau symétrique
Corail cœur d'artichaut
Corail champignon de l'Atlantique
Smooth star coral (En)
Corail étoile noueux
Prof. Inf.
(m)
Prof. Sup.
(m)
202
2 165
1
37
0
0
0
0
0
0
0
0
55
45
30
35
35
65
55
73
0
0
0
0
0
0
3
1
1
30
183
40
58
40
41
47
80
80
35
30
2 165
6 328
Corail Cierge
Corail étoile elliptique
Corail fleur doux
Corail méandreux
0
0
0
0
2 000
72
60
75
Corail méandreux
0
75
�144
Prof. Inf.
(m)
Prof. Sup.
(m)
Famille
Nom scientifique
Nom vernaculaire
Merulinidae
Favites abdita (Ellis & Solander, 1786) **
Orbicella annularis (Ellis & Solander, 1786)
Orbicella faveolata (Ellis & Solander, 1786)
Orbicella franksi (Gregory, 1895)
Montastraea cavernosa (Linnaeus, 1767)
Madrepora carolina (Pourtalès, 1871)
Madrepora oculata Linnaeus, 1758
Oculina diffusa Lamarck, 1816
Oculina valenciennesi Milne Edwards & Haime, 1850
Madracis auretenra Locke, Weil & Coates, 2007
Madracis carmabi Vermeij, Diekmann & Bak, 2003
Madracis decactis (Lyman, 1859)
Madracis formosa Wells, 1973
Madracis myriaster (Milne Edwards & Haime, 1850)
Madracis pharensis (Heller, 1868)
Madracis senaria Wells, 1973
Porites astreoides Lamarck, 1816
Porites branneri Rathbun, 1888
Porites divaricata Le Sueur, 1820
Porites furcata Lamarck, 1816
Porites nodifera Klunzinger, 1879
Porites porites (Pallas, 1766)
Astrangia solitaria (Le Sueur, 1818)
Siderastrea siderea (Ellis & Solander, 1786)
Siderastrea stellata Verrill, 1868
Stenocyathus vermiformis (Pourtalès, 1868)
Grand Corail étoilé
Corail étoilé lobé
Corail étoile massif
Corail étoile en bloc
Grand Corail étoile
Pourtalès fan coral (En)
Corail en zigzag
Oculine diffuse
Ivory tree coral (En)
Madrace jaune
0
0
2
2
0
53
15
0
1
47
2 000
40
50
2 000
1 003
2 700
40
20
Madrace à dix rayons
Madrace profond
Madrace jaune
Madrace étoile
Corail crayon jaune
Porite étoile
Porite mauve
Porite digitée
Porite digitée
Corail dôme poreux
Porite digitée
Petit corail starlette
Corail starlette massif
0
15
20
98
95
1 220
0
1
0
0
0
0
0
0
70
30
47
50
5
50
51
2 000
Worm coral (En)
30
1 229
Montastraeidae
Oculinidae
Pocilloporidae
Poritidae
Rhizangiidae
Siderastreidae
Stenocyathidae
a: Scleractinia incertae sedis;
b: taxon inquirendum
�145
Les récifs coralliens se dégradent sous l'effet des actions anthropiques: extraction de matériaux de construction
(moellons, chaux), pollution par les effluents domestiques, urbains et industriels, la surpêche de poissons
herbivores comme les Scaridae qui maintiennent un équilibre entre algues et coraux, le réchauffement des eaux
marines et leur acidification liés au changement climatique peuvent être inscrits comme des effets des actions
anthropiques néfastes aux populations coralliennes. Des causes naturelles participent à leur dégradation
comme les inondations et les cyclones qui provoquent des décharges de sédiments dans les eaux côtières, la
diminution brutale et de grande ampleur des populations de l'oursin Diadème des Antilles, Diaderma
antillarum, un herbivore qui nettoie les récifs coralliens, a causé dans les années 1997-1998 des dommages
importants aux récifs des Caraïbes.
Un inventaire actualisé des récifs coralliens, de leurs localisations, de leurs tailles, de leurs superficies et de
leur état est indispensable à la mise en œuvre d'une gestion adaptée de cet écosystème indispensable à la
durabilité des ressources halieutiques du pays.
Tableau 37. Surfaces et états des récifs coralliens des 10 sites d'AMP proposés par FoProBiM et ReefFix (Wiener,
2013); les N° correspondent aux n° de sites adoptés précédemment (Figure 105)
N° sur la carte*
1
2
3
4
5
6
7
8
9
10
Site
Gonaives‐ Grande Saline
Caracol
Île à Vaches - Aquin
Baradères - Cayemites
Baie de l'Acul
La Gonave nord
La Gonave sud
Arcadins
Fort- Liberté- Lagons aux Bœufs
Rochelois
TOTAL
Surface
(ha)
34
900
5 520
7 285
2 322
845
2 880
4 700
203
5 720
30 409
État
Mauvais
Excellent
Bon
Moyen
Moyen
Bon
Bon
Bon
Moyen
Bon
Figure 106. Cartographie sur l'ensemble de la zone d'étude des occurrences de 82 des 84 espèces et un genre de
coraux durs de la zone d'inventaire.
Bathymétrie: GEBCO; 95 590 occurrences: OBIS, GBIF du 21/06/2021).
�146
7
La préservation de la biodiversité et la protection des espèces menacées
7.1
La biodiversité marine
S'entend par biodiversité marine dans cette étude la biodiversité des milieux d'eaux marines et d'eaux saumâtres
côtières.
L'inventaire réalisé dans cette étude avec celui constituant les zones fonctionnelles halieutiques essentielles,
avec ses 2 283 espèces animales et végétales, s'est imposé comme un socle consistant pour dresser un état de
la connaissance de la biodiversité marine en Haïti.
L'objectif de ce prolongement de l'étude réalisée n'est pas de présenter dans le détail les espèces comme dans
le cas de l'inventaire des espèces d'intérêt pour la pêche, mais de faire un bilan global sur cette biodiversité
potentielle mais en grande partie non archivée, donc encore partiellement prise en compte en Haïti et de
reconstituer dans le temps l'évolution de l'acquisition de sa connaissance.
Pour parvenir à cet objectif ont été utilisées les données de la littérature consultée dans l'élaboration de
l'inventaire des espèces d'intérêt pour la pêche artisanale, notamment celles de la FAO (Cervigón et al., 1993;
FAO, 1978, 2002a, 2002b, 2002c), des bases de données internationales de Fishbase (Froese et Pauly, 2019),
de Sealifebase (Palomares et Pauly, 2019), d'OBIS (OBIS, 2019) et de GBIF (GBIF, 2019). Les différents
embranchements susceptibles d'avoir des espèces marines ou d'eaux saumâtres ont fait l'objet d'un examen de
tous leurs signalements. Les espèces hors du précédent inventaire sont listées en annexe IV.
La biodiversité signalée dans les eaux marines et saumâtres côtières selon cette étude, s'élève à 2 584 espèces
animales et végétales auxquelles s'ajoutent 26 genres et deux familles dont les déterminations sont incomplètes
(tableau 38). Parmi ces espèces, on compte également trois sous espèces et trois variétés non cumulées avec le
nombre d'espèces. Parmi ces espèces, 12 ne sont pas répertoriées dans WoRMS, ITIS et Catalogue of Life. Le
règne animal seul, compte 2 305 espèces, 24 genres et deux familles.
Pour chaque espèce, la date la plus ancienne de son signalement a été retenue. Dans de nombreux cas, aucune
date n'était renseignée rendant impossible d'évaluer à quelle année l'espèce a été signalée pour la première fois
en Haïti. Il est ainsi possible d'apprécier la vitesse de la progression de la connaissance de la biodiversité
marine en considérant l'évolution du nombre de nouvelles espèces signalées par grands embranchements
taxonomiques (figure 107). Le nombre de nouvelles espèces de plantes marines et macro-algues a atteint un
plateau à partir de 1940. Dans les autres embranchements, l'acquisition de nouvelles espèces progresse encore
après 2000. Le cas des mollusques qui montre un plateau à partir de 2010 doit être relativisé, car c'est
l'embranchement qui compte le plus d'espèces signalées sans date, plus de la moitié. Chez les cnidaires, la
progression était lente jusqu'en 1980, date à partir de laquelle la connaissance s'est accélérée et 72 pour cent
de nouvelles espèces sont signalées dans les 40 années qui ont suivi. Ce phénomène est encore plus accentué
chez les porifères où 96 pour cent de nouvelles espèces sont signalées après 2000, soit en moins de 20 ans.
7.2
La protection des espèces menacées
Trois principaux dispositifs internationaux réunissant des États, des instituts de recherche, des universités et
des Organisation non gouvernementales (ONG) signataires de conventions internationales ont en charge
l'identification des espèces menacées et le degré de leur exposition au risque d'extinction ainsi que la régulation
de leur commerce:
7.2.1
L’Union internationale pour la conservation de la nature
L'Union internationale pour la protection de la nature (IUPN) est créée en octobre 1948 à la suite de la 1ère
conférence internationale sur la protection de la nature au Palais de Fontainebleau organisée sous l'égide de
l'ONU, de l'UNESCO et du gouvernement français, elle prend le nom d'Union internationale pour la
conservation de la nature et des ressources naturelles (IUCN) en 1956. Cette organisation nongouvernementale réunit des États, des institutions gouvernementales, des ONG, des experts42. Elle fait autorité
sur le suivi de l’état des espèces face à leur extinction.
42 En Haïti, la Fondation pour la Protection de la Biodiversité Marine (FoProBiM) est membre de l'IUCN
�147
Tableau 38. Nombres d'espèces animales et végétales des eaux marines et saumâtres côtières signalées en Haïti
depuis 1800.
Règne
Phylum
Subphylum
Animalia
Chordata
Vertebrata
Division
Super-Classe
Phylum ou
Super-Classe
Gnathostomata Pisces
Tetrapoda
Agnatha
Arthropoda
Tunicata
Crustacea
Mollusca
Echinodermata Echinozoa
Crinozoa
Asterozoa
Porifera
Cnidaria
Bryozoa
Annelida
Nematoda
Platyhelminthe
s
Némertes
Total Animalia
Plantae
Tracheophyta
Chromist
a
Chlorophyta
Rhodophyta
Ochrophyta
Foraminifera
Bacteria Cyanobacteria
Total biodiversité signalée
Classe
Actinopterygii
Elasmobranchii
Mammalia
Reptilia
Aves
Myxini
Ascidiacea
Malacostraca
Ostracoda
Cephalopoda
Bivalvia
Gastropoda
Polyplacophora
Scaphopoda
Echinoidea
Holothuroidea
Crinoidea
Asteroidea
Ophiuroidea
Demospongiae
Calcarea
Homoscleromorpha
Anthozoa
Hydrozoa
Cubozoa
Magnoliopsida
Polypodiopsida
Espèces
756
37
29
7
64
1
15
256
1
49
187
447
11
4
21
15
11
26
23
126
2
3
168
13
1
5
25
1
1
2 305
14
1
79
128
43
4
10
2 584
Genres
Familles
1
2
3
1
13
1
1
1
1
1
24
1
2
1
1
26
2
�148
Figure 107. Évolution du nombre de nouvelles espèces signalées dans les eaux marines et saumâtres côtières d'Haïti
entre 1800 et 2020 de sept grands groupes taxonomiques.
�149
Les espèces figurant dans la liste rouge de l’IUCN sont classées selon différents statuts (IUCN, 2021):
-
LC: Least Concerned (préoccupation mineure)
NT: Near threatened (quasi menacée)
VU: Vulnerable (vulnerable)
EN: Endangered (en danger)
CR: Critically endangered (en danger critique)
EW: Extinct in the world (extinction dans le monde sauvage)
EX: Extinct (disparition du monde - éradication)
Seront indiquées ici les espèces qui sont les plus menacées: NT, VU, EN, CR; voire éteintes: EW, EX.
7.2.2
La Convention sur le Commerce international des espèces menacées d’extinction ou
convention de Washington
Les pays signataires de la convention s’engagent à appliquer des mesures d’interdiction ou de de restriction du
commerce international sur certaines espèces inscrites dans les annexes I, II et III de la convention, dans le but
de les préserver de l’extinction (CITES, 2019b).
- Annexe I: espèces les plus menacées d’extinction dont le commerce est interdit
- Annexe II: espèces pas encore menacées d’extinction dont le commerce est fortement régulé.
- Annexe III: espèces nécessitant une protection à la demande d’un pays qui applique une régulation de
son commerce
Haïti ne fait pas partie des pays signataires de la convention.
7.2.3
Convention sur la conservation des espèces migratrices appartenant à la faune sauvage
C’est un traité établi en 1979 dans le cadre du Programme des Nations Unies pour l’Environnement permettant
de mettre en place des mesures coordonnées visant à la conservation d’espèces migratrices. Bien qu’Haïti ne
fasse pas partie des pays signataires de cette convention, les espèces inscrites aux annexes de cette convention
seront signalées pour souligner leur situation vis-à-vis de la menace d’extinction (CMS, 2020).
- Annexe I: Espèces migratrices menacées. Interdiction de leurs prélèvements (captures)
- Annexe II: Espèces migratrices pouvant être conservées grâce à un accord formel.
7.2.4
Récapitulatif des espèces signalées en Haïti et identifiées comme menacées
Les espèces inscrites sur la liste rouge de l'IUCN aux statuts les plus préoccupants sont présentées dans le
tableau suivant ainsi que celles dont le statut est moins préoccupant (LC) ou dont le statut n'est pas évalué faute
de données manquantes mais qui sont néanmoins inscrites dans une annexe de la CITES ou de la CMS (a I, a
II, ou a I et II) (tableau 39).
7.3
La Convention sur la diversité biologique (CDB)
En juin 1992, à l'issue du sommet de Rio (Conférence des Nations Unies sur l'Environnement et le
Développement) la République d'Haïti signait la Convention sur la diversité biologique (CDB) qu'elle ratifiait
quatre ans plus tard, en septembre 1996, affirmant sa volonté d'agir pour la protection de la biodiversité. Le
Ministère de l'environnement de la République d'Haïti, dans le cadre des objectifs d'Aichi adoptés à la suite de
la Conférence Mondiale sur la Biodiversité de Nagoya en octobre 2010 (COP 10), publie régulièrement des
rapports sur la situation de la biodiversité, les résultats obtenus suite aux prises de mesures pour la préserver,
l'améliorer, la restaurer et présente les nouvelles actions mises en œuvre (MdE, 2016, 2019).
�150
Tableau 39. Inventaire des espèces menacées inscrites sur la liste rouge de l'IUCN et leurs statuts en janvier 202043.
NOM SCIENTIFIQUE
FAMILLE
NOM VERNACULAIRE
CITES
CMS
Disparition (EX)
Mammifères
En danger critique (CR)
Monachus tropicalis
Phocidae
Phoque moine des Caraïbes
Poissons osseux
Cyprinus carpio
Cyprinidae
Carpe commune
Poissons osseux
Epinephelus striatus
Serranidae
Mérou rayé
Raies
Pristis pectinata
Pristidae
Poisson-scie
Tortues marines
Eretmochelys imbricata
Cheloniidae
Tortue Caret
aI
a I et II
Tortues marines
Lepidochelys kempii
Cheloniidae
Tortue de Kemp
aI
a I et II
Coraux durs
Acropora cervicornis
Acroporidae
Corail Corne de Cerf
a II
Coraux durs
Acropora muricata
Acroporidae
Corail Corne d'Élan
a II
Coraux durs
Acropora palmata
Acroporidae
Corail Corne d'Élan
a II
Poissons osseux
Anguilla rostrata
Anguillidae
Anguille d'Amérique
Poissons osseux
Anchoa choerostoma
Engraulidae
Anchois des Bermudes
Poissons osseux
Elacatinus atronasus
Gobiidae
Exuma goby (En)
Poissons osseux
Gambusia dominicensis
Poeciliidae
Gambusie dominicaine
Poissons osseux
Thunnus thynnus
Scombridae
Thon rouge du Nord
Requins
Isurus oxyrinchus
Lamnidae
Taupe bleu
Requins
Rhincodon typus
Rhincodontidae
Requin baleine
a II
a II
Requins
Sphyrna lewini
Sphyrnidae
Requin marteau halicorne
a II
a II
Requins
Sphyrna mokarran
Sphyrnidae
Grand requin-marteau
a II
a II
Mammifères
Balaenoptera borealis
Balaenopteridae
Baleine noire
aI
a I et II
Mammifères
Balaenoptera musculus
Balaenopteridae
Baleine bleue
aI
aI
Tortues marines
Chelonia mydas
Cheloniidae
Tortue verte
aI
a I et II
Holothuries
Apostichopus japonicus
Holothuriidae
Bêche-de-mer japonaise
Coraux durs
Orbicella annularis
Merulinidae
Corail étoilé lobé
a II
Coraux durs
Orbicella faveolata
Merulinidae
Corail étoile massif
a II
aI
En danger (EN)
43 Le statut des espèces change d'un année sur l'autre; leur état peut s'être aggravé ou amélioré.
a II
�151
NOM SCIENTIFIQUE
FAMILLE
NOM VERNACULAIRE
CITES
CMS
Poissons osseux
Balistes capriscus
Balistidae
Baliste
Poissons osseux
Coryphopterus eidolon
Gobiidae
Gobie pâle
Poissons osseux
Coryphopterus hyalinus
Gobiidae
Gobie de verre
Poissons osseux
Coryphopterus lipernes
Gobiidae
Gobie nez bleu
Poissons osseux
Coryphopterus personatus
Gobiidae
Gobie nageur masqué
Poissons osseux
Coryphopterus thrix
Gobiidae
Gobie Bartail
Poissons osseux
Elacatinus prochilos
Gobiidae
Gobie nettoyeur à larges bandes
Poissons osseux
Kajikia albida
Istiophoridae
Makaire blanc de l'Atlantique
Poissons osseux
Makaira nigricans
Istiophoridae
Makaire bleu, Marlin bleu
Poissons osseux
Lachnolaimus maximus
Labridae
Labre capitaine
Poissons osseux
Lutjanus campechanus
Lutjanidae
Vivaneau campèche
Poissons osseux
Lutjanus cyanopterus
Lutjanidae
Vivaneau cubéra
Poissons osseux
Rhomboplites aurorubens
Lutjanidae
Vivaneau ti-yeux
Poissons osseux
Megalops atlanticus
Megalopidae
Tarpon
Poissons osseux
Mola mola
Molidae
Mole, Poisson-lune
Poissons osseux
Thunnus obesus
Scombridae
Thon obèse
Poissons osseux
Epinephelus itajara
Serranidae
Mérou géant
Poissons osseux
Epinephelus morio
Serranidae
Mérou rouge
Poissons osseux
Hyporthodus flavolimbatus
Serranidae
Mérou aile jaune
Poissons osseux
Hyporthodus niveatus
Serranidae
Mérou neige
Poissons osseux
Mycteroperca interstitialis
Serranidae
Badèche gueule jaune
Poissons osseux
Hippocampus comes
Syngnathidae
hippocampe à queue tigrée
a II
Poissons osseux
Hippocampus erectus
Syngnathidae
Hippocampe rayé
a II
Requins
Alopias superciliosus
Alopiidae
Renard gros yeux
a II
a II
Requins
Carcharhinus brevipinna
Carcharhinidae
Requin tisserand
Requins
Carcharhinus falciformis
Carcharhinidae
Requin soyeux
a II
a II
Requins
Carcharhinus longimanus
Carcharhinidae
Requin océanique
a II
Requins
Sphyrna zygaena
Sphyrnidae
Requin marteau commun
a II
Vulnérable (VU)
�152
NOM SCIENTIFIQUE
FAMILLE
NOM VERNACULAIRE
CITES
CMS
Mammifères
Balaenoptera physalus
Balaenopteridae
Mammifères
Physeter macrocephalus
Physeteridae
Rorqual commun
aI
a I et II
Cachalot
aI
a I et II
Mammifères
Trichechus manatus
Trichechidae
Lamentin des Caraïbes
aI
a I et II
Tortues marines
Caretta caretta
Cheloniidae
Tortue caouane
aI
a I et II
Tortues marines
Lepidochelys olivacea
Cheloniidae
Tortue olivâtre
aI
a I et II
Tortues marines
Dermochelys coriacea
Dermochelyidae
Tortue Luth
aI
a I et II
Gastéropodes
Conus hieroglyphus
Conidae
Cône hiéroglyphe
Coraux durs
Agaricia lamarcki
Agariciidae
Agarice de Lamarck
a II
Coraux durs
Mycetophyllia ferox
Faviidae
Corail cactus rugueux
a II
Coraux durs
Dendrogyra cylindrus
Meandrinidae
Corail Cierge
a II
Coraux durs
Dichocoenia stokesii
Meandrinidae
Corail étoile elliptique
a II
Coraux durs
Orbicella franksi
Merulinidae
Corail étoile en bloc
a II
Poissons osseux
Albula vulpes
Albulidae
Banane
Poissons osseux
Balistes vetula
Balistidae
baliste royal
Poissons osseux
Oreochromis mossambicus
Cichlidae
Tilapia du Mozambique
Poissons osseux
Lutjanus analis
Lutjanidae
Vivaneau sorbe
Poissons osseux
Lutjanus synagris
Lutjanidae
Vivaneau gazou
Poissons osseux
Scarus guacamaia
Scaridae
Perroquet arc-en-ciel
Poissons osseux
Thunnus alalunga
Scombridae
Germon
Poissons osseux
Thunnus albacares
Scombridae
Albacore
Poissons osseux
Hyporthodus nigritus
Serranidae
Mérou varsovie (polonais)
Poissons osseux
Mycteroperca bonaci
Serranidae
Badèche bonaci
Poissons osseux
Mycteroperca venenosa
Serranidae
Badèche de roche
Poissons osseux
Hippocampus reidi
Syngnathidae
Hippocampe long nez
Raies
Aetobatus narinari
Myliobatidae
Aigle de mer léopard
Requins
Carcharhinus acronotus
Carcharhinidae
Requin nez noir
Vulnérable (VU) (suite)
Quasi menacée (NT)
a II
�153
NOM SCIENTIFIQUE
FAMILLE
NOM VERNACULAIRE
CITES
CMS
Quasi menacée (NT) (suite)
Requins
Carcharhinus leucas
Carcharhinidae
Requin bouledogue
Requins
Carcharhinus limbatus
Carcharhinidae
Requin pointes-noires
Requins
Carcharhinus perezi
Carcharhinidae
Requin de récif
Requins
Galeocerdo cuvier
Carcharhinidae
Requin tigre commun
Requins
Negaprion brevirostris
Carcharhinidae
Requin citron
Requins
Prionace glauca
Carcharhinidae
Peau bleue
Requins
Ginglymostoma cirratum
Ginglymostomatidae
Requin nourrice
Requins
Mustelus canis
Triakidae
Emissole douce
Mammifères
Pseudorca crassidens
Delphinidae
Fausse orque
Gastéropodes
Conus cardinalis
Conidae
Cône cardinal
Coraux durs
Agaricia tenuifolia
Agariciidae
Thin leaf lettuce coral (En)
a II
Coraux durs
Favites abdita
Merulinidae
Grand Corail étoile
a II
Coraux durs
Porites branneri
Poritidae
Porite mauve
a II
a II
Préoccupation mineure (LC)
Mammifères
Balaenoptera acutorostrata
Balaenopteridae
Petit rorqual
aI
Mammifères
Megaptera novaeangliae
Balaenopteridae
Baleine à bosse
aI
aI
Mammifères
Delphinus delphis
Delphinidae
Dauphin commun
a II
a I et II
Mammifères
Feresa attenuata
Delphinidae
Orque pygmée
a II
Mammifères
Globicephala macrorhynchus
Delphinidae
Globicéphale tropical
a II
Mammifères
Grampus griseus
Delphinidae
Dauphin de Riso
a II
a II
Mammifères
Lagenodelphis hosei
Delphinidae
Dauphin de Fraser
a II
a II
Mammifères
Peponocephala electra
Delphinidae
péponocéphale
a II
Mammifères
Stenella attenuata
Delphinidae
Dauphin tacheté
a II
a II
Mammifères
Stenella clymene
Delphinidae
Dauphin clymène
a II
a II
Mammifères
Stenella coeruleoalba
Delphinidae
Dauphin rayé
a II
a II
Mammifères
Stenella frontalis
Delphinidae
Dauphin tacheté de l'Atlantique
a II
Mammifères
Stenella longirostris
Delphinidae
Dauphin longirostre
a II
Mammifères
Steno bredanensis
Delphinidae
dauphin à bec étroit
a II
a II
�154
NOM SCIENTIFIQUE
FAMILLE
NOM VERNACULAIRE
CITES
CMS
Préoccupation mineure (LC) (suite)
Mammifères
Tursiops truncatus
Delphinidae
Grand souffleur
a II
a II
Mammifères
Ziphius cavirostris
Ziphiidae
baleine à bec de Cuvier
a II
aI
Coraux durs
Agaricia agaricites
Agariciidae
Corail laitue
a II
Coraux durs
Agaricia humilis
Agariciidae
Agarice
a II
Coraux durs
Leptoseris cailleti
Agariciidae
Corail laitue en dentelle
a II
Coraux durs
Stephanocoenia intersepta
Astrocoeniidae
Corail étoile rougissant
a II
Coraux durs
Cladocora arbuscula
Caryophylliidae
Corail arbuscule
a II
Coraux durs
Colpophyllia natans
Faviidae
Corail cerveau géant
a II
Coraux durs
Diploria labyrinthiformis
Faviidae
Corail cerveau de Neptune
a II
Coraux durs
Favia fragum
Faviidae
Corail balle de golf
a II
Coraux durs
Isophyllia rigida
Faviidae
Corail étoile rugueux
a II
Coraux durs
Isophyllia sinuosa
Faviidae
Corail cactus sinueux
a II
Coraux durs
Manicina areolata
Faviidae
Corail rose
a II
Coraux durs
Mussa angulosa
Faviidae
Corail fleur épineux
a II
Coraux durs
Mycetophyllia aliciae
Faviidae
Corail cactus rugueux
a II
Coraux durs
Mycetophyllia lamarckana
Faviidae
Corail cactus ride
a II
Coraux durs
Pseudodiploria clivosa
Faviidae
Corail cerveau bosselé
a II
Coraux durs
Pseudodiploria strigosa
Faviidae
Corail cerveau symétrique
a II
Coraux durs
Scolymia cubensis
Faviidae
Corail cœur d'artichaut
a II
Coraux durs
Scolymia lacera
Faviidae
Corail champignon de l'Atlantique
a II
Coraux durs
Solenastrea bournoni
Faviidae
Smooth star coral (En)
a II
Coraux durs
Solenastrea hyades
Faviidae
Knobby star coral (En)
a II
Coraux durs
Eusmilia fastigiata
Meandrinidae
Corail fleur doux
a II
Coraux durs
Meandrina jacksoni
Meandrinidae
Corail méandreux
a II
Coraux durs
Meandrina meandrites
Meandrinidae
Corail méandreux
a II
Coraux durs
Montastraea cavernosa
Montastraeidae
Grand Corail étoile
a II
Coraux durs
Solenastrea bournoni
Mussidae
Corail étoile lisse
a II
Coraux durs
Solenastrea hyades
Mussidae
Corail étoile noueux
a II
�155
NOM SCIENTIFIQUE
FAMILLE
NOM VERNACULAIRE
CITES
CMS
Préoccupation mineure (LC) (suite)
Coraux durs
Oculina diffusa
Oculinidae
Oculine diffuse
a II
Coraux durs
Madracis auretenra
Pocilloporidae
Madrace jaune
a II
Coraux durs
Madracis decactis
Pocilloporidae
Madrace à dix rayons
a II
Coraux durs
Madracis formosa
Pocilloporidae
Madrace profond
a II
Coraux durs
Madracis pharensis
Pocilloporidae
Madrace étoile
a II
Coraux durs
Madracis senaria
Pocilloporidae
Corail crayon jaune
a II
Coraux durs
Porites astreoides
Poritidae
Porite étoile
a II
Coraux durs
Porites divaricata
Poritidae
Porite digitée
a II
Coraux durs
Porites furcata
Poritidae
Porite digitée
a II
Coraux durs
Porites nodifera
Poritidae
Corail dôme poreux
a II
Coraux durs
Porites porites
Poritidae
Porite digitée
a II
Coraux durs
Siderastrea radians
Siderastreidae
Petit corail starlette
a II
Coraux durs
Siderastrea siderea
Siderastreidae
Corail starlette massif
a II
Non évaluée ou données manquantes
Poissons osseux
Hippocampus guttulatus
Syngnathidae
Hippocampe moucheté
a II
Mammifères
Balaenoptera edeni
Balaenopteridae
Rorqual de Bryde
aI
a II
Mammifères
Orcinus orca
Delphinidae
Épaulard
a II
a II
Mammifères
Kogia breviceps
Kogiidae
Cachalot nain
a II
Mammifères
Kogia sima
Kogiidae
Cachalot nain
a II
Mammifères
Mesoplodon densirostris
Ziphiidae
baleine à bec de Blainville
a II
Mammifères
Mesoplodon europaeus
Ziphiidae
baleine à bec de Gervais
a II
Gastéropodes
Aliger gigas
Strombidae
Strombe rosé
a II
Coraux durs
Acropora prolifera
Acroporidae
Corne de cerf diffuse
a II
Coraux durs
Agaricia fragilis
Agariciidae
Agarice fragile
a II
Coraux durs
Agaricia undata
Agariciidae
Scroll coral (En)
a II
Coraux durs
Caryophyllia (Caryophyllia) ambrosia
Caryophylliidae
a II
Coraux durs
Caryophyllia (Caryophyllia) ambrosia caribbeana
Caryophylliidae
a II
Coraux durs
Caryophyllia (Caryophyllia) antillarum
Caryophylliidae
a II
�156
NOM SCIENTIFIQUE
FAMILLE
NOM VERNACULAIRE
CITES
Non évaluée ou données manquantes (suite)
Coraux durs
Dasmosmilia variegata
Caryophylliidae
Coraux durs
Paracyathus pulchellus
Caryophylliidae
Corail coupe papilleuse
a II
a II
Coraux durs
Phyllangia americana
Caryophylliidae
Phyllange américaine
a II
Coraux durs
Polycyathus mayae
Caryophylliidae
a II
Coraux durs
Rhizosmilia maculata
Caryophylliidae
a II
Coraux durs
Stephanocyathus (Odontocyathus) coronatus
Caryophylliidae
a II
Coraux durs
Stephanocyathus (Stephanocyathus) diadema
Caryophylliidae
a II
Coraux durs
Stephanocyathus (Stephanocyathus) laevifundus
Caryophylliidae
a II
Coraux durs
Tethocyathus recurvatus
Caryophylliidae
a II
Coraux durs
Trochocyathus (Trochocyathus) rawsonii
Caryophylliidae
a II
Coraux durs
Deltocyathus agassizi
Deltocyathidae
a II
Coraux durs
Deltocyathus italicus
Deltocyathidae
a II
Coraux durs
Enallopsammia rostrata
Dendrophylliidae
Corail ramifié profond
a II
Coraux durs
Tubastraea coccinea
Dendrophylliidae
Cauliflower En)
a II
Coraux durs
Mycetophyllia reesi
Faviidae
Corail cactus à bulbes
a II
Coraux durs
Javania cailleti
Flabellidae
Coraux durs
Fungiacyathus (Bathyactis) marenzelleri
Fungiacyathidae
Coraux durs
Madrepora carolina
Oculinidae
Pourtalès fan coral (En)
a II
Coraux durs
Madrepora oculata
Oculinidae
Corail en zigzag
a II
Coraux durs
Oculina valenciennesi
Oculinidae
Ivory tree coral (En)
a II
Coraux durs
Madracis carmabi
Pocilloporidae
Coraux durs
Madracis myriaster
Pocilloporidae
Madrace jaune
a II
Coraux durs
Astrangia solitaria
Rhizangiidae
Corail nain
a II
Coraux durs
Siderastrea stellata
Siderastreidae
Coraux durs
Stenocyathus vermiformis
Stenocyathidae
a II
a II
a II
a II
Worm coral (En)
a II
CMS
�157
Discussion
L'inventaire des espèces marines signalées dans la ZEE d'Haïti dans la littérature et dans les bases de données
internationales a montré qu'une grande diversité spécifique pouvait exister. Les indicateurs de surexploitation
sont fragmentaires, approximatifs (diminution des rendements, diminution des tailles de captures) et
conduisent à relativiser ce constat en attendant de le voir étayé par des données et des analyses robustes. Très
peu d'études se sont intéressées à décrire la composition spécifique détaillée des captures de la pêche en Haïti.
La contribution d'Haïti à l'inventaire de la biodiversité mondiale dans les bases de données internationales sur
la biodiversité marine est faible: par exemple dans la base OBIS, qui en mai 2019 comptait 56 444 797
occurrences répertoriées, seulement 6 592 concernaient celles dans la ZEE d'Haïti, soit 0,012 pour cent, dont
51 pour cent sur les poissons osseux. La contribution d'Haïti à l'alimentation des bases de données a été variable
dans le temps (figure 108). Après une forte contribution en 1957 due aux très nombreux signalements de
foraminifères sous forme fossile44, il a fallu attendre la fin des années 1980s pour que les signalements
d'occurrences reprennent, ils se sont interrompus après 2005.
L'examen des signalements dans les bases OBIS et GBIF de 1900 à nos jours montrent que selon les grands
groupes phylogénétiques, ceux-ci se sont fait par séquences (figure 109). Le nombre de signalements de
poissons est significatif à partir de 1927 mais sur la période, la majorité des signalements sont faits entre 1992
et 2004. De 2010 à 2018, les signalements de vertébrés ont concerné pour l'essentiel des oiseaux marins et de
rivage. Les signalements de plantes et algues ont lieu entre 1925 et 1927 puis en 1941; ceux des crustacés en
1970. L'absence de régularité dans ces signalements opérés par à-coups selon les différentes grandes divisions
systématiques constitue un obstacle à l'utilisation des données des bases OBIS et GBIF pour estimer des indices
de diversité dans le but d'évaluer la dynamique de la biodiversité dans la zone d'inventaire (érosion ou statu
quo ou amélioration).
Les bases de données OBIS et GBIF permettent de centraliser et de capitaliser des informations sur la
biodiversité en Haïti tout en les rendant accessibles au plus grand nombre. Il serait souhaitable que lorsque les
protocoles d'échantillonnage le permettent, les données géo référencées collectées soient versées dans l'une
ou/et l'autre de ces deux bases de données comme pourraient l'être par exemple les données issues des récentes
études sur des zones particulières (Bouchon et al., 2006; Bouchon-Navaro et al., 2006; Louis et al., 2006;
ReefCheck, 2013; Kramer et al., 2016).
Figure 108. Nombre annuel d'enregistrements d'occurrences signalées en Haïti dans la base OBIS entre 1866 et
2018.
Source : OBIS (Consulté le 21/05/2019).
44 Ces signalements ont été fournis par les équipes scientifiques opérant dans le cadre du programme international Pangaea d'étude
paléoclimatique. Les signalements concerne des formes fossiles et bien que certaines d'entre-elles existent encore sous forme vivante,
s'agissant de fossiles, elles n'ont pas été prises en compte dans cet inventaire.
�158
Plus généralement, les études sur la biodiversité des écosystèmes coralliens de l'Atlantique sont sousreprésentées dans les revues scientifiques. Entre 1969 et 2017, elles représentaient un quart des articles dans
la revue Marine Biodiversity, l'essentiel des études étant consacrées à la région Indopacifique (Hoeksema,
Reimer et Vonk, 2017) et seulement huit études sur les 51 en Atlantique, concernent les Grandes Antilles. Cela
dénote un faible investissement de la recherche sur les écosystèmes coralliens dans la région.
L'examen des distributions bathymétriques des espèces d'intérêt pour la pêche dans le contexte de la pêche
artisanale en Haïti et la recherche d'optimisation de ses pratiques ont permis:
-
De confirmer l'opportunité que représente le développement de la pêche des poissons pélagiques
océaniques sous DCP. Mais on constate que sur les 48 DCP en activité répertoriés en 2007, 43 étaient
situés dans la moitié sud du pays et seulement cinq dans la partie nord du pays dont un seul dans le
département du nord et aucun dans celui du nord-ouest (Damais et al., 2007), ce qui apparaît comme
paradoxal au vu des distributions spatiales des occurrences de thons, makaires, marlins et espadons
chez lesquels le spot le plus important se situe au large du département du nord-ouest, au niveau du
passage du Vent.
-
De montrer que si les espèces les plus côtières semblaient être exploitées sur toutes leurs aires de
distribution, des espèces d'intérêt majeur pour la pêche telles que les vivaneaux, les mérous et les
carangues pourraient voir leurs aires d'exploitation étendues plus au large ou vers des fonds plus
profonds, contribuant à améliorer la productivité de la pêche artisanale (Ferry et Kohler, 1987). Les
échanges avec les communautés de pêcheurs en juillet 2019 ont permis d'apprendre que des initiatives
individuelles de pêche à la palangre sur des fonds plus profonds (100 m) avaient permis de capturer
des poissons plus grands (notamment des cardinaux et des vivaneaux).
-
La cartographie des occurrences montre que celles-ci se cristallisent sur et autour des récifs coralliens
à l'exception des pélagiques océaniques, des raies et des requins.
L'inventaire des espèces susceptibles de contribuer au développement de l'activité de la pêche au-delà des
espèces signalées comme valorisables dans l'alimentation (commerce intérieur et commerce d'exportation) ou
dans le commerce de poissons et invertébrés marins d'ornement, a été étendu à des espèces non signalées
comme d'intérêt commercial mais qui participent à la consommation locale sans donner lieu à des pêches
ciblées (crabes, gastéropodes, bivalves) ou bien aux espèces présentant un fort potentiel dans des applications
industrielles (spongiaires et algues) ou enfin des espèces fréquentes dans le régime des poissons commerciaux
(par exemple, copépodes).
Figure 109. Nombre de signalements datés d'espèces par grandes divisions phylogéniques observés dans la zone
d'inventaire.
Source: OBIS et GBIF consultées entre le 25/06/2020 et le 18/08/2020
�159
L'inventaire réalisé lors de cette étude rend compte de la biodiversité marine potentielle en Haïti où les
peuplements de récifs coralliens jouent un rôle primordial ; or, ces milieux ont connu une forte régression de
leur biodiversité comme l'ont montré plusieurs études (Roberts et al., 2002; Paddack et al., 2009; Miloslavich
et al., 2010), donnant lieu parfois à des diagnostics sévères (Saffache, 2006). Les écosystèmes de mangroves
et de récifs coralliens ont été fortement impactés par l'activité humaine (déboisement pour la production de
bois de chauffe ou de charbon; prélèvement de coraux pour la production de chaux à usage de la construction).
L'élaboration de l'inventaire des espèces d'intérêt pour la pêche a été au centre de cette étude et a permis
d'établir un autre inventaire, celui de la biodiversité des eaux marines et saumâtres côtières d'Haïti.
Ces inventaires devront être actualisés dans l'optique de disposer d'un état des lieux de la biodiversité existante
en Haïti. En effet, certaines espèces figurant dans ces inventaires peuvent avoir disparu aujourd'hui comme le
phoque moine des Caraïbes45, officiellement éteint sur toute la planète depuis 1952; d'autres espèces peuvent
s'être raréfiées comme le crocodile américain aujourd'hui cantonné dans le lac saumâtre d'Azuéi, proche de la
frontière avec la République dominicaine ou le poisson-scie qui n'est observé que lors d'épisodes de forts
cyclones (W. Célestin, comm. Pers.), ces individus provenant probablement de Floride où l'espèce est protégée.
À l'avenir, il s'agira de disposer de la meilleure évaluation qualitative des ressources halieutiques exploitables
et de la biodiversité marine qui est un indicateur essentiel dans le cas de pêcheries multispécifiques.
Des campagnes par observateurs embarqués devront être organisées régulièrement sur tout le littoral haïtien
en s'appuyant sur les cadres des organisations professionnelles et du Ministère en partenariat étroit avec les
universités d'Haïti et de la grande région ainsi que des musées d'histoire naturelle. Le référentiel sur les espèces
capturées ou observées dans la ZEE (annexe I et annexe IV) devra être actualisé. Il précisera les noms d'espèces
vernaculaires en créole haïtien, en français lorsqu'ils existent, en anglais, le cas échéant, et impérativement les
noms scientifiques, genre et espèces, conformément à la taxonomie reconnue et aux règles en vigueur dans ce
domaine, en se référant au fichier central de la base de données WoRMS ou celui d'ITIS46. Ce fichier facilitera
l'élaboration de données de captures annuelles détaillées ou agrégées à transmettre aux ORGP et à la FAO ce
qui permettrait à Haïti une plus grande implication et une meilleure intégration dans les groupes de travail
régionaux d'évaluations des pêcheries et de bénéficier d'un meilleur appui de la communauté scientifique
régionale dans le domaine de la gestion des pêches.
La détermination des espèces pourrait constituer un obstacle à la réalisation d'un tel fichier. De nombreuses
références fournies dans ce document aideront à le surmonter. Une aide complémentaire pourra être trouvée
dans les documents de synthèse de la série FAO Fisheries Synopsis concernant des familles ou des groupes
d'espèces dont certains ont déjà été mentionnés (§ 3.2). Ces documents fournissent une aide à la détermination
et des données complémentaires sur la biologie des espèces dont certaines sont présentes en Haïti: les
vivaneaux, (Allen, 1985); les mérous, (Heemstra et Randall, 1993); les thonidés, (Collette et Nauen, 1983); les
clupéiformes, (Whitehead, 1985; Whitehead, Nelson et Wongratana, 1988); les ophidiiformes, (Nielse et al.,
1999); les Gempylidae et Trichiuridae, (Nakamura et Parin, 1993); les céphalopodes, (Jereb et Roper, 2005,
2010). Les noms scientifiques de certaines espèces dans certains de ces documents déjà anciens pourront avoir
été modifiés depuis et nécessiteront une mise à jour à partir de WoRMS.
45 Cette espèce n'a pas été formellement signalée en Haïti mais l'a été en République dominicaine. Il est probable qu'elle ait disparu
avant 1800 et les premières expéditions de scientifiques naturalistes.
46 ITIS: Integrated Taxonomic Information System, site Nord américain: https://www.itis.gov/
�160
Conclusion et recommandations
La présente contribution à l'expertise collégiale sur la pêche artisanale a pour objet de fournir des informations
d'ordre qualitatif sur les potentiels halieutiques d'Haïti. Les données de captures débarquées ont été utilisées
dans le seul but de définir des groupes d'espèces commerciales reconnus. Les informations fournies sous forme
cartographique portent sur des occurrences et à ce titre ne peuvent pas être interprétées comme des
informations sur les abondances des espèces. En effet, les bases de données recouvrent une large période
(1950-202147) et certaines espèces peuvent avoir disparu depuis la date de leur signalement; le signalement
d'une espèce est tributaire de la disponibilité d'individus ou groupes d'individus à y contribuer (Institutions,
Universités, ONG, etc.): une occurrence enregistrée est le produit de la rencontre d'une espèce et d'une
personne capable d'en déterminer le nom scientifique, de relever sa position géographique et de transmettre
ces informations aux organismes gestionnaires des bases de données. C'est ainsi que de nombreux signalements
dans la ZEE haïtienne sont localisés autour de l'île de la Navase qui a fait l'objet de nombreuses campagnes
scientifiques (Miller et Gerstner, 2002; Miller, Mc Clellan et Bégin, 2003; Karnauskas et al., 2011). Les
espèces ciblées par la pêche sportive ou/et les poissons pélagiques océaniques sont nettement plus souvent
signalées que les espèces plus communes des eaux côtières. Par exemple, les cinq espèces les plus signalées
dans la ZEE d'Haïti, sensu stricto, dans la base OBIS ont été l'espadon, Xiphias gladius (1 141 occurrences),
la coryphène, Coryphaena hippurus (359 occurrences), le thon obèse, Thunnus obesus (332 occurrences),
l'Albacore, Thunnus albacares (280 occurrences) et l'escolier noir, Lepidocybium flavobrunneum (249): Les
espèces des récifs coralliens bénéficient apparemment de signalements fréquents, probablement en relation
avec des suivis scientifiques et l'implication de structures de tourisme subaquatique sensibles aux questions de
biodiversité marine.
L'inventaire réalisé dans cette étude ne peut être considéré comme exhaustif, la dynamique d'acquisition de
connaissance de la biodiversité marine montre qu'elle est toujours active mais se fait par à-coups selon les
grandes divisions taxonomiques, en lien probablement avec des programmes nationaux ou internationaux de
durées limitées. Les espèces fourrages ou qui jouent un rôle important dans la chaîne trophique (par exemple,
les Copépodes dans l'inventaire principal) ont pu être étendues aux vers marins, à d'autres cnidaires que les
coraux (gorgones, anémones, méduses), à d'autres échinodermes que les oursins et les concombres de mer
(étoiles de mer, crinoïdes, ophiures), aux micro-algues qui constituent le phytoplancton (Cf annexe IV).
Poursuivre l'inventaire des espèces marines et en maintenir le suivi suppose de renforcer les connaissances des
techniciens et des cadres scientifiques ou/et des services publics, en matière de détermination des espèces et
de taxonomie, sans pour autant former des «Taxonomistes» spécialistes. Il s'agira de développer des
partenariats. Un accent devra être mis sur le géo référencement des espèces déterminées et autant que possible,
après validation, sur leur communication aux bases de données internationales sur la biodiversité pour rendre
ces données accessibles au plus grand nombre. Cela implique que s'établisse un partenariat étroit et pérenne
entre les autorités en charge de l'accompagnement de la filière de la pêche et de l'aquaculture ainsi que de
l'environnement et les universités d'Haïti mais aussi des universités, des musées et des organismes scientifiques
de la région Caraïbes et de l'étranger. Un observatoire de la biodiversité permettrait à terme de disposer
d'informations sur la situation de la biodiversité marine en Haïti et sur son évolution, archivée et accessible au
plus grand nombre.
La réalisation de cet inventaire a permis de constater que de nombreuses opérations de recherche ont été
réalisées dans la ZEE haïtienne, sans avoir donné lieu à une restitution des résultats à Haïti. Les nouvelles
autorisations d'effectuer des opérations de recherche ou de pêche dans la ZEE haïtienne pourraient être
conditionnées par une restitution obligatoire des résultats sous une forme ou une autre.
Les données de distributions bathymétriques des espèces, indiquent que la prospection de fonds au-delà de
l'isobathe des 50 m mériterait d'être mise en œuvre par des pêches à la ligne à main de fond (Cf. les lignes à
main vénézuéliennes utilisées pour la pêche au vivaneau rouge ou les lignes de fond à pédalier en
Indopacifique) ou à la palangre de fond, au casier, au trémail (à titre prospectif pour ce dernier, car son
utilisation généralisée pourrait se révéler destructrice), à la ligne de traîne.
L'hermaphrodisme séquentiel et les agrégations de ponte sont très répandus chez les poissons des récifs
coralliens; ces particularités peuvent, en l'absence de mesures de régulation ad hoc, accentuer les effets d'une
47 Voir antérieure, jusqu'à 1800 dans le cas de GBIF.
�161
surpêche. Ces particularités devront être prises en compte dans les futurs plans de gestion et d'aménagement
des pêches.
La pêche et la collecte destinée au commerce des espèces marines d'ornement où Haïti est le 1er exportateur de
la région Amérique centrale- Caraïbes - Amérique du Sud vers les États-Unis d’Amérique, doivent être suivies
et encadrées au même titre que les autres secteurs de la pêche. Ces activités peuvent se révéler néfastes lorsqu'il
s'agit d'espèces menacées et en particulier s'il s'agit d'espèces ciblées également par la pêche traditionnelle. Les
techniques de capture et de collecte de ces activités sont mal connues en Haïti, certaines peuvent être
destructrices et nécessiter des réglementations strictes (pêche à l'arsenic ou autres poisons, aux explosifs).
Les zones fonctionnelles halieutiques d'intérêt majeur: herbiers, mangroves, coraux, sont encore trop mal
connues. Un recensement de ces biotopes, de leur état, de leurs connectivités, est indispensable. Il comprendrait
également les zones d'agrégation de ponte (espèces, positions, nombres d'individus par agrégation, périodes).
Des mesures de protection, à l'instar de celles prises pour la mangrove devraient être mises en place (par
exemple, la régulation ou l’interdiction de la seine de plage sur les zones d'herbiers).
Enfin, il apparait clairement que le MARNDR et le MDE poursuivent des objectifs communs ou y sont tous
deux parties prenantes. Parmi les objectifs d'Aichi, issus de la Conférence de Nagoya, quatre d'entre eux en
sont l'expression: l'objectif B6 concerne la gestion durable des stocks aquatiques; l'objectif B10 engage à
réduire la pression anthropique sur les écosystèmes fragilisés par le réchauffement climatique et l'acidification
des océans, notamment les récifs coralliens; l'objectif C11 marin vise à mettre en AMP 10 pour cent de la
surface de la ZEE d'ici la fin 2020; l'objectif E19, vise à rassembler les connaissances sur la biodiversité sur
des bases scientifiques. Ce constat conduit à recommander de favoriser la synergie entre les deux ministères
et lorsque la situation s'y prête, de mutualiser leurs moyens.
Enfin, la sensibilisation des communautés de pêcheurs et de la population aux écosystèmes marins, à leur
fonctionnement, à leur fragilité devrait être développée. L'élaboration d'un petit manuel pédagogique et de
vulgarisation48 s'appuyant sur de nombreuses photos et illustrations permettrait une meilleure compréhension
des réglementations mises ou à mettre en place et par voie de conséquence leur meilleure acceptation et leur
respect.
48 Cela peut faire appel également à d'autres formes de médias (par exemple, reportages télévisuels, émissions radiophoniques).
�162
Bibliographie
Abid, A. et Idrissi, M. 2006. 2.1.9 Description de l’espadon (SWO). In ICCAT, éd. Manuel de l’ICCAT
Commission internationale pour la conservation des thonidés de l’Atlantique 2006-2016 - Publications
ICCAT [en ligne]. Mise à jour 2016., p. 191‑208. ICCAT. (disponible sur
https://www.iccat.int/Documents/SCRS/Manual/CH2/2_1_9_SWO-FRA.pdf).
Allen, G.R. 1985. FAO species catalogue. Vol. 6. Snappers of the world. An annotated and illustrated
catalogue of lutjanid species known to date. FAO Fisheries Synopsis 125. Rome, FAO. 208 p. (disponible
sur http://www.fao.org/3/a-ac481e.pdf).
Alvarado, J.J. 2011. Echinoderm diversity in the Caribbean Sea. Marine Biodiversity, 41(2): 261‑285.
https://doi.org/10.1007/s12526-010-0053-0
Arocha, F. et Ortiz, M. 2006. 2.1.8.1 Description du voilier (SAI). In ICCAT, éd. Manuel de l’ICCAT
Commission internationale pour la conservation des thonidés de l’Atlantique 2006-2016 - Publications
ICCAT [en ligne]. Mise à jour 2016., p. 151‑164. ICCAT. (disponible sur
https://www.iccat.int/Documents/SCRS/Manual/CH2/2_1_8_1_SAI-FRA.pdf).
Astrou, A., Bouchon, C., Bouchon-Navaro, Y., Reynal, L. et Brugneaux, S. 2018. Inventaire des zones
fonctionnelles pour les ressources halieutiques dans les eaux sous juridiction française : inventaire des zones
fonctionnelles dans les Antilles françaises. , p. 1‑131. Agence Française pour la Biodiversité. (disponible
sur http://www.guadeloupe-parcnational.fr/fr/download/file/fid/1954).
Aubé, M. 1999. Évaluation sommaire de la situation des mangroves de la côte nord haïtienne. Moncton,
Canada, Université de Moncton, Canada. (Mémoire de Maîtrise en études de l’Environnement). (disponible
sur http://docplayer.fr/40275082-Nord-haitienne-evaluation-sommaire-de-la-situation-des-mangroves-dela-cote-these-de-maitrise-faculte-des-etudes.html).
Augier, D. 2010. Les écosystèmes marins de la Caraïbe : identification, diffusion et modes de gestion. Études
caribéennes [en ligne], 4343: 1‑12. https://doi.org/10.4000/etudescaribeennes.4343
Bagnis, R. 1981. L’ichtyosarcotoxisme de type ciguatera : phénomène complexe de biologie marine et
humaine. Oceanologica Acta, 4(3): 375‑387.
Barlow, G.W. 1975. On the sociobiology of some hermaphroditic serranid fishes, the hamlets, in Puerto Rico.
Marine Biology, 33(4): 295‑300. https://doi.org/10.1007/bf00390567
Bouchon, C., Bouchon-Navaro, Y., Legendre, P., Louis, M., Neudy, J.-B. et Celestin, W. 2006. Diagnostic
Écologique des Récifs Coralliens de la Région de Port-au-Prince à Saint-Marc (République d’Haïti).
Conjonction - La revue franco-haïtienne de l’Institut Français d’Haïti, 213‑214: 95‑135.
Bouchon-Navaro, Y., Bouchon, C., Louis, M., Legendre, P., Neudy, J.-B. et Celestin, W. 2006. La Faune
Ichtyologique des Récifs Coralliens de la Côte des Arcadins. Conjonction - La revue franco-haïtienne de
l’Institut Français d’Haïti, 213‑214: 137‑159.
Breuil, C. 1999. Haïti : Proposition de politique pour le secteur de la pêche et de l’aquaculture et Revue du
secteur des pêches maritimes. , p. 74. Programme de coopération technique - Rapport de terrain. FAO.
Cadima, E.L. 2002. Manuel d’évaluation des ressources halieutiques. FAO Document technique sur les
pêches 393. Rome, FAO. 160 p. (disponible sur http://www.fao.org/3/a-x8498f.pdf).
Cervigón, F., R., Cipriani, R., Fischer, W., Garibaldi, L., Hendrickx, M., Lemus, A.J., Márquez, R. et
al. 1993. Field Guide to the commercial marine and brackish-water resources of the northern coast of
south
america.
Rome,
FAO,
CEC,
NORAD.
513
p.
(disponible
sur
http://www.fao.org/docrep/pdf/010/t0544e/t0544e.zip).
Cherbonnier, G. 1988. Échinodermes : Holothurides. La faune de Madagascar n°70. Paris, Muséum National
d’Histoire Naturelle (Paris). 292 p. (disponible sur https://horizon.documentation.ird.fr/exldoc/pleins_textes/divers12-05/25111.pdf).
Cheung, W.W.L., Pitcher, T.J. et Pauly, D. 2005. A fuzzy logic expert system to estimate intrinsic extinction
vulnerabilities of marine fishes to fishing. Biological Conservation, 124(1): 97‑111.
https://doi.org/10.1016/j.biocon.2005.01.017
CITES. 2019. Gestion de la Conservation et Commerce des Poissons Marins Ornementaux. p. 1‑7. présenté
à Convention sur le Commerce International des Espèces de Faune et de Flore Sauvage Menacées
�163
d’Extinction - Dix-huitième session de la Conférence des Parties, 17 août 2019, Genève, Suisse. (disponible
sur https://cites.org/sites/default/files/fra/cop/18/doc/F-CoP18-094.pdf).
CITES. 2019. Convention on International Trade in Endangered Species of Wild Fauna and Flora Appendices I, II and III valid from 14 February 2021 [online]. Geneva, Switzerland. [Cited 28 April 2021].
https://cites.org/eng/app/appendices.php
CMS. 2020. Appendices I and II of the Convention on the Conservation of Migratory Species of Wild Animals
(CMS). Effective 22 May 2020 [online]. Bonn, Germany. [Cited 28 February 2021].
https://www.cms.int/en/species/appendix-i-ii-cms
Coleman, F., Koenig, C., R. Huntsman, G., Musick, J., M. Eklund, A., C. McGovern, J., Chapman, R.
et al. 2000. Long-lived Reef Fishes: The Grouper-Snapper Complex. Fisheries, 25: 14‑21.
https://doi.org/10.1577/1548-8446(2000)025<0014:LRF>2.0.CO;2
Colin, P.L. 2012a. Species Case Studies - 12.17 Striped Parrotfish - Scarus iserti and Bullhead Parrotfish Chlorurus sordidus and notes on Other Small Parrotfishes (Scaridae). In Y. Sadovy de Mitcheson & P.L.
Colin, éd. Reef Fish Spawning Aggregations: Biology, Research and Management, p. 502‑507. Fish &
Fisheries Series. Dordrecht, Springer Netherlands. https://doi.org/10.1007/978-94-007-1980-4_12
Colin, P.L. 2012b. Species Case Studies - 12.18 Bigeye Trevally - Caranx sexfasciatus with notes on Other
Jacks (Carangidae). In Y. Sadovy de Mitcheson & P.L. Colin, éd. Reef Fish Spawning Aggregations:
Biology, Research and Management, p. 507‑512. Fish & Fisheries Series. Dordrecht, Springer Netherlands.
https://doi.org/10.1007/978-94-007-1980-4_12
Colin, P.L. et Clavijo, I.J. 2012. Species Case Studies - 12.20 Ocean Surgeonfish - Acanthurus bahianus and
Blue Tang - Acanthurus coeruleus in Puerto Rico. In Y. Sadovy de Mitcheson & P.L. Colin, éd. Reef Fish
Spawning Aggregations: Biology, Research and Management, p. 517‑526. Fish & Fisheries Series.
Dordrecht, Springer Netherlands. https://doi.org/10.1007/978-94-007-1980-4_12
Collette, B.B. et Nauen, C.E. 1983. FAO species catalogue. Vol. 2. Scombrids of the world. An annotated
and illustrated catalogue of tunas, mackerels, bonitos and related species known to date. FAO Fisheries
Synopsis
125.
Rome,
FAO.
137
p.
(disponible
sur
http://www.fao.org/tempref/docrep/fao/009/ac478e/ac478e.zip).
CRFM. 2010. Report of the multidisciplinary survey of the fisheries of Haïti. , p. 31. Belize City, CRFM CEU. (disponible sur
http://www.crfm.int/~uwohxjxf/images/documents/Multidiciplinary_Survey_Report_for_Haiti.pdf).
Damais, G., Verdilhac (de), P., Simon, A. et Célestin, D.S. 2007. Etude de la filière pêche en Haïti et
propositions de stratégie d’appui au secteur. , p. 125. Programme de dévrloppement Rural des zones Centre
et Sud d’Haïti. Ministère de l’agriculture, des ressources naturelles et du développement rural, iram,
INESA.
Delage, N. et Le Pape, O. 2016. Inventaire des zones fonctionnelles pour les ressources halieutiques dans les
eaux sous souveraineté française. Première partie : définitions, critères d’importance et méthode pour
déterminer des zones d’importance à protéger en priorité. , p. 30. Les publications du Pôle halieutique
AGROCAMPUS OUEST. Rennes, France, Agrocampus Ouest Pôle Halieutique. (disponible sur
http://halieutique.agrocampus-ouest.fr/pdf/5647.pdf).
Dodd, C.K., Jr. 1988. Synopsis of the biological data on the Loggerhead Sea Turtle Caretta caretta (Linnaeus
1758). , p. 110. Biological Report. Pringfield, VA, U.S. Fish Wildl. Serv.,US department of Interior.
(disponible sur http://www.fao.org/3/ap959e/ap959e.pdf).
Domeier, M.L. 1994. Speciation in the Serranid Fish Hypoplectrus. Bulletin of Marine Science, 54(1): 103‑
141.
Domeier, M.L. 2012. Revisiting Spawning Aggregations: Definitions and Challenges. In Y. Sadovy de
Mitcheson & P.L. Colin, éd. Reef Fish Spawning Aggregations: Biology, Research and Management, p. 1
‑20. Fish &Fisheries Series. Dordrecht, Springer Netherlands. https://doi.org/10.1007/978-94-007-19804_1
Domeier, M.L. et Clarke, M.E. 1992. A Laboratory Produced Hybrid Between Lutjanus Synagris and
Ocyurus Chrysurus and a Probable Hybrid Between L. Griseus and 0. Chrysurus (Perciformes: Lutjanidae).
Bulletin of Marine Science, 50(3): 501‑507.
�164
Dufour, V. 1998. Etude du Marché des Poissons d’Aquarium et de leur Exploitation dans les pays insulaires.
Ressources marines et commercialisation, Bulletin de la CPS, 2: 6‑11.
Encyclopaedia Universalis. 2020. Mer des Caraïbes et Golfe du Mexique - Hydrologie (d’après Pinot, 1969).
In: Encyclopaedia Universalis France - [en ligne]. [Consulté le 21 février 2020].
https://www.universalis.fr/encyclopedie/caraibes-mer-des-caraibes-et-golfe-du-mexique/5-hydrologie/
FAO. 1978. FAO species identification sheets for fishery purposes. Western Central Atlantic (Fishing area
31). FAO édition. W. Fischer, éd. FAO species identification sheets for fishery purpose. Rome, FAO.
FAO. 2002a. The living marine resources of the Western Central Atlantic. Volume 1: Introduction, molluscs,
crustaceans, hagfishes, sharks, batoid fishes, and chimaeras. FAO SpeciesI dentification Guide for Fishery
Purposes. Rome, FAO. 1‑600 p. (disponible sur http://www.fao.org/3/y4160e/y4160e.pdf).
FAO. 2002b. The living marine resources of the Western Central Atlantic. Volume 2: Bony fishes part 1
(Acipenseridae to Grammatidae). FAO SpeciesI dentification Guide for Fishery Purposes. Rome, FAO.
601‑1374 p. (disponible sur http://www.fao.org/3/y4161e/y4161e.pdf).
FAO. 2002c. The living marine resources of the Western Central Atlantic. Volume 3: Bony fishes part 2
(Opistognathidae to Molidae), sea turtles and marine mammals. FAO SpeciesI dentification Guide for
Fishery Purposes. Rome, FAO. 1375‑2127 p. (disponible sur http://www.fao.org/3/y4162e/y4162e.pdf).
FAO. 2005. La république de Haïti. In: Profil de la pêche par pays [en ligne]. [Consulté le 7 juin 2019].
http://www.fao.org/fi/oldsite/FCP/fr/hti/profile.htm
FAO. 2018. La situation mondiales des pêches et de l’aquaculture - 2018. Rome, FAO. 237 p. (disponible sur
http://www.fao.org/documents/card/en/c/I9540FR).
Favrelière, P. 2008. Diagnostic du secteur de la pêche. Département du Sud-Est. , p. 1‑101. (disponible sur
https://09ffc3fhttp://sites.google.com/site/pcheartisanalehati/).
Felder, D.L., Álvarez, F., W., Goy.J. et Lemaitre, R. 2009. Decapoda (Crustacea) of the Gulf of Mexico,
with Comments on the Amphionidacea. Gulf of Mexico–Origins, Waters, and Biota, p. 1019‑1104.
Biodiversity. College Station, Texas, Texas A&M University Press. (disponible sur
https://decapoda.nhm.org/pdfs/31408/31408.pdf).
Ferreira, B.P., Hosim-Silva, M., Bertoncini, A.A., Coleman, F.C. et Koenig, C.C. 2012. Species Case
Studies - 12.4 Atlantic Goliath Grouper - Epinephelus itajara. In Y. Sadovy de Mitcheson & P.L. Colin,
éd. Reef Fish Spawning Aggregations: Biology, Research and Management, p. 417‑422. Fish & Fisheries
Series. Dordrecht, Springer Netherlands. https://doi.org/10.1007/978-94-007-1980-4_12
Ferry, R.E. et Kohler, C.C. 1987. Effects of Trap Fishing on Fish Populations Inhabiting a Fringing Coral
Reef. North American Journal of Fisheries Management, 7(4): 580‑588. https://doi.org/10.1577/15488659 (1987)7<580:EOTFOF>2.0.CO;2
Flanders Marine Institute. 2018a. Exclusive Economic Zones (200NM), version 10, [en ligne]. [Consulté le
2 août 2019]. https://www.marineregions.org/.
Flanders Marine Institute. 2018b. Maritime Boundaries Geodatabase, version 10. [en ligne]. [Consulté le 2
août 2019]. http://www.marineregions.org/. https://doi.org/10.14284/319
Fournier, M. 2012. L’apport de l’imagerie satellitale à la surveillance maritime. Contribution géographique
et géopolitique. Montpellier, France, Université de Montpellier III. (Thèse de doctorat). (disponible sur
https://core.ac.uk/download/pdf/52628495.pdf).
Friedman, M.A., Fernandez, M., Backer, L.C., Dickey, R.W., Bernstein, J., Schrank, K., Kibler, S. et al.
2017. An Updated Review of Ciguatera Fish Poisoning: Clinical, Epidemiological, Environmental, and
Public Health Management. Marine Drugs, 15(72): 1‑41. https://doi.org/10.3390/md15030072
Froese, R. et Pauly, D. 2019. FishBase. World Wide Web electronic publication. www.fishbase.org,. Froese,
R. and D. Pauly. [Consulté le 4 mai 2020]. www.fishbase.org
GBIF. 2019. Global Biodiversity Information Facility. OCDE. www.gbif.org. [Consulté le 4 mai 2020].
www.gbif.org
GEBCO Compilation Group. 2014. GEBCO world map 2014, [en ligne]. [Consulté le 29 avril 2020].
https://www.gebco.net/data_and_products/printable_maps/documents/gebco_world_map_2014.tif
�165
Gingold, D., B., Strickland, M., J. et Hess, J., J. 2014. Ciguatera Fish Poisoning and Climate Change:
Analysis of National Poison Center Data in the United States, 2001–2011. Environmental Health
Perspectives, 122(6): 580‑586. https://doi.org/10.1289/ehp.1307196
Grace, M.A., Bahnick, M. et Jones, lisa. 2000. A Preliminary Study of the Marine Biota at Navassa Island,
Caribbean Sea. Marine Fisheries review, 62(2): 43‑78.
Guiry, M.D. et Guiry, G.M. 2019. AlgaeBase. World-wide electronic publication, National University of
Ireland, Galway. https://www.algaebase.org; [en ligne]. [Consulté le 30 mars 2020].
https://www.algaebase.org
Harris, P.J. et Collins, M.R. 2000. Age, growth and age at maturity of gag, Mycteroperca microlepis, from
the southeastern United States during 1994-1995. Bulletin of Marine Science, 66(1): 105‑117.
Heemstra, P.C. et Randall, J.E. 1993. FAO species catalogue. Vol. 16. Groupers of the world (Family
Serranidae, Subfamily Epinephelinae). An annotated and illustrated catalogue of the grouper, rockcod,
hind, coral grouper and lyretail species known to date. FAO, éd. FAO Fisheries Synopsis 125. Rome, FAO.
382
p.
(disponible
sur
http://www.fao.org/documents/card/en/c/9d54666b-08d2-522c-b593229651cddc7f/).
Hench, K., Mcmillan, W.O., Betancur-R, R. et Puebla, O. 2017. Temporal changes in hamlet communities
(Hypoplectrus spp., Serranidae) over 17 years. Journal of Fish Biology, 91(5): 1475‑1490.
https://doi.org/10.1111/jfb.13481
Herrera- Moreno, A. et Betancourt- Fernández, L. 2002. Anémonas (Anthozoa : Actiniaria,
Corallimorpharia, Ceriantharia y Zoanthidea) conocidas para la Hispaniola. Ciencia y Sociedad, 27(3): 433
‑452. https://doi.org/10.22206/cys.2002.v27i3.pp439-52
Herrera- Moreno, A. et Betancourt- Fernández, L. 2003. Especies de estomatópodos (crutácea :
malacostraca : stomatopoda) conocidas para la Hispaniola. Ciencia y Sociedad, 28(2): 271‑278.
https://doi.org/10.22206/cys.2003.v28i2.pp271-78
Herrera-Moreno, A. 2014. Contribución del Proyecto Hispabiota Marina al Sistema de Información
Biogeográfica de los Océanos OBIS. I. Equinodermos de la Hispaniola. Reportes de biodiversidad de
programa ECOMAR, 1: 1‑7.
Herrera-Moreno, A. et Betancourt-Fernández, L. 2004. Especies de equinodermos recientes
(Echinodermata : crinoidea: asteroidea: ophiuroidea: echinoidea y holothuroidea) conocidas para la
Hispaniola. Ciencia y Sociedad, 29(3): 506‑533. https://doi.org/10.22206/cys.2004.v29i3.pp506-533
Herrera-Moreno, A. et Betancourt-Fernández, L. 2005. Inventario de la fauna marina de la Hispaniola.
Ciencia y Sociedad, 30(1): 158‑167. https://doi.org/10.22206/cys.2005.v30i1.pp158-167
Hignette, M. 2003. L’Aquariophilie et le Commerce des Poissons d’Ornements. Bull. Soc. zool. Fr., 129(1‑
2): 62‑74.
Hoeksema, B.W., Reimer, J.D. et Vonk, R. 2017. Editorial: biodiversity of Caribbean coral reefs (with a
focus on the Dutch Caribbean). Marine Biodiversity, 47(1): 1‑10. https://doi.org/10.1007/s12526-0170641-3
Holthuis, L.B. 1980. Vol.1- Shrimps and prawns of the world. An annotated Catalogue of Species of Interest
to Fisheries. FAO Fisheries Synopsis 125. Rome, FAO. 271 p (disponible sur http://www.fao.org/3/aac477e.pdf).
Holthuis, L.B. 1991. FAO species catalogue. Vol. 13. Marine lobsters of the world. An annotated and
illustrated catalogue of species of interest to fisheries known to date. FAO Fisheries Synopsis 125. Rome,
FAO. 292 p. (disponible sur http://www.fao.org/tempref/docrep/fao/009/t0411e/t0411e00.pdf).
Hommel, D., Hulin, A., Saignavong, S. et Desbordes, J.M. 1992. Intoxication par le poisson-coffre
(Tetrodotoxine) - A propos d’une intoxication familiale. Médecine d’Afrique Noire, 39(2): 146‑148.
Hooligan, J. 2013. 2.1.7 Description du makaire blanc (WHM). In ICCAT, éd. Manuel de l’ICCAT
Commission internationale pour la conservation des thonidés de l’Atlantique 2006-2016 - Publications
ICCAT
[en
ligne].
Mise
à
jour
2016.,
p.
1‑16.
ICCAT.
(disponible
sur
https://www.iccat.int/Documents/SCRS/Manual/CH2/2_1_7_WHM-FRA.pdf).
�166
Hossen, V., Velge, P., Turquet, J., Chinain, M., Laurent, D. et Krys, S. 2013. La ciguatera : un état des
lieux en France et dans l’Union européenne. Bulletin épidémiologique, santé animale et alimentation,
56(mars): 3‑9.
Huntsman, G.R. et Schaaf, W.E. 1994. Simulation of the Impact of Fishing on Reproduction of a
Protogynous Grouper, the Graysby. North American Journal of Fisheries Management, 14(1): 41‑52.
https://doi.org/10.1577/1548-8675(1994)014<0041:SOTIOF>2.3.CO;2
ICCAT. 2016. ICCAT. 2006-2016. Manuel de l’ICCAT Commission internationale pour la conservation des
thonidés
de
l’Atlantique.
Publications
ICCAT
[en
ligne].
(disponible
sur
https://www.iccat.int/fr/iccatmanual.html).
IEO. 2006a. 2.1.1 Description de l’albacore (YFT). In ICCAT, éd. Manuel de l’ICCAT Commission
internationale pour la conservation des thonidés de l’Atlantique 2006-2016 - Publications ICCAT [en
ligne].
Mise
à
jour
2016.,
p.
1‑27.
ICCAT.
(disponible
sur
https://www.iccat.int/Documents/SCRS/Manual/CH2/2_1_1_YFT-FRA.pdf).
IEO. 2006b. 2.1.2 Description du thon obèse (BET). In ICCAT, éd. Manuel de l’ICCAT Commission
internationale pour la conservation des thonidés de l’Atlantique 2006-2016 - Publications ICCAT [en
ligne].
Mise
à
jour
2016.,
p.
29‑53.
ICCAT.
(disponible
sur
https://www.iccat.int/Documents/SCRS/Manual/CH2/2_1_2_BET-FRA.pdf).
Impact Mer. 2009. Potentiel écologique des mangroves de Martinique - Caractérisation morphologique et
biologique de la frange littorale. , p. 77 + Annexes. Rapport final. Fort-de-France (France), Impact Mer,
DIREN
Martinique.
(disponible
sur
http://www.biodiversitemartinique.fr/sites/default/files/potentiel_ecologique_des_mangroves_de_martinique_impact_mer_2009.
pdf).
IUCN, 2020. The IUCN Red List of threatened species. In: International Union for Conservation of Nature
and Natural Resources [online]. Cambridge, UK [Cited 28 December 2020]. https://www.iucnredlist.org/
Jefferson, T.A., Learherwood, S. et Webber, M.A. 1993. Marine mammals of the world. FAO Species
Identification Field Guide for Fishery Purposes. Rome, FAO. 320 p. (disponible sur
http://www.fao.org/tempref/docrep/fao/009/t0725e/t0725e00.pdf).
Jereb, P. et Roper, C.F.E. 2005. Cephalopods of the world. An annotated and illustrated catalogue of
cephalopod species known to date. Volume 1. Chambered nautiluses and sepioids (Nautilidae, Sepiidae,
Sepiolidae, Sepiadariidae, Idiosepiidae and Spirulidae). FAO Species Catalogue for Fishery Purposes 4.
Rome, FAO. 262 p. (disponible sur http://www.fao.org/tempref/docrep/fao/009/a0150e/a0150e00.pdf).
Jereb, P. et Roper, C.F.E. 2010. Cephalopods of the world. An annotated and illustrated catalogue of
cephalopod species known to date. Volume 2. Myopsid and Oegopsid Squids. FAO Species Catalogue for
Fishery Purposes 4. Rome, FAO. 605 p. (disponible sur http://www.fao.org/3/i1920e/i1920e.pdf).
Karnauskas, M., McClellan, D.B., Wiener, J.W., Miller, M.W. et Babcock, E.A. 2011. Inferring trends in
a small-scale, data-limited tropical fishery based on fishery-independent data. Fisheries Research, 111(1–
2): 40‑52. https://doi.org/10.1016/j.fishres.2011.06.010
Kobara, S., Heyman, W.D., Pittman, S.J. et Nemeth, R.S. 2013. Biogeography of Transient Reef-Fish
Spawning Aggregations in the Caribbean: a synthesis for Future Research and Management. In D.H. Roger
N. Hughes and I. Philip Smith, éd. Oceanography and Marine Biology: An Annual Review, p. 281‑326.
Taylor & Francis. (disponible sur https://uvi.edu/files/documents/Research_and_Public_Service/VIEPSCoR/Research/Kobara_etal_13_BioOfTransientReef-CaribFishSpawningAggregiations.pdf).
Kramer, P., Atis, M., Schill, S., Williams, S., Freid, E., Moore, G., Martinez-Sanchez, J.C. et al. 2016.
Baseline Ecological Inventory for Three Bays National Park, Haiti. , p. 216. The Nature Conservancy:
Report to the Inter-American Development Bank. (disponible sur
https://www.openchannels.org/sites/default/files/literature/Baseline%20Ecological%20Inventory%20for
%20Three%20Bays%20National%20Park%2C%20Haiti.pdf).
Laurec, A. et Le Guen, J.-C. 1981. Dynamique des populations marines exploitées.Tome I Concepts et
modèles. , p. 117. Rapports Scientifiques et Techniques 45. Brest, CNEXO/Centre Océanologique de
Bretagne. (disponible sur https://archimer.ifremer.fr/doc/00000/1126/).
�167
Loftus, W.F. 1992. Lutjanus Ambiguus (Poey), a Natural Intergeneric Hybrid of Ocyurus Chrysurus (Bloch)
and Lutjanus Synagris (Linnaeus). Bulletin of Marine Science, 50(3): 489‑500.
Louis, M., Bouchon, C., Bouchon-Navaro, Y., Legendre, P., Neudy, J.-B. et Celestin, W. 2006. Les
Herbiers de Phanérogames Marines et leurs Peuplements de Poissons dans la Partie Nord de la Baie de
Port-au-Prince. Conjonction - La revue franco-haïtienne de l’Institut Français d’Haïti, 213‑214: 79‑93.
Lourie, S.A., Foster, S., J., Cooper, E.W.T. et Vincent, A.C.J. 2004. A Guide to the Identification of
Seahorses. P.S. and T.N. America, éd. Project Seahorse and TRAFFIC North America Project Seahorse
and TRAFFIC North America. Washington D.C., University of British Columbia and World Wildlife Fund.
114 p. (disponible sur https://cites.unia.es/cites/file.php/1/files/guide-seahorses.pdf).
Macias, J., Wilner, R. et Pérez-Nievas, P. 2014. Programme de développement du secteur de la pêche
Maritime en Haïti (HA-L1096) - Diagnostic et proposition d’investissements. , p. 159. Port-au-Prince,
Ministère de l’Agriculture des Ressources Naturelles et du Développement Rural (MARNDR) - Banque
Interaméricaine de Développement (BID).
MARNDR. 2010. Programme National pour le Développement de la pêche Maritime en Haïti 2010-2014. , p.
28. Port-au-Prince, Haïti, Ministère de l’Agriculture des ressources naturelles et du développement Rural
(MARNDR).
(disponible
sur
http://agriculture.gouv.ht/view/01/IMG/pdf/Texte_Peche__MARNDR_2010.pdf).
Márquez, M., R. 1990. FAO species catalogue. Vol. 11: Sea turtles of the world. An annotated and illustrated
catalogue of sea turtle species known to date. FAO Fisheries Synopsis 125. Rome, FAO. 81 p. (disponible
sur http://www.fao.org/tempref/docrep/fao/009/t0244e/t0244e00.pdf).
Martelly, M.J. 2013. Arrêté ministériel du 10 juillet 2013. Le moniteur - Journal Officiel de la République
d’Haïti, 131: 8‑10.
Mateo, J. et Haughton, M. 2003. A Review of the Fisheries sector of Haiti with Recommendations for its
Stengthening. Gulf and Caribbean Fisheries Institute, 54: 60‑71.
Mathieu, H., Pau, C. et Reynal, L. 2013. Description du thon à nageoires noires (BLF). In ICCAT, éd.
Manuel de l’ICCAT Commission internationale pour la conservation des thonidés de l’Atlantique 20062016 - Publications ICCAT [en ligne]. Mise à jour 2016., p. 1‑27. ICCAT. (disponible sur
https://www.iccat.int/Documents/SCRS/Manual/CH2/2_1_10_7_BLF_FRA.pdf).
McHugh, D.J. 2003. A guide to the seaweed industry. FAO, éd. FAO Fisheries Technical Paper 441. Rome,
FAO. 105 p. (disponible sur http://www.fao.org/3/a-y4765e.pdf).
MdE. 2016. Gouvernement de la République d’Haїti. Cinquième Rapport National d’Haїti sur la Mise en
Oeuvre de la Convention sur la Diversité Biologique. , p. 277. Port-au-Prince, Haïti,
MDE/ANAP/UNEP/GEF/SCDB. (disponible sur https://www.cbd.int/doc/world/ht/ht-nr-05-fr.pdf).
MdE. 2019. Gouvernement de la République d’Haїti. Sixième Rapport National d’Haїti sur la Mise en Oeuvre
de la Convention sur la Diversité Biologique. , p. 199. Port-au-Prince, Haïti, MDE/Convention on
Biological Diversity/PNUD/GEF/6NR. (disponible sur https://www.cbd.int/doc/nr/nr-06/ht-nr-06-fr.pdf).
Miller, J. 2018. Identification de Créneaux Potentiels dans la Filière Pêche Du Parc National des Trois Baies
- Composant #2 : Étude de Faisabilité des Maricultures. , p. 53. Limonade, Haïti, ANAP, BID.
Miller, M., Gleason, A., McClellan, D., Piniak, G., Willams, D., Weiner, J.W., Gude, A. et al. 2008. The
state of coral reef ecosystems of Navassa Island. The state of coral reef ecosystems of Navassa Island, p.
117‑129. Miami, FL, USA, NOAA, National Marine Fisheries Service, Southeast Fisheries Service.
(disponible
sur
https://www.researchgate.net/profile/David_Mcclellan4/publication/265658998_The_state_of_coral_reef
_ecosystems_of_Navassa_Island/links/54182f160cf2218008bf2b86/The-state-of-coral-reef-ecosystemsof-Navassa-Island.pdf).
Miller, M., Schwagerl, J., McClellan, D., Vermeij, M. et Williams, D. 2005. The State of Coral Reef
Ecosystems of Navassa Island. The State of Coral Reef Ecosystems of Navassa Island, p. 135‑149. NOAA
Technical Memorandum NOS NCCOX. Silver Spring, USA, NOAA/NCCOS Center for Coastal
Monitoring
and
Assessment’s
Biogeography
Team.
(disponible
sur
https://www.researchgate.net/profile/David_Mcclellan4/publication/237429626_The_State_of_Coral_Re
ef_Ecosystems_of_Navassa_Island/links/02e7e52979b5120de1000000/The-State-of-Coral-ReefEcosystems-of-Navassa-Island.pdf).
�168
Miller, M.W., éd. 2003. Status of reef resources of Island: Cruise report Nov. 2002. NOAA Technical
Memorandum NMFS-SEFSC-501. Miami, FL, USA, U.S. Department of Commerce, NOAA National
Marine Fisheries Service Southeast Fisheries Science Center. 119 p. (disponible sur
ftp://ftp.library.noaa.gov/noaa_documents.lib/NMFS/SEFSC/TM_NMFS_SEFSC/NMFS_SEFSC_TM_5
01.pdf).
Miller, M.W. et Gerstner, C.L. 2002. Reefs of an uninhabited Caribbean island: fishes, benthic habitat, and
opportunities to discern reef fishery impact. Biological Conservation, 106(1): 37‑44.
https://doi.org/10.1016/S0006-3207(01)00227-0
Miller, M.W., Mc Clellan, D.B. et Bégin, C. 2003. Observations on Fisheries Activities at Navassa Island.
Marine Fisheries review, 65(3): 43‑49.
Miller, M.W., McClellan, D.B., Wiener, J.W. et Stoffle, B. 2007. Apparent rapid fisheries escalation at a
remote
Caribbean
island.
Environmental
Conservation,
34(2):
92‑94.
https://doi.org/10.1017/S0376892907003852
Miloslavich, P., Díaz, J.M., Klein, E., Alvarado, J.J., Díaz, C., Gobin, J., Escobar-Briones, E. et al. 2010.
Marine Biodiversity in the Caribbean: Regional Estimates and Distribution Patterns. PLOS ONE, 5(8): 1‑
25. https://doi.org/10.1371/journal.pone.0011916
Monticini, P. 2010. The Ornemental Fish Trade Production and Commerce of Ornemental Fish: TechnicalManegerial and legislative aspects. GLOBEFISH Research Programme. Rome, FAO. 134 p. (disponible
sur http://www.fao.org/in-action/globefish/publications/details-publication/en/c/347680/).
Morain, A.K. 2016. Identification des enjeux de la littoralisation liés à l’environnement marin au niveau de
la commune de Cité le Soleil, Haiti. , p. 1‑83. mémoire de fin d’étude. Port-au-Prince, Haïti, Université
Caraïibe (UC)- Agronomie / ressources Naturelles. (disponible sur
https://www.memoireonline.com/01/17/9555/m_Identification-des-enjeux-de-la-littoralisation-lies--lenvironnement-marin-au-niveau-de-la-commu.html).
Nakamura, I. et Parin, N.V. 1993. FAO species catalogue. Vol. 15. Snake mackerels and cutlassfishes of the
world (Families Gempylidae and Trichiuridae). An annotated and illustrated catalogue of the snake
mackerels, snoeks, escolars, gemfishes, sackfishes, domine, oilfish,cutlassfishes, scabbardfishes, hairtails,
and frostfishes known to date. FAO Fisheries Synopsis 125. Rome, FAO. 136 p. (disponible sur
http://www.fao.org/tempref/docrep/fao/009/t0539e/t0539e.zip).
Nemeth, R. 2009. Chapter 4 - Dynamics of Reef Fish and Decapod Crustacean Spawning Aggregations:
Underlying Mechanisms, Habitat Linkages, and Trophic Interactions. In I. Nagelkerken, éd. Ecological
Connectivity among Tropical Coastal Ecosystems, p. 73‑134. London, Springer Dordrecht Heidelberg.
https://doi.org/10.1007/978-90-481-2406-0_4
Nemeth, R.S. 2012. Species Case Studies - 12.3 Red Hind - Epinephelus guttatus. In Y. Sadovy de Mitcheson
& P.L. Colin, éd. Reef Fish Spawning Aggregations: Biology, Research and Management, p. 412‑417. Fish
&Fisheries Series. Dordrecht, Springer Netherlands. https://doi.org/10.1007/978-94-007-1980-4_12
Nielse, J.G., Cohen, D.M., Markle, D.F. et Robins, C.R. 1999. FAO species catalogue. Vol. 18. Ophidiiform
fishes of the world (Order Ophidiiformes). An annotated and illustrated catalogue of pearlfishes, cusk-eels,
brotulas and other ophidiiform fishes known to date. FAO Fisheries Synopsis 125. Rome, FAO. 178 p.
(disponible sur http://www.fao.org/tempref/docrep/fao/009/x3930e/x3930e.zip).
OBIS. 2018. Ocean Biogeographic Information System. Intergovernmental Oceanographic Commission of
UNESCO. www.iobis.org. [Consulté le 2 juillet 2018]. https://obis.org/
Ortiz Gomez, E.P. 2011. Biologia reproductiva del pepino de mar Holothuria (Selenkothuria) glaberrima
Selenka, 1867 en Santa Marta, Colombia. Santa Marta, Colombia, Universidad Nacional de Columbia,
Facultad de Ciencias. (disponible sur http://bdigital.unal.edu.co/8154/1/1190351.2011.pdf).
Paddack, M.J., Reynolds, J.D., Aguilar, C., Appeldoorn, R.S., Beets, J., Burkett, E.W., Chittaro, P.M.
et al. 2009. Recent Region-wide Declines in Caribbean Reef Fish Abundance. Current Biology, 19(7): 590
‑595. https://doi.org/10.1016/j.cub.2009.02.041
Palomares, M.L.D. et Pauly, D. 2019. SeaLifeBase. World Wide Web electronic publication.
www.sealifebase.org, version (08/2019). Palomares, M.L.D. ,Pauly, D. [Consulté le 4 mai 2020].
www.sealifebase.org
�169
Pawson, D.L. et Caycedo, I.E. 1980. Holothuria (Thymiosycia) thomasi New species, a large caribbean coral
reef inhabiting sea cucumber (Echinodermata : Holothuroidea). Bulletin of Marine Science, 30(2): 454‑
459.
Piniak, G.A., Addison, C.M., Degan, B.P., Uhrin, A.V. et Viehman, T.S. 2006. Characterization of Navassa
National Wildlife Refuge: A preliminary report for NF-06-05 (NOAA ship Nancy Foster, April 18-30,
2006). , p. 1‑48. NOAA Technical Memorandum NOS NCCOS 38. Beaufort, NC, USA, Center for Coastal
Fisheries
and
Habitat
Research
NOAA.
(disponible
sur
https://repository.library.noaa.gov/view/noaa/17771).
Poli, M.A., Lewis, R.J., Dickey, R.W., Musser, S.M., Buckner, C.A. et Carpenter, L.G. 1997.
Identification of Caribbean ciguatoxins as the cause of an outbreak of fish poisoning among U.S. soldiers
in Haiti. Toxicon, 35(5): 733‑741.
Poupin, J. 2018. Les Crustacés décapodes des Petites Antilles, avec de nouvelles observations pour Saint
Martin, la Guadeloupe et la Martinique - Liste documentée. Patrimoines naturels 77. Paris, Musée National
d’Histoire
Naturelle.
264
p.
(disponible
sur
http://sciencepress.mnhn.fr/sites/default/files/documents/en/cpn77-listedoc.pdf).
Purcell, S.W., Samyn, Y. et Conand, C. 2012. Commercially important sea cucumbers of the world. FAO
Species Catalogue for Fishery Purposes 6. Rome, FAO. 150 p. (disponible sur
http://www.fao.org/3/i1918e/i1918e.pdf).
Ramdeen, R., Belhabib, D., Harper, S. et Zeller, D. 2012a. Reconstruction of total marine fisheries catches
for Haïti and Navassa Island (1950-2010). In Z.K. Harper S Boonzaier L, Le Manach F, Pauly D. and Zeller
D., éd. Fisheries catch reconstructions: Islands, Part III. Fisheries Centre, University of British Columbia,
p. 37‑45. Fisheries Centre Research Reports 20. Fisheries Centre, University of British Columbia.
(disponible
sur
https://open.library.ubc.ca/cIRcle/collections/facultyresearchandpublications/52383/items/1.0353175).
Ramdeen, R., Harper, S., Frotté, L., Lingard, S., Smith, N., Zylich, K., Zeller, D. et al. 2012b.
Reconstructed Total Catches by the Marine Fisheries of Small Island States in the Wider Caribbean (1950
– 2010). Proceedings of the 65th Gulf and Caribbean Fisheries Institute. p. 69‑75. présenté à 65th Gulf
and Caribbean Fisheries Institute, 5 novembre 2012, Santa Marta, Colombia. (disponible sur
http://proceedings.gcfi.org/proceedings/reconstructed-total-catches-by-the-marine-fisheries-of-smallisland-states-in-the-wider-caribbean-1950-2010/?_sfm_volume=65&sf_paged=16).
ReefCheck. 2013. Habitats benthiques de Port-Salut: Cartographie, Évaluation, Zônage pour la gestion
durable des côtes et la réduction des désastres. , p. 59. ReefCheck Fundation.
Regimbart, A., Guitton, J. et Le Pape, O. 2018. Zones fonctionnelles pour les ressources halieutiques dans
les eaux sous souveraineté française. Deuxième partie : Inventaire. Rapport d’étude. , p. 175. Les
publications du Pôle halieutique AGROCAMPUS OUEST 46. Agrocampus Ouest Pôle Halieutique.
(disponible sur http://halieutique.agrocampus-ouest.fr/pdf/5864.pdf).
Reverte, L., Soliño, L., Carnicer, O., Diogene, J. et Campas, M. 2014. Alternative Methods for the
Detection of Emerging Marine Toxins: Biosensors, Biochemical Assays and Cell-Based Assays. Marine
Drugs, 12(12): 5719‑5763. https://doi.org/10.3390/md12125719
Rhyne, A.L., Tlusty, M.F., Schofield, P.J., Kaufman, L., Morris, J.A., Jr. et Bruckner, A.W. 2012.
Revealing the Appetite of the Marine Aquarium Fish Trade: The Volume and Biodiversity of Fish Imported
into the United States. PLOS ONE, 7(5): 1‑9. https://doi.org/10.1371/journal.pone.0035808
Rhyne, A.L., Tlusty, M.F., Szczebak, J.T. et Holmberg, R.J. 2017. Expanding our understanding of the
trade in marine aquarium animals. PeerJ, 5: 1‑36. https://doi.org/10.7717/peerj.2949
RITMO. 2018. Réseau d’Information sur les Tortues Marines d’outremer- RITMo : http://www.reseautortues-marines.org/. http://www.reseau-tortues-marines.org/
Roberts, C.M., McClean, C.J., Veron, J.E.N., Hawkins, J.P., Allen, G.R., McAllister, D.E., Mittermeier,
C.G. et al. 2002. Marine Biodiversity Hotspots and Conservation Priorities for Tropical Reefs. Science,
295(5558): 1280‑1284. https://doi.org/10.1126/science.1067728
�170
Robertson, D.R. et Warner, R.R. 1978. Sexual patterns in the Labroid fishes of the Western Caribbean, II :
The Parrotfishes (Scaridae). Smithsonian Contribution to zoology 255. Washington, Simthsonian
Institution Press. 26 p. (disponible sur https://repository.si.edu/handle/10088/5279).
Sadovy de Mitcheson, Y. 2016. Mainstreaming Fish Spawning Aggregations into Fishery Management Calls
for a Precautionary Approach. BioScience, 66(4): 295‑306.
Sadovy de Mitcheson, Y. et Colin, P.L. 2012. Species Case Studies - Appendix : Species that form Spawning
Aggregations, Section A. In Y. Sadovy de Mitcheson & P.L. Colin, éd. Reef Fish Spawning Aggregations:
Biology, Research and Management, p. 595‑600. Fish & Fisheries Series 35. Dortrecht, The Netherlands,
Springer.
Sadovy de Mitcheson, Y., Colin, P.L. et Sakaue, J. 2012. Species Case Studies - 12.10 Blacktail Snapper
with Notes on Other Species of Atlantic and Indo-Pacific Snappers - (Lutjanidae). In Y. Sadovy de
Mitcheson & P.L. Colin, éd. Reef Fish Spawning Aggregations: Biology, Research and Management, p.
458‑468. Fish & Fisheries Series. Dordrecht, Springer. https://doi.org/10.1007/978-94-007-1980-4_12
Sadovy de Mitcheson, Y., Heppel, S.A. et Colin, P.L. 2012. Species Case Studies - 12.6 Nassau Grouper Epinephelus striatus. In Y. Sadovy de Mitcheson & P.L. Colin, éd. Reef Fish Spawning Aggregations:
Biology, Research and Management, p. 429‑439. Fish &Fisheries Series. Dordrecht, Springer Netherlands.
https://doi.org/10.1007/978-94-007-1980-4_12
Sadovy de Mitcheson, Y. et Liu, M. 2008. Functional hermaphroditism in teleosts. Fish and Fisheries, 9(1):
1‑43. https://doi.org/10.1111/j.1467-2979.2007.00266.x
Saffache, P. 2006. Le milieu marin haïtien : chronique d’une catastrophe écologique. Études caribéennes,
267(5 | Décembre 2006): 1‑6.
SCRFA. 2020. Science and Conservation of Fish Aggregations (SCRFA) - Fish Aggregation Database https://www.scrfa.org/database/. [Consulté le 3 février 2020]. https://www.scrfa.org/database/
South, A. 2011. rworldmap: A New R package for Mapping Global Data. The R journal, 3(1): 35‑43.
Stevens, C.H., Croft, D.P., Paull, G.C. rt Tyler, C.R. 2017. Stress and welfare in ornamental fishes: what
can be learned from aquaculture?
Journal of Fish Biology, 91(2): 409‑428.
https://doi.org/10.1111/jfb.13377
Vallès, H. 2015. A Snapshot View of the Moored Fish Aggregating Device (FAD) Fishery in South Haiti. p.
427‑435. présenté à 68th Gulf and Caribbean Fisheries Institute November 9 - 13, 2015, 2015, Panama
City, Panama. (disponible sur http://proceedings.gcfi.org/proceedings/a-snapshot-view-of-the-mooredfish-aggregating-device-fad-fishery-in-south-haiti/?_sfm_volume=68&sf_paged=8).
Vallès, H. 2018. Analyse des données de pêche maritime collectées entre 2007 et 2014 dans le Département
du Sud-est d’Haïti dans le cadre du Projet de Renforcement de la Pêche Maritime dans le Sud-est d’Haïti.
, p. 98. Damien. Haiti, BID, MARNDR.
Vallès, H. et Wilner, R. 2009. A Preliminary View of the Artisanal Fishery in the Southeast of Haiti - Abstract.
p. 556‑556. présenté à 62nd Gulf and Caribbean Fisheries Institute - November 2 - 6, 2009, 2009, Cumana,
Venezuela. (disponible sur http://proceedings.gcfi.org/proceedings/a-preliminary-view-of-the-artisanalfishery-in-the-southeast-of-haiti/?_sfm_volume=62).
Vendeville, P. 1990. Tropical Shrimp fisheries types of fishing gears used and their selectivity. FAO Fisheries
Technical paper 261. Rome, FAO. 75 p. (disponible sur https://www.documentation.ird.fr/hor/fdi:31399).
Vendeville, P., Rosé, J. et Viera, A. 2008. Durabilité des activités Halieutiques et maintien de la biodiversité
en Guyane. , p. 318. Rapport final de Convention CPER- DocUP 2000- 2006. Sète, France, Ifremer
Laboratoire
Ressources
Halieutiques
de
Guyane.
(disponible
sur
https://archimer.ifremer.fr/doc/00085/19595/).
Vermeij, M.J.A. 2003. Chapter 7: Coral population structure of Navassa Island. In M.W. Miller, éd. Status of
Reef Resources of Navassa Island: Cruise Report Nov. 2002, p. 66‑74. NOAA Technical Memorandum
NMFS-SEFSC-5. Miami, Florida, June 2003, U.S. DEPARTMENT OF COMMERCE National Oceanic
and Atmospheric Administration National Marine Fisheries Service Southeast Fisheries Science Center.
(disponible
sur
�171
ftp://ftp.library.noaa.gov/noaa_documents.lib/NMFS/SEFSC/TM_NMFS_SEFSC/NMFS_SEFSC_TM_5
01.pdf).
VertNet. 2019. VertNet , Vertebrates Network,NSF-funded collaborative project. http://vertnet.org/.
[Consulté le 4 mai 2020]. http://vertnet.org/
Warner, R.R. 2012. Species Case Studies - 12.14 Bluehead Wrasse - Thalassoma bifasciatum. In Y. Sadovy
de Mitcheson & P.L. Colin, éd. Reef Fish Spawning Aggregations: Biology, Research and Management, p.
487‑490. Fish & Fisheries Series 35. Dordrecht, Springer Netherlands. https://doi.org/10.1007/978-94-0071980-4_12
Warner, R.R. et Robertson, D.R. 1978. Sexual patterns in the Labroid fishes of the Western Caribbean, I :
The Wrasses (Labridae). Simthsonian contributions to zoology 254. Washington, Simthsonian Institution
Press. 27 p. (disponible sur https://repository.si.edu/handle/10088/5280).
Whitehead, P.J.P. 1985. FAO species catalogue. Vol. 7. Clupeoid fishes of the world. An annotated and
illustrated catalogue of the herrings, sardines, pilchards, sprats, anchovies and wolf-herrings. Part 1 Chirocentridae, Clupeidae and Pristigasteridae. FAO Fisheries Synopsis 125. Rome, FAO. 303 p.
(disponible sur http://www.fao.org/tempref/docrep/fao/009/ac482e/ac482e.zip).
Whitehead, P.J.P., Nelson, G.J. et Wongratana, T. 1988. FAO species catalogue. Vol. 7. Clupeoid fishes of
the world (Suborder Clupeoidei). An annotated and illustrated catalogue of the herrings, sardines,
pilchards, sprats, anchovies and wolf-herrings. Part 2 - Engrauliidae. FAO Fisheries Synopsis 125. Rome,
FAO. 305‑579 p. (disponible sur http://www.fao.org/tempref/docrep/fao/009/t0835e/t0835e.zip).
Wiener, J. 2013. Toward the Development of Haiti’s System of Marine Protected Areas (MPAs) - An
Ecosystem Services Assessment for the Creation of Haiti’s System of MPAs, rev.1 - ReefFix, An Integrated
Coastal Zone Management (ICZM) Ecosystem Services Valuation and Capacity Building Project for the
Caribbean. , p. 1‑35. Port-au-Prince, Haïti, FoProBiM - ReefFix. (disponible sur
http://foprobim.org/uploads/3/5/1/1/35111927/haiti_reeffix_2013_final_rev_1.pdf).
Wiener, J.W. 2014. Rapid Assessment of Haiti’s Mangroves. , p. 1‑33. Port-au-Prince, Haïti, Ministère de
l’environnement - Fondation pour la Protection de la Biodiversité Marine (FoProBiM). (disponible sur
https://foprobim.org/uploads/3/5/1/1/35111927/haiti_national_mangrove_report_final.pdf).
Wilner, R. 2004. Baseline Study of the Fishing Industry on the West Coast oh Haïti. Cave Hill Campus,
Wanstead, Barbade, University of the West Indies. (Reserarch paper for the Degree of Master of Science
in Natural Resource Management)
WoRMS Editorial Board. 2019. World Register of Marine Species. Available from
https://www.marinespecies.org [en ligne]. [Consulté le 4 février 2019]. https://www.marinespecies.org
�172
ANNEXE I
Liste détaillée des espèces marines ayant été signalées en Haïti dans la littérature ou dans les bases de
données internationales sur la biodiversité
Les espèces retenues dans l'inventaire réalisé pour cette étude sont classées par niveaux systématiques
supérieurs (phylum, subphylum, classe, infra- classe, ordre, subordre) les plus parlant au lecteur et par ordre
alphabétique des familles et des noms scientifiques d'espèce.
Sont indiqués également le nom vernaculaire en français, le cas échéant en anglais (En) et le nom vernaculaire
en créole haïtien quand il a pu être renseigné.
Sont indiqués ensuite l'identifiant numérique (AlphiaID) de l'espèce dans la base mondiale de taxonomie
WoRMS49(dans le cas où le nom de l'espèce n'est pas répertorié dans la base WoRMS, le code est absent); le
code alpha-3 (Alph3), un code alphabétique à trois lettres propre à chacun des 12 871 taxons de la liste ASFIS
des espèces retenues en fonction de leur intérêt pour la pêche et l'aquaculture pour les besoins des statistiques
des pêches de la FAO. Dans le cas où l'espèce ou l'un de ses synonymes connus ne figure pas dans la liste
ASFIS alors le code du genre de l'espèce ou celui du genre d'un de ses synonymes est adopté et figure en
italique, lorsque celui-ci fait défaut, le code de la famille est adopté, enfin si la famille ne figure pas dans la
liste ASFIS, le code du niveau taxonomique immédiatement supérieur de la liste ASFIS est adopté et figure en
italique (par exemple, SQY pour Squillidae, MZZ pour poissons osseux, DPX pour une espèce de poisson
osseux perciforme démersale, etc.). Un astérisque à droite du nom scientifique indique que l'espèce bien que
non signalée dans la ZEE haïtienne, sa présence est hautement probable au regard des signalements dans les
zones de proximité immédiate.
Les quatre colonnes suivantes font référence au signalement de l'espèce dans les ZEE d'Haïti et de l'enclave
des États-Unis d’Amérique et de l'île de la Navase dans les bases de données consultées:FB-SLB: Fishbase ou
Sealifebase ou un article scientifique contribuant à la connaissance de la biodiversité dans la zone d'inventaire;
FAO: au moins un des 3 ouvrages cités; OBIS: base OBIS; GBIF: base GBIF50).
La colonne «FB-SLB» est particulière:
- si Haïti ou l’île de la Navase sont signalés dans l'onglet «Occurrence» de l'espèce dans Fishbase ou
Sealifebase et si au moins l'une des occurrences est datée, alors l'année la plus ancienne est indiquée ;
- si Haïti figure dans la liste fournie dans l'onglet «pays» et si une référence y est rattachée (cas le plus fréquent),
alors l'année de cette référence sera indiquée en italique ;
- si Haïti ou l’île de la Navase figure dans les occurrences sans date et/ou si Haïti figure dans la liste des pays
mais qu'aucune référence bibliographique n'est rattachée, sa présence est codée par «1» ;
-si l'espèce est absente dans la zone d'inventaire des onglets «pays» et «occurrences», son absence est codée
par «0» ;
- si l'espèce est répertoriée mais aucune information n'est donnée sur sa localisation (les onglets «pays» et
«occurrence» sont alors désactivés), elle est codée par «.» ; et
- si l'espèce n'est pas répertoriée dans la base, elle est codée par un vide.
Dans les quatre derniers cas, si l'espèce a été signalée en Haïti dans l'un des documents dont les références ont
été citées et dont la liste figure ci-après; l'année de référence suivie parfois d'une lettre sera alors indiquée en
italique et soulignée.
Dans le cas des colonnes OBIS et GBIF, si l'espèce a été signalée et qu'une date de signalement a été
renseignée, l'année de la date la plus ancienne est inscrite, si aucune date de signalement n'a été donnée, le
code «1» est inscrit; s'il n'y a aucun signalement sur les ZEE d'Haïti et de l’île de la Navase, le code est «0»;
enfin si l'espèce n'est pas répertoriée dans la base, le code est un vide.
La dernière colonne renseigne sur le peuplement auquel a pu être rattaché l'organisme; dans certain cas où les
informations ont été trop parcellaires, il n'a pas été possible de déterminer à quel peuplement se rattachait
l'espèce et le code est absent (vide).
Cette liste indiquant les noms scientifiques en conformité avec la taxonomie de WoRMS en vigueur peut
contribuer à établir des référentiels de données sur les activités halieutiques et sur la biodiversité marine.
49 Cet identifiant est utile dans la recherche d'espèces sur des bases de données internationales sur la biodiversité et leur utilisation par
programmation (par exemple, cartographie).
50 L'occurrence d'une espèce dans les bases OBIS ou GBIF n'implique pas qu'elle soit géo référencée.
�173
2002: HERRERA- MORENO, A. & BETANCOURT- FERNÁNDEZ, L. 2002. Anémonas (Anthozoa: Actiniaria, Corallimorpharia,
Ceriantharia y Zoanthidea) conocidas para la Hispaniola. Ciencia y Sociedad, 27, 433-452.
200351: HERRERA- MORENO, A. & BETANCOURT- FERNÁNDEZ, L. 2003. Especies de estomatópodos (crutácea: malacostraca:
stomatopoda) conocidas para la Hispaniola. Ciencia y Sociedad, 28, 271-278.
2004a: WILNER, R. 2004. Baseline Study of the Fishing Industry on the West Coast oh Haïti. Master of Science in Natural Resource
Management, University of the West Indies.
2004b: HERRERA-MORENO, A. & BETANCOURT-FERNÁNDEZ, L. 2004. Especies de equinodermos recientes (Echinodermata:
crinoidea: asteroidea: ophiuroidea: echinoidea y holothuroidea) conocidas para la Hispaniola. Ciencia y Sociedad, 29, 506533.
2006a: BOUCHON-NAVARO, Y., BOUCHON, C., LOUIS, M., LEGENDRE, P., NEUDY, J.-B. & CELESTIN, W. 2006. La Faune
Ichtyologique des Récifs Coralliens de la Côte des Arcadins. Conjonction - La revue franco-haïtienne de l'Institut Français
d'Haïti, 213-214, 137-159.
2006b: BOUCHON, C., BOUCHON-NAVARO, Y., LEGENDRE, P., LOUIS, M., NEUDY, J.-B. & CELESTIN, W. 2006. Diagnostic
Écologique deq Récifs Coralliens de la Région de Port-au-Prince à Saint-Marc (République d'Haïti. Conjonction - La revue
franco-haïtienne de l'Institut Français d'Haïti, 213-214, 95-135.
2006c: LOUIS, M., BOUCHON, C., BOUCHON-NAVARO, Y., LEGENDRE, P., NEUDY, J.-B. & CELESTIN, W. 2006. Les
Herbiers de Phanérogames Marines et leurs Peuplements de Poissons dans la Partie Nord de la Baie de Port-au-Prince.
Conjonction - La revue franco-haïtienne de l'Institut Français d'Haïti, 213-214, 79-93.
2011: ALVARADO, J. J. 2011. Echinoderm diversity in the Caribbean Sea. Marine Biodiversity, 41, 261-285
2012: PURCELL, S. W., SAMYN, Y. & CONAND, C. 2012. Commercially important sea cucumbers of the world. FAO Species
Catalogue for Fishery Purposes. Rome: FAO.
2013: REEFCHECK 2013. Habitats benthiques de Port-Salut: Cartographie, Évaluation, Zônage pour la gestion durable des côtes et la
réduction des désastres: ReefCheck Fundation.
2016: KRAMER, P., ATIS, M., SCHILL, S., WILLIAMS, S., FREID, E., MOORE, G., MARTINEZ-SANCHEZ, J. C., BENJAMIN,
F., CYPRIEN, L. S., ALEXIS, J. R., GRIZZLE, R., WARD, K., MARKS, K. & GRENDA, D. 2016. Baseline Ecological
Inventory for Three Bays National Park, Haiti. In: SUNDARAM, R. & WILLIAMS, S. (eds.) The Nature Conservancy:
Report to the Inter-American Development Bank
2018a: VALLÈS, H. 2018. Analyse des données de pêche maritime collectées entre 2007 et 2014 dans le Département du Sud-est
d'Haïti dans le cadre du Projet de Renforcement de la Pêche Maritime dans le Sud-est d'Haïti.
2018b: MILLER, J. 2018. Identification de Créneaux Potentiels dans la Filière Pêche Du Parc National des Trois Baies - Composant
#2: Étude de Faisabilité des Maricultures. Limonade, Haïti: ANAP, BID.
51 Cette publication indique l'année et l'auteur des premières signalisations des espèces en Haïti qui sont antérieures à 2003.
�174
famille
Poissons osseux
Acanthuridae
Achiridae
Acropomatidae
Albulidae
Anguillidae
Anomalopidae
Anoplogastridae
Antennariidae
Apogonidae
Argentinidae
Ariommatidae
Atherinidae
Atherinopsidae
Aulostomidae
Balistidae
Bathyclupeidae
Batrachoididae
Belonidae
Nom scientifique
Acanthurus bahianus Castelnau, 1855
Acanthurus chirurgus (Bloch, 1787)
Acanthurus coeruleus Bloch & Schneider, 1801
Paracanthurus hepatus (Linnaeus, 1766)
Zebrasoma velifer (Bloch, 1795)
Achirus lineatus (Linnaeus, 1758)
Trinectes inscriptus (Gosse, 1851)
Neoscombrops atlanticus Mochizuki & Sano, 1984
Albula vulpes (Linnaeus, 1758)
Anguilla rostrata (Lesueur, 1817)
Kryptophanaron alfredi Silvester & Fowler, 1926
Anoplogaster cornuta (Valenciennes, 1833)
Antennarius multiocellatus (Valenciennes, 1837)
Antennarius pauciradiatus Schultz, 1957
Antennarius striatus (Shaw, 1794)
Antennatus bermudensis (Schultz, 1957)
Histrio histrio (Linnaeus, 1758)
Apogon binotatus (Poey, 1867)
Apogon gouldi Smith-Vaniz, 1977
Apogon lachneri Böhlke, 1959
Apogon maculatus (Poey, 1860)
Apogon mosavi Dale, 1977
Apogon phenax Böhlke & Randall, 1968
Apogon planifrons Longley & Hildebrand, 1940
Apogon quadrisquamatus Longley, 1934
Apogon townsendi (Breder, 1927)
Astrapogon puncticulatus (Poey, 1867)
Astrapogon stellatus (Cope, 1867)
Phaeoptyx conklini (Silvester, 1915)
Phaeoptyx pigmentaria (Poey, 1860)
Phaeoptyx xenus (Böhlke & Randall, 1968)
Argentina georgei Cohen & Atsaides, 1969
Glossanodon pygmaeus Cohen, 1958
Ariomma bondi Fowler, 1930
Ariomma regulus (Poey, 1868)
Atherinomorus stipes (Müller & Troschel, 1848)
Hypoatherina harringtonensis (Goode, 1877)
Melanorhinus microps (Poey, 1860)
Aulostomus maculatus Valenciennes, 1841
Balistes capriscus Gmelin, 1789
Balistes vetula Linnaeus, 1758
Canthidermis maculata (Bloch, 1786)
Canthidermis sufflamen (Mitchill, 1815)
Melichthys niger (Bloch, 1786)
Xanthichthys ringens (Linnaeus, 1758)
Bathyclupea argentea Goode & Bean, 1896
Thalassophryne maculosa Günther, 1861
Ablennes hians (Valenciennes, 1846)
Platybelone argalus argalus (Lesueur, 1821)
Strongylura marina (Walbaum, 1792)
Strongylura timucu (Walbaum, 1792)
Tylosurus acus acus (Lacepède, 1803)
nom vernaculaire français
LA FAUNE MARINE – LES VÉRTÉBRÉS
Chirurgien marron
Chirurgien docteur
Chirurgien bayolle
Chirurgien bleu
Chirurgien à voile, Fam Fol
Sole
Sole réticulée
Banane
Anguille d'Amérique
Atlantic flashlight fish (En)
Ogre
Antennaire longue lignes
Dwarf frogfish (En)
Laffe 5 doigts
Island frogfish (En)
Antennaire des Sargasses
Apogon deux barres
Deepwater cardinalfish (En)
Apogon à étoile blanche
Cardinal flamboyant
Dwarf cardinalfish (En)
Apogon mimétique
Apogon pâle
Apogon à ailes jaunes
Cardinal à ceintures
Apogon des herbiers
Conchfish (En)
Freckled Cardinalfish En)
Apogon sombre
Sponge cardinalfish (En)
Blackbelly Argentine (En)
Pygmy Argentine (En)
Ariomme grise
Ariomme pintade
Athérine tête-dure
Athérine des récifs
Querimana Silverside (En)
Trompette
Baliste (cabri, commun, gris)
Baliste royal
Baliste rude
Baliste océanique
Baliste noir
Baliste des Sargasses
Deepsea herring (En)
Crapaud tacheté
Orphie plate
Orphie carénée
Aiguillette verte
Aiguillette timucu
Aiguille voyeuse
nom créole Haïtien
Sijen, soujen, lakay a konnen
Sijen, soujen, lakay a konnen
Banane
Zangi
Piskèt
Piskèt
Tronpèt
Bous mandeng
Bousse Gratelle
Triggerfishes, Bousse
Jòfi, zòfi
Jòfi, zòfi
AphiaID
Alph3
FB-SLB
FAO
OBIS
GBIF
Pplt
159578
159580
159581
219676
712902
279493
276000
276854
212256
158562
281234
126393
272539
272541
158790
712500
126533
272982
273014
273028
159589
273049
273069
273072
273078
273108
279773
279774
282226
282227
282228
272895
158719
159592
159594
272038
277722
281546
278080
154721
127397
127398
127399
219881
159486
159596
282954
159246
293709
159256
275987
236459
AQB
AQH
AQO
NUH
ZEV
ULI
FLX
ACR
BOF
ELA
KYA
AGW
XPX
XPX
AWL
XPX
HIH
QLX
QLX
QLX
QLX
QLX
QLX
QLX
QLX
QLX
APO
APO
FXC
APO
APO
ARG
JXX
IMB
DRK
SIL
SIL
AVX
MZZ
TRG
BLV
CNT
CZT
MEN
TRI
BLG
BTM
BAF
PTA
NFA
SGR
AND
0
1978
1897
1895
2013
1950
0
1978
1978
1978
1999
1999
1999
0
0
0
0
1
0
0
0
0
0
1999
0
0
1884
0
0
1999
1999
1905
1936
1936
1895
0
1857
1857
0
1857
1927
0
1970
1999
1999
1857
1970
1884
1959
2011
1999
1896
0
1959
0
1999
1959
1897
1
1959
1927
1970
0
0
0
0
1930
1927
1999
1905
1865
1897
1927
1999
1999
1994
1963
0
1943
1896
2019
1857
1930
p3
p3
p3
p3
p3
p1
p1
p5
p1
p1
p3
p10
p3
p3
p5
p3
p4
p3
p3
p3
p3
p3
p3
p3
p3
p3
p4
p3
p3
p3
p3
p5
p5
p5
p5
p2
p2
p2
p3
p3
p3
p3
p4
p3
p3
p9
p5
p2
p2
p2
p2
p3
1978
1927
1997
0
1987
1999
1950
1987
0
0
0
1997
1896
1986
0
1997
0
1997
1897
1997
1997
1997
0
0
0
1978
1978
1946
1997
1997
1905
1978
1897
0
1997
1978
1997
0
1990
1978
1896
0
1950
1978
2002
2002
0
2002
1978
0
1978
1978
2002
2002
2002
1978
1978
1978
2002
2002
1978
2002
1978
1978
0
1978
1978
1999
1999
1999
1999
0
0
1999
1999
0
1
1
0
0
0
0
1999
1999
0
1999
1999
1999
1999
1999
0
0
0
1969
0
0
1999
�175
famille
Poissons osseux (suite)
Belonidae (suite)
Blenniidae
Bothidae
Bramidae
Bregmacerotidae
Bythitidae
Callionymidae
Carangidae
Nom scientifique
Tylosurus crocodilus crocodilus (Péron & Lesueur, 1821)
Entomacrodus nigricans Gill, 1859
Hypleurochilus aequipinnis (Günther, 1861)
Hypleurochilus springeri Randall, 1966
Ophioblennius atlanticus (Valenciennes, 1836)
Ophioblennius macclurei (Silvester, 1915)
Parablennius marmoreus (Poey, 1876)
Scartella cristata (Linnaeus, 1758)
Bothus lunatus (Linnaeus, 1758)
Bothus maculiferus (Poey, 1860)
Bothus ocellatus (Agassiz, 1831)
Bothus robinsi Topp & Hoff, 1972
Monolene megalepis Woods, 1961
Brama caribbea Mead, 1972
Bregmaceros atlanticus Goode & Bean, 1886
Alionematichthys minyomma (Sedor & Cohen, 1987)
Calamopteryx goslinei Böhlke & Cohen, 1966
Calamopteryx robinsorum Cohen, 1973
Ogilbia suarezae Møller, Schwarzhans & Nielsen, 2005
Ogilbichthys haitiensis Møller, Schwarzhans & Nielsen, 2004
Ogilbia jeffwilliamsi Møller, Schwarzhans & Nielsen, 2005
Ogilbichthys kakuki Møller, Schwarzhans & Nielsen, 2004
Ogilbichthys longimanus Møller, Schwarzhans & Nielsen, 2004
Ogilbichthys microphthalmus Møller, Schwarzhans & Nielsen, 2004
Callionymus bairdi Jordan, 1888
Alectis ciliaris (Bloch, 1787)
Carangoides bartholomaei (Cuvier, 1833)
Caranx crysos (Mitchill, 1815)
Caranx hippos (Linnaeus, 1766)
Caranx latus Agassiz, 1831
Caranx lugubris Poey, 1860
Caranx ruber (Bloch, 1793)
Caranx sexfasciatus Quoy & Gaimard, 1825
Chloroscombrus chrysurus (Linnaeus, 1766)
Decapterus macarellus (Cuvier, 1833)
Decapterus punctatus (Cuvier, 1829)
Elagatis bipinnulata (Quoy & Gaimard, 1825)
Naucrates ductor (Linnaeus, 1758)
Oligoplites saurus (Bloch & Schneider, 1801)
Selar crumenophthalmus (Bloch, 1793)
Selene brownii (Cuvier, 1816)
Selene setapinnis (Mitchill, 1815)
Selene vomer (Linnaeus, 1758)
Seriola dumerili (Risso, 1810)
Seriola rivoliana Valenciennes, 1833
Seriola zonata (Mitchill, 1815)
Trachinotus carolinus (Linnaeus, 1766)
Trachinotus falcatus (Linnaeus, 1758)
Trachinotus goodei Jordan & Evermann, 1896
Trachinotus ovatus (Linnaeus, 1758)
Uraspis secunda (Poey, 1860)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES VÉRTÉBRÉS (suite)
Aiguille crocodile,
Blennie perlée
Blennie d'huître
Blennie à taches oranges
Blennie Atlantique
Blennie à lèvres rouges
Blennie marbrée
Blennie chevelue
Rombou lune
Rombou tacheté
Rombou ocellé
Rombou noir
Spottedfin deepwater flounder (En)
Castagnole caribéenne
Antenna codlet (En)
Small-eye brotula (En)
Longarm brotula (En)
Teacher brotula (En)
Shy brotula (En)
Coralbrotula
William's coralbrotula (En)
Kakuki’s brotula (En)
Longarmed brotula (En)
Smalleyed brotula (En)
Dragonet de corail
Cordonnier fil
Carangue grasse
Carangue coubali
Carangue crevalle
Carangue mayole
Carangue noire
Carangue comade
Carangue vorace
Sapater
Comète maquereau, pilote
Comète quiaquia
Comète saumon
Poisson pilote
Sauteur cuir
Selar coulisou, Coulouhou
Musso lune
Musso Atlantique
Musso panache
Sériole couronnée
Sériole limon
Sériole guaimeque
Pompaneau sole
Pompaneau plume
Carangue quatre
Palomine
Carangue coton
Sòl, kasav
Jacks, Karang jòn
Jurel
Camard
Makròk, Karang gwo je, Metegal
Jacks, Ti Masèl, Karang nwa
Karang piskèt, Mètegal
Koulewou
A lwil palaso
Nikola
Kolero, Couléhou
Lim, Lin (Carangue)
Karang gwo tèt
Jacks
Pilot
AphiaID
Alph3
FB-SLB
FAO
OBIS
GBIF
Pplt
223867
277249
276311
276318
126769
273125
159609
126782
274187
274188
159275
159277
275920
273147
126431
475073
280019
280021
281857
281861
281849
281862
281863
281864
159626
159629
159630
126802
126803
126804
126805
302432
218404
159483
126807
126808
126809
126811
159645
159646
273284
159647
159649
126816
126818
159650
159652
367285
159654
126819
159658
BTS
BLE
HYQ
BLE
OFT
BLE
BLE
LLR
OTL
BWM
OUO
LEF
LEF
BRA
BMA
MZZ
CXI
MZZ
MZZ
MZZ
MZZ
MZZ
MZZ
MZZ
DGB
LIJ
NBR
RUB
CVJ
NXL
NXU
CXR
CXS
BUA
MSD
WEC
RRU
NAU
OLI
BIS
LNW
MOA
LNM
AMB
YTL
RLZ
POM
TNF
PPL
POP
USE
1978
1905
1997
1997
2006a
1999
1905
1997
1896
0
1997
0
0
0
0
2008
1997
1970
2005
1963
0
1963
2004
1963
1997
1950
1950
1906
1950
1978
1978
1950
1950
1927
1978
1927
1978
1978
1927
1978
2002
1949
1978
1978
1978
1978
0
1927
1978
1935
2004a
1978
1978
1978
1978
1978
1978
1978
1978
1999
1999
0
0
0
1999
0
0
0
0
0
0
0
0
0
0
1999
1
0
1
0
1
0
1
1999
1
0
1
1
1
1999
1999
1978
1978
1978
1978
1978
1978
1978
2002
1978
1978
1978
1978
1978
2002
1978
1978
1
1999
1
0
0
1927
0
1
0
1
0
1965
0
0
0
0
0
0
1927
1905
0
0
1927
1970
1905
0
1896
0
1962
0
0
1959
1962
0
1999
1970
0
0
1999
0
0
0
1999
1950
1857
1906
1950
1857
1999
1933
1950
1857
1995
1927
1946
0
1
1995
1857
1950
1950
2011
1965
0
1857
1857
1865
1935
0
p3
p1
p1
p1
p1
p3
p4
p1
p3
p1
p1
p1
p5
p9
p9
p3
p3
p5
p3
p3
p3
p3
p3
p3
p4
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p1
p7
p7
1978
2002
2002
2002
2002
�176
famille
Poissons osseux (suite)
Centropomidae
Chaenopsidae
Chaetodontidae
Chaunacidae
Chlopsidae
Chlorophthalmidae
Cichlidae
Cirrhitidae
Clupeidae
Congridae
Nom scientifique
Centropomus ensiferus Poey, 1860
Centropomus parallelus Poey, 1860
Centropomus pectinatus Poey, 1860
Centropomus undecimalis (Bloch, 1792)
Acanthemblemaria aspera (Longley, 1927)
Acanthemblemaria harpeza Williams, 2002
Acanthemblemaria maria Böhlke, 1961
Acanthemblemaria spinosa Metzelaar, 1919
Chaenopsis limbaughi Robins & Randall, 1965
Chaenopsis ocellata Poey, 1865
Coralliozetus cardonae Evermann & Marsh, 1899
Emblemaria pandionis Evermann & Marsh, 1900
Emblemaria vitta Williams, 2002
Emblemariopsis bahamensis Stephens, 1961
Emblemariopsis leptocirris Stephens, 1970
Emblemariopsis occidentalis Stephens, 1970
Emblemariopsis signifer (Ginsburg, 1942)
Hemiemblemaria simulus Longley & Hildebrand, 1940
Lucayablennius zingaro (Böhlke, 1957)
Stathmonotus gymnodermis Springer, 1955
Stathmonotus hemphillii Bean, 1885
Stathmonotus stahli (Evermann & Marsh, 1899)
Chaetodon capistratus Linnaeus, 1758
Chaetodon ocellatus Bloch, 1787
Chaetodon sedentarius Poey, 1860
Chaetodon striatus Linnaeus, 1758
Prognathodes aculeatus (Poey, 1860)
Prognathodes guyanensis (Durand, 1960)
Chaunax suttkusi Caruso, 1989
Chilorhinus suensonii Lütken, 1852
Kaupichthys hyoproroides (Strömman, 1896)
Kaupichthys nuchalis Böhlke, 1967
Chlorophthalmus agassizi Bonaparte, 1840
Nandopsis haitiensis (Tee-Van, 1935)
Nandopsis tetracanthus (Valenciennes, 1831)
Oreochromis mossambicus (Peters, 1852)
Oreochromis niloticus (Linnaeus, 1758)
Amblycirrhitus pinos (Mowbray, 1927)
Clupanodon thrissa (Linnaeus, 1758)
Clupea harengus Linnaeus, 1758
Harengula clupeola (Cuvier, 1829)
Harengula humeralis (Cuvier, 1829)
Harengula jaguana Poey, 1865
Jenkinsia lamprotaenia (Gosse, 1851)
Jenkinsia majua Whitehead, 1963
Opisthonema oglinum (Lesueur, 1818)
Sardinella aurita Valenciennes, 1847
Sardinella brasiliensis (Steindachner, 1879)
Ariosoma balearicum (Delaroche, 1809)
Conger triporiceps Kanazawa, 1958
Heteroconger longissimus Günther, 1870
Paraconger caudilimbatus (Poey, 1867)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES VÉRTÉBRÉS (suite)
Brochet
Crossie chucumite
Crossie constantin
Crossie blanc
Blennie à tête rugueuse
Thorny-bush blenny (En)
Blennie secrétaire
Blennie-tube naine
Blennie-serpentine des sables
Bluethroat Pikeblenny (En)
Twinhorn Blenny (En)
Blennie-tube
Ribbon blenny (En)
Blackhead blenny (En)
Fine-cirrus blenny (En)
Redspine blenny (En)
Flagfin blenny (En)
Blennie-labre
Blennie Zingaro
Naked Blenny (En)
Blackbelly Blenny (En)
Eelgrass Blenny (En)
Marguerite, Papillon à quatre yeux
Poisson-papillon ocellé
Poisson papillon sédentaire
Demoiselle, Papillon rayé
Papillon à bec des Caraïbes
Poisson-papillon français
Pink frogmouth (En)
Seagrass eel (En)
False moray (En)
Collared eel (En)
Eperlan du large
Ciclidé haïtien
Cichlidé de Cuba
Tilapia du Mozambique
Tilapia du Nil
Grimpeur des Caraïbes
Alose à museau court
Hareng atlantique
Harengule écailleux
Cailleu
Harengule jagane
Shadine pisquette
Little-eye Herring (En)
Chardin fil
Allache
Sardinelle du Brésil
Congre des Baléares
Congre dentu
Congre jardinier
Congre de plage
Bochèt
Delakè gri
Delakè rouj
Demwazèl ke pwen nwa, dimwazèl
Demwazèl ke jòn
Kat
Demwazèl gri rèl nwa
Kat
Kat
Odo
Haran, Sadin
Haran, Sadin
Haran, Sadin
Haran, Sadin
Haran, Sadin
Haran, Sadin
Haran, Sadin
Haran, Sadin
Sadin dore (Sardine)
Sadin kaye (Sardine)
Zangi nwa
AphiaID
Alph3
FB-SLB
FAO
OBIS
GBIF
Pplt
280060
280064
280065
280068
279443
279453
279457
254883
280105
280107
280395
280653
280656
280658
280661
280662
593554
281022
281410
282870
282871
282874
159661
159662
234107
159663
273369
273375
126540
280152
158576
275432
126336
281631
281632
218777
293639
277569
280223
126417
277549
367197
277551
281198
281199
158695
126422
300551
126283
271749
126288
158569
EPN
EPP
EPS
SNO
NBP
DPX
DPX
NBI
DPX
DPX
DPX
DPX
DPX
EBB
DPX
DPX
DPX
HBI
LUZ
DPX
DPX
DPX
HTP
IHX
IHX
HTS
BUS
BUS
MZZ
XAX
ACK
XAX
CVW
CIX
CIX
TLM
TLN
YZX
DAS
HER
HCC
HCU
HCG
CJL
CLP
THA
SAA
BSR
ARB
COQ
ACL
ACT
1978
1978
1978
1898
1993
1999
1999
1996
1999
1987
1999
1997
.
1997
1997
.
2016
2016
1997
1999
1996
0
1935
1997
1950
1898
1997
1993
0
0
1999
1997
0
1927
1950
1956
1988
1997
1897
0
1985
1950
1950
1985
1985
1985
1985
1985
0
1997
1997
0
1978
1978
1978
1978
0
0
0
1
0
1999
1999
0
1999
1999
1999
1999
1945
1857
1927
1857
1927
1999
1
1927
1999
1999
1999
1999
1999
0
0
1999
0
0
0
1999
1927
1927
1857
1859
1962
1857
1999
0
1963
1970
1959
1959
1963
1912
1928
1956
1989
1970
1897
1953
1857
1857
1950
1927
0
1936
0
0
1927
1999
1
1927
p1
p1
p1
p1
p3
p1
p3
p3
p1
p4
p3
p3
p1
p3
p3
p3
p3
p3
p3
p1
p3
p3
p3
p3
p3
p3
p3
p3
p10
p4
p3
p3
p6
p1
p1
p1
p1
p3
p2
p7
p2
p2
p2
p2
p2
p2
p7
p2
p6
p6
p6
p6
0
0
2002
2002
2002
2002
2002
2002
2002
0
1978
2002
1978
1978
2002
1978
1978
1978
0
1978
0
0
0
1999
0
0
0
1
0
1
1999
0
0
0
1999
1999
0
1979
0
1979
0
1999
0
0
0
0
1
0
0
1
0
0
0
0
0
�177
famille
Poissons osseux (suite)
Coryphaenidae
Cynoglossidae
Cyprinidae
Cyprinodontidae
Dactylopteridae
Dactyloscopidae
Diceratiidae
Diodontidae
Echeneidae
Eleotridae
Elopidae
Engraulidae
Ephippidae
Nom scientifique
Coryphaena equiselis Linnaeus, 1758
Coryphaena hippurus Linnaeus, 1758
Symphurus arawak Robins & Randall, 1965
Symphurus caribbeanus Munroe, 1991
Symphurus diomedeanus (Goode & Bean, 1885)
Symphurus elongatus (Günther, 1868)
Symphurus plagiusa (Linnaeus, 1766)
Symphurus plagusia (Bloch & Schneider, 1801)
Symphurus tessellatus (Quoy & Gaimard, 1824)
Cyprinus carpio Linnaeus, 1758
Cyprinodon bondi Myers, 1935
Cyprinodon variegatus Lacepède, 1803
Dactylopterus volitans (Linnaeus, 1758)
Dactyloscopus crossotus Starks, 1913
Gillellus greyae Kanazawa, 1952
Gillellus uranidea Böhlke, 1968
Platygillellus rubrocinctus (Longley, 1934)
Bufoceratias thele (Uwate, 1979)
Chilomycterus antennatus (Cuvier, 1816)
Chilomycterus antillarum Jordan & Rutter, 1897
Diodon holocanthus Linnaeus, 1758
Diodon hystrix Linnaeus, 1758
Echeneis naucrates Linnaeus, 1758
Echeneis neucratoides Zuiew, 1789
Phtheirichthys lineatus (Menzies, 1791)
Remora albescens (Temminck & Schlegel, 1850)
Remora australis (Bennett, 1840)
Remora brachyptera (Lowe, 1839)
Remora osteochir (Cuvier, 1829)
Remora remora (Linnaeus, 1758)
Dormitator maculatus (Bloch, 1792)
Eleotris amblyopsis (Cope, 1871)
Eleotris perniger (Cope, 1871)
Eleotris pisonis (Gmelin, 1789)
Eleotris vittata Duméril, 1861
Erotelis smaragdus (Valenciennes, 1837)
Gobiomorus dormitor Lacepède, 1800
Elops saurus Linnaeus, 1766
Anchoa cayorum (Fowler, 1906)
Anchoa choerostoma (Goode, 1874)
Anchoa colonensis Hildebrand, 1943
Anchoa cubana (Poey, 1868)
Anchoa filifera (Fowler, 1915)
Anchoa hepsetus (Linnaeus, 1758)
Anchoa lamprotaenia Hildebrand, 1943
Anchoa lyolepis (Evermann & Marsh, 1900)
Anchoa parva (Meek & Hildebrand, 1923)
Anchovia clupeoides (Swainson, 1839)
Anchoviella perfasciata (Poey, 1860)
Cetengraulis edentulus (Cuvier, 1829)
Chaetodipterus faber (Broussonet, 1782)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES VÉRTÉBRÉS (suite)
Coryphène dauphin
Coryphène, Dorad
Caribbean Tonguefish (En)
Caribbean Tonguefish (En)
Langue fil noir
Langue allongée
Langue joue noire
langue joue cendre
Duskycheek tonguefish (En)
Carpe commune
Cyprinodont
Pétote
Poule de mer, hirondelle
Bigeye stargazer (En)
Arrow stargazer (En)
Warteye stargazer (En)
Saddle stargazer (En)
Poisson-lampe
Porc-épic réticulé, Boubou
Petit porc-épic
Diodon porc-épic
Pilote-requin
Rémora blanc
Rémora grêle
Rémora des mantas
Rémora des baleines
Rémora des espadons
Rémora des marlins
Rémora
Dormeur
Pitit dormè
Dormé
Gobie
Bigmouth sleeper fish (En)
Emerald Sleeper (En)
Dormeur
Banane, Guinée machète
Anchois de banc
Anchois des Bermudes
Anchois à bande étroite
Anchois cubain
Anchois fil
Anchois rayé
Anchois caraïbe
Anchois longnez
Anchois mignon
Anchois hachude
Anchois cubain
Anchois queue jaune
Portuguaise, Carangue à slime
Dorad (Dorade coryphène)
Poul lanmè
Foufou, Boumba, Ame (Won)
Puffers
Foufou, Boumba, Ame (Long)
Mile
Anchwa, janchwa
Magrit
AphiaID
Alph3
FB-SLB
FAO
OBIS
GBIF
Pplt
126845
126846
274232
274238
159358
274241
159363
274269
274276
154582
276020
159285
127232
276397
280843
280850
282275
280005
275239
275240
127402
127403
126848
159678
126849
302877
126850
126851
126852
126853
159700
277793
277803
277805
277809
280710
280896
157875
275508
275510
275511
275513
275518
158698
275522
275524
275530
279607
158701
280091
159703
CFW
DOL
TOX
TOX
TOX
TOX
YFP
YFS
YFJ
FCP
DIA
YCK
DYL
DAO
MZZ
MZZ
MZZ
GRO
DIO
DIO
DHO
DIY
EHN
ECN
HTL
RRL
REM
REY
REZ
REO
DMM
FGB
FGB
FGB
EOV
EOS
GBD
LAD
ANX
EAC
ENP
EAU
EAF
ENP
EAL
EAY
ANX
AHU
EVK
AVA
HRF
1978
1965
1998
1991
1997
1897
1978
1950
1991
1988
1927
1997
1894
1997
1997
1967
1997
0
1897
1997
1900
1893
1997
0
1999
0
0
0
0
1965
1898
0
0
1898
0
1997
1901
1978
1988
0
1988
1988
1988
1950
1988
1927
1986
1988
1950
1949
1949
1978
1978
2002
2002
1978
1972
1965
0
0
0
1978
1978
2002
1
1982
1982
0
1972
1972
1959
1953
0
1897
1950
1979
1927
2019
1927
1953
1894
0
0
1967
0
2011
1897
0
1900
1893
1857
1933
1999
0
0
0
2011
1965
1898
1928
2013
1857
1889
1943
1857
1980
0
1927
1927
0
1927
1950
0
1927
1927
0
1950
1927
1857
p8
p7
p1
p1
p5
p1
p1
p1
p1
p1
p1
p1
p5
p1
p4
p1
p1
p10
p3
p3
p3
p3
p8
p8
p7
p8
p8
p8
p8
p8
p1
p1
p1
p1
p1
p1
p1
p1
p2
p2
p2
p2
p2
p2
p2
p2
p2
p2
p2
p2
p1
1978
2002
2002
2002
1978
2002
2002
2002
2002
2002
2002
2002
2002
1978
2002
0
2002
2002
2002
1978
2002
1978
2002
2002
2002
1978
1978
0
0
0
0
1999
0
0
0
1999
1972
1
0
1999
0
0
0
1999
1965
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1
�178
famille
Poissons osseux (suite)
Eurypharyngidae
Exocoetidae
Fistulariidae
Gempylidae
Gerreidae
Gibberichthyidae
Gobiesocidae
Gobiidae
Nom scientifique
Eurypharynx pelecanoides Vaillant, 1882
Cheilopogon cyanopterus (Valenciennes, 1847)
Cheilopogon exsiliens (Linnaeus, 1771)
Cheilopogon furcatus (Mitchill, 1815)
Cheilopogon heterurus (Rafinesque, 1810)
Cheilopogon melanurus (Valenciennes, 1847)
Cypselurus comatus (Mitchill, 1815)
Exocoetus obtusirostris Günther, 1866
Exocoetus volitans Linnaeus, 1758
Hirundichthys affinis (Günther, 1866)
Hirundichthys rondeletii (Valenciennes, 1847)
Hirundichthys speculiger (Valenciennes, 1847)
Parexocoetus brachypterus (Richardson, 1846)
Parexocoetus hillianus (Gosse, 1851)
Prognichthys occidentalis Parin, 1999
Fistularia tabacaria Linnaeus, 1758
Diplospinus multistriatus Maul, 1948
Gempylus serpens Cuvier, 1829
Lepidocybium flavobrunneum (Smith, 1843)
Nealotus tripes Johnson, 1865
Nesiarchus nasutus Johnson, 1862
Ruvettus pretiosus Cocco, 1833
Diapterus auratus Ranzani, 1842
Diapterus rhombeus (Cuvier, 1829)
Eucinostomus argenteus Baird & Girard, 1855
Eucinostomus gula (Quoy & Gaimard, 1824)
Eucinostomus harengulus Goode & Bean, 1879
Eucinostomus havana (Nichols, 1912)
Eucinostomus jonesii (Günther, 1879)
Eucinostomus melanopterus (Bleeker, 1863)
Eugerres plumieri (Cuvier, 1830)
Gerres cinereus (Walbaum, 1792)
Ulaema lefroyi (Goode, 1874)
Gibberichthys pumilus Parr, 1933
Acyrtus artius Briggs, 1955
Acyrtus rubiginosus (Poey, 1868)
Arcos macrophthalmus (Günther, 1861)
Arcos nudus (Linnaeus, 1758)
Gobiesox lucayanus Briggs, 1963
Gobiesox punctulatus (Poey, 1876)
Tomicodon cryptus Williams & Tyler, 2003
Tomicodon fasciatus (Peters, 1859)
Tomicodon reitzae Briggs, 2001
Awaous banana (Valenciennes, 1837)
Bathygobius antilliensis Tornabene, Baldwin & Pezold, 2010
Bathygobius soporator (Valenciennes, 1837)
Bollmannia boqueronensis Evermann & Marsh, 1899
Chriolepis fisheri Herre, 1942
Coryphopterus dicrus Böhlke & Robins, 1960
Coryphopterus eidolon Böhlke & Robins, 1960
Coryphopterus glaucofraenum Gill, 1863
Coryphopterus hyalinus Böhlke & Robins, 1962
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES VÉRTÉBRÉS (suite)
Grandgousier pélican
Codène
Exocet rayé
Exocet tacheté
Exocet méditerranéen
Exocet atlantique
Exocet hollandais
Exocet bouledogue
Poisson volant
Exocet hirondelle
Exocet aile noire
Exocet miroir
Exocet voilier
Exocet voilier
Bluntnose Flyingfish (En)
Poisson trompette
Escolier rayé
Escolier serpent
Escolier noir
Escolier reptile
Escolier long-nez
Rouvet
Blanche cabuche
Blanche
Blanche argentée
Blanche espagnole
Tidewater mojarra (En)
Blanche gros yeux
Slender mojarra (En)
Friture argentée
Blanche rayée
Blanche cendré
Blanche Zié Takté, Sar de Floride
Gibberfish (En)
Papillate clingfish (En)
Red clingfish (En)
Padded Clingfish (En)
Colle-roche
Bahama Skilletfish (En)
Stippled clingfish (En)
Cryptic clingfish En)
Barred clingfish (En)
Eitz’s clingfish (En)
Banane, Jolpot
Gobie lézard des Antilles)
Rillfin goby (En)
White-eye goby (En)
Translucent goby (En)
Gobie colon
Gobie pâle, Gobie décoloré
Gobie à brides
Gobie de verre
Wodo labou
Wodo fjol pave
Diapav
Diapav
Diapav
Diapav
Diapav
Diapav
Diapav
Diapav
AphiaID
Alph3
FB-SLB
127165
217862
126381
159261
126382
272157
278731
126384
126385
159265
126386
126387
159265
272173
277926
159440
126861
126862
126863
126864
126865
126867
159726
276415
159732
159733
276420
276421
276422
276423
280743
276954
322267
277835
279505
279507
279683
1020567
275670
275678
282991
282993
283000
277417
712858
277638
279927
280169
276425
276426
159736
276429
SEX
EFZ
FLY
ECF
ECE
EVZ
YPX
FLY
EXV
FFV
HDR
YPX
PXB
FLY
FLY
FUT
DLT
GES
LEC
NLT
NEN
OIL
DUT
DUX
EDX
EDX
EDX
EDX
EDX
MFF
GDJ
GEN
GDJ
MZZ
AYR
JMX
JMX
JMX
JMX
JMX
JMX
JMX
JMX
FGX
GPA
BJO
BLQ
HFS
GPA
GPA
GPA
GPA
0
1978
1978
1978
0
1965
1978
1978
1895
1978
0
0
1963
0
1965
1997
1993
1981
1993
1993
1993
1993
1986
1950
1978
1949
1950
1978
0
1978
1978
1898
1
0
0
1997
0
0
0
1997
1999
0
1999
1936
0
1949
1997
2004
1997
1996
1997
1999
FAO
OBIS
GBIF
Pplt
1978
1978
1978
0
1978
1978
1978
1978
1978
0
2002
1978
0
0
0
0
1
1922
0
1999
0
0
0
0
0
1969
1963
0
2000
1933
1922
0
1934
1895
1933
1934
1959
1955
1933
1930
1930
0
1954
0
0
0
0
1865
1950
1927
1953
1865
1865
1927
1927
1980
1898
2002
1970
0
1953
1
1857
1999
0
1999
1930
1999
1927
p9
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p5
p9
p9
p9
p9
p9
p9
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p9
p3
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p5
p1
p3
p3
p1
p3
2002
0
1978
1978
2002
2002
1978
1978
1978
1978
2002
1978
2002
1978
1978
1978
2002
0
1965
0
0
1
1994
0
0
1995
0
1
1
0
0
0
0
0
1
0
0
0
1999
1999
0
0
1999
0
1999
1
1999
0
0
0
1999
1999
0
1999
1857
0
0
1999
1959
1959
1959
�179
famille
Poissons osseux (suite)
Gobiidae (suite)
Gonostomatidae
Grammatidae
Haemulidae
Nom scientifique
Coryphopterus lipernes Böhlke & Robins, 1962
Coryphopterus personatus (Jordan & Thompson, 1905)
Coryphopterus thrix Böhlke & Robins, 1960
Ctenogobius boleosoma (Jordan & Gilbert, 1882)
Ctenogobius fasciatus Gill, 1858
Ctenogobius saepepallens (Gilbert & Randall, 1968)
Ctenogobius smaragdus (Valenciennes, 1837)
Elacatinus atronasus (Böhlke & Robins, 1968)
Elacatinus evelynae (Böhlke & Robins, 1968)
Elacatinus genie (Böhlke & Robins, 1968)
Elacatinus horsti (Metzelaar, 1922)
Elacatinus illecebrosus (Böhlke & Robins, 1968)
Elacatinus oceanops Jordan, 1904
Elacatinus prochilos (Böhlke & Robins, 1968)
Evermannichthys bicolor Thacker, 2001
Evermannichthys metzelaari Hubbs, 1923
Evorthodus lyricus (Girard, 1858)
Ginsburgellus novemlineatus (Fowler, 1950)
Gnatholepis thompsoni Jordan, 1904
Gobioides broussonnetii Lacepède, 1800
Gobionellus oceanicus (Pallas, 1770)
Lophogobius cyprinoides (Pallas, 1770)
Lythrypnus crocodilus (Beebe & Tee-Van, 1928)
Lythrypnus elasson Böhlke & Robins, 1960
Lythrypnus nesiotes Böhlke & Robins, 1960
Lythrypnus spilus Böhlke & Robins, 1960
Microgobius carri Fowler, 1945
Microgobius microlepis Longley & Hildebrand, 1940
Microgobius signatus Poey, 1876
Nes longus (Nichols, 1914)
Priolepis hipoliti (Metzelaar, 1922)
Risor ruber (Rosén, 1911)
Sicydium plumieri (Bloch, 1786)
Tigrigobius macrodon (Beebe & Tee-Van, 1928)
Tigrigobius multifasciatus (Steindachner, 1876)
Varicus bucca Robins & Böhlke, 1961
Sigmops elongatus (Günther, 1878)
Gramma loreto Poey, 1868
Gramma melacara Böhlke & Randall, 1963
Lipogramma anabantoides Böhlke, 1960
Anisotremus surinamensis (Bloch, 1791)
Anisotremus virginicus (Linnaeus, 1758)
Conodon nobilis (Linnaeus, 1758)
Haemulon album Cuvier, 1830
Haemulon aurolineatum Cuvier, 1830
Haemulon bonariense Cuvier, 1830
Haemulon boschmae Cuvier, 1830
Haemulon carbonarium Poey, 1860
Haemulon chrysargyreum Günther, 1859
Haemulon flavolineatum (Desmarest, 1823)
Haemulon macrostomum Günther, 1859
Haemulon melanurum (Linnaeus, 1758)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES VÉRTÉBRÉS (suite)
Gobie nez bleu
Gobie nageur masqué
Gobie Bartail
Gobie de mangrove
Blackbar Goby (En)
Gobie morse
Emerald goby (En)
Exuma goby (En)
Gobie nez-de-requin
Gobie nettoyeur
Yellowline goby (En)
Gobie néon
Gobie néon
Gobie nettoyeur à larges bandes
Sponge goby (En)
Lyre goby (En)
Gobie à neuf lignes
Gobie grain d'or
Gobie violet
Highfin Goby (En)
Gobie à crêtes de l'Atlantique
Gobie crocodile
Dwarf Goby (En)
Island goby (En)
Bluegold goby (En)
Gobie de séminole
Gobie bannière
Signal goby (En)
Gobie à points orange
Gobie rouille
Tusked goby (En)
Loche, Titiri
Tiger Goby (En)
Gobie momie
Puffed-cheek goby (En)
Gonostome a grandes dents
Gramma royal
Gramma impérial
Dusky basslet (En)
Lippu croupia
Lippu rondeau
Cagna rayée
Crocro
Gorette tomtate
Gorette grise
Gorette ruí
Gueule rouge
Gorette tibouche
Gorette jaune, Crocro gueule-rouge
Gorette caco
Gorette mèche
Sad griz, Palriot
Crunts
Crunts
Crocro dyòl rouj
AphiaID
Alph3
FB-SLB
276431
276432
276434
159750
276483
276488
276491
280597
280601
280604
280605
280606
280616
280619
276437
276439
159743
280855
277493
280887
159753
281396
281456
281458
281465
281471
159781
275717
275719
281732
276769
282620
282779
1016103
993102
283135
221512
280932
280933
281366
279623
279625
280386
275721
158807
275722
275723
275724
275725
275727
275728
275730
GPA
GPA
GPA
GPA
TFT
GPA
GPA
GPA
GPA
GPA
GPA
GPA
GPA
GPA
GPA
EVM
EVR
GIV
GPA
GPA
GPA
GPA
GPA
GPA
GPA
GPA
GPA
GPA
GPA
NSN
GPA
RSB
IXC
GPA
GPA
GPA
GSL
GML
PRC
PRC
HNU
HNR
BRG
HLU
HLL
HLO
HWX
HLC
HWX
HLV
HLS
HLH
1997
1994
1999
1986
0
0
0
0
1997
0
1997
2013
2006
2016
1999
1997
1997
1997
1997
1997
1950
1950
1988
1999
1997
1993
0
0
1997
1997
1997
1997
0
1986
1997
1997
0
1959
2016
1991
1978
1949
1949
1978
1927
1950
0
1978
1950
1978
1978
1897
FAO
OBIS
GBIF
Pplt
1978
1978
1978
1978
1978
1978
0
1978
1978
1978
1978
1978
0
1999
1999
0
0
0
0
1966
1999
0
1999
0
0
0
0
0
0
0
1999
0
0
0
0
1999
0
0
0
0
0
0
1999
1999
0
0
0
0
0
1999
0
1999
0
1
0
0
1
0
0
0
0
0
0
0
1999
1959
1999
1933
1857
1933
1951
0
1999
1999
1927
0
0
0
1999
1927
1
0
1959
0
1927
1943
1927
1999
1959
1959
0
0
0
0
1959
1999
1857
1927
0
0
1962
1927
0
1999
0
1950
1927
1999
1857
1859
1950
0
1927
1927
1953
1897
p3
p3
p1
p1
p1
p1
p1
p3
p3
p3
p3
p3
p3
p3
p1
p3
p1
p1
p1
p1
p1
p1
p3
p3
p3
p3
p1
p1
p1
p1
p3
p1
p1
p3
p3
p5
p10
p3
p3
p3
p5
p3
p5
p3
p3
p5
p5
p3
p3
p3
p3
p3
�180
famille
Poissons osseux (suite)
Haemulidae (suite)
Halosauridae
Hemiramphidae
Holocentridae
Howellidae
Ipnopidae
Istiophoridae
Kyphosidae
Labridae
Nom scientifique
Haemulon parra (Desmarest, 1823)
Haemulon plumierii (Lacepède, 1801)
Haemulon sciurus (Shaw, 1803)
Haemulon striatum (Linnaeus, 1758)
Haemulon vittatum (Poey, 1860)
Pomadasys corvinaeformis (Steindachner, 1868)
Pomadasys crocro (Cuvier, 1830)
Aldrovandia affinis (Günther, 1877)
Aldrovandia gracilis Goode & Bean, 1896
Halosaurus ovenii Johnson, 1864
Chriodorus atherinoides Goode & Bean, 1882
Euleptorhamphus velox Poey, 1868
Hemiramphus balao Lesueur, 1821
Hemiramphus brasiliensis (Linnaeus, 1758)
Hyporhamphus unifasciatus (Ranzani, 1841)
Oxyporhamphus micropterus micropterus (Valenciennes, 1847)
Holocentrus adscensionis (Osbeck, 1765)
Holocentrus rufus (Walbaum, 1792)
Myripristis jacobus Cuvier, 1829
Neoniphon marianus (Cuvier, 1829)
Ostichthys trachypoma (Günther, 1859)
Plectrypops retrospinis (Guichenot, 1853)
Sargocentron coruscum (Poey, 1860)
Sargocentron vexillarium (Poey, 1860)
Howella brodiei Ogilby, 1899
Bathypterois phenax Parr, 1928
Ipnops murrayi Günther, 1878
Istiophorus albicans (Latreille, 1804)
Istiophorus platypterus (Shaw, 1792)
Kajikia albida (Poey, 1860)
Makaira nigricans Lacepède, 1802
Tetrapturus pfluegeri Robins & de Sylva, 1963
Kyphosus incisor (Cuvier, 1831)
Kyphosus sectatrix (Linnaeus, 1758)
Bodianus pulchellus (Poey, 1860)
Bodianus rufus (Linnaeus, 1758)
Clepticus parrae (Bloch & Schneider, 1801)
Decodon puellaris (Poey, 1860)
Doratonotus megalepis Günther, 1862
Halichoeres bathyphilus (Beebe & Tee-Van, 1932)
Halichoeres bivittatus (Bloch, 1791)
Halichoeres caudalis (Poey, 1860)
Halichoeres cyanocephalus (Bloch, 1791)
Halichoeres garnoti (Valenciennes, 1839)
Halichoeres maculipinna (Müller & Troschel, 1848)
Halichoeres pictus (Poey, 1860)
Halichoeres poeyi (Steindachner, 1867)
Halichoeres radiatus (Linnaeus, 1758)
Lachnolaimus maximus (Walbaum, 1792)
Thalassoma bifasciatum (Bloch, 1791)
Xyrichtys martinicensis Valenciennes, 1840
Xyrichtys novacula (Linnaeus, 1758)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES VÉRTÉBRÉS (suite)
Gorette marchand
Gorette blanche, Croco
Gorette catire
Gorette rayée
Boga
Grondeur gris
Grondeur crocro
Halosaure
Halosaur (En)
Hardhead (En)
Demi-bec volant
Demi-bec balaou, Balaou bleu
Demi-bec brésilien, Ballyhoo
Demi-bec blanc, Chandelle
Demi-bec à aile longue
Marignon coq, Cardinal
marignon soldat, kadino
Marignon mombin, Frère Jacques
Soleil
Poisson écureuil
Cardinal pourpre
Soleil, Marignan rayé
Poisson écureuil sombre
Pelagic basslet (En)
Poisson tripode
Grideye fish (En)
Voilier de l'Atlantique
Bécasse de mer, espadon voilier
Makaire blanc de l'Atlantique
Makaire bleu, Marlin bleu,
Makaire bécune
Calicagère jaune
Calicagère blanche
Pourceau dos noir
Pourceau espagnol
Donzelle créole
Labre rouge
Dwarf Wrasse (En)
labre à bandes vertes
Labre à deux bandes
Painted Wrasse (En)
Yellowcheek Wrasse (En)
Girelle à tête jaune
Girelle clown
Labre arc-en-ciel
Girelle oreilles noires
Donzelle arc-en-ciel
Labre capitaine
Girelle à tête bleue
Razon rose
Donzelle lame, Razon nacré
Krokro
Crunts
Krit
Sadin
Balaou
Balawou
Kadino pikan
Kadino, kadina gwo je nwa
Kadino
Kadino
Kadino
Kadino
Kadino resif
Kadino
Vwalye
Pwason grigri
Jirèl
Kapitén
AphiaID
Alph3
FB-SLB
FAO
OBIS
GBIF
Pplt
275731
158808
275733
275739
1021254
273504
273505
126637
157880
126641
280164
159276
159278
159279
159281
293698
159378
276189
159385
276205
159399
277960
272207
159401
126994
126345
158866
126949
158812
712906
126950
126954
126955
303486
273540
273541
280214
276747
280576
158814
158815
158816
275760
275764
275772
275788
275790
275793
158822
159786
273602
126971
HLP
HLI
HHI
HWX
HWX
BGX
PKR
JGX
JBC
NHU
HCE
EXQ
BHA
BAL
HHU
HAX
HOO
HCZ
MJA
HCZ
HCZ
HCZ
HCZ
HCZ
HWB
VDX
VDX
SAI
SFA
WHM
BUM
SPF
KYI
KYS
BDY
BDR
USP
WRA
DRE
WRA
WRA
WRA
WRA
WRA
WRA
WRA
JKI
WRA
LCX
TMF
WRA
XYN
1978
1937
1978
1950
1997
1978
1978
0
0
1963
0
1965
1965
1939
1949
0
1896
1978
1978
1949
1961
1997
1997
1997
0
0
0
1985
0
1985
1985
1985
1978
1978
1978
1907
1949
1997
0
0
1949
1950
1997
1950
1997
1997
1997
1950
1950
1991
1939
1978
1978
1978
1978
1978
1
1
1
1
0
0
0
0
0
0
0
1965
1965
1965
0
1999
1999
0
1999
1999
0
1999
1999
1999
0
0
0
1995
0
1995
1997
0
0
1999
0
1
1999
0
0
0
0
0
0
1999
1999
1999
1999
0
1
1999
0
0
2000
1857
1859
1857
0
1946
1
1970
1970
1963
1981
1965
1965
1857
1930
1933
1857
1927
1927
1927
1965
1959
1927
1933
1970
1970
1970
0
2011
0
0
0
0
1959
0
1857
1927
1927
1953
0
1927
1927
0
1927
1953
1999
1953
1927
1950
1927
1939
0
p3
p3
p3
p3
p3
p5
p5
p10
p10
p10
p2
p2
p2
p2
p2
p7
p3
p3
p3
p3
p3
p3
p3
p3
p10
p10
p10
p8
p8
p8
p8
p8
p3
p3
p3
p3
p3
p5
p4
p3
p3
p3
p3
p3
p3
p3
p4
p3
p3
p3
p4
p4
1978
1978
0
2002
1978
1978
1978
2002
1978
1978
1978
2002
2002
2002
2002
2002
1978
1
1978
1978
1978
1978
1978
1978
1978
2002
2002
2002
2002
2002
2002
2002
2002
2002
2002
2002
1978
1978
2002
2002
1978
�181
famille
Poissons osseux (suite)
Labridae (suite)
Labrisomidae
Lampridae
Lobotidae
Lophiidae
Lutjanidae
Macrouridae
Nom scientifique
Xyrichtys splendens Castelnau, 1855
Brockius albigenys (Beebe & Tee-Van, 1928)
Brockius nigricinctus (Howell Rivero, 1936)
Gobioclinus bucciferus (Poey, 1868)
Gobioclinus gobio (Valenciennes, 1836)
Gobioclinus guppyi (Norman, 1922)
Gobioclinus haitiensis (Beebe & Tee-Van, 1928)
Labrisomus albigenys Beebe & Tee-Van, 1928
Labrisomus haitiensis Beebe & Tee-Van, 1928
Labrisomus nuchipinnis (Quoy & Gaimard, 1824)
Malacoctenus aurolineatus Smith, 1957
Malacoctenus boehlkei Springer, 1959
Malacoctenus delalandii (Valenciennes, 1836)
Malacoctenus erdmani Smith, 1957
Malacoctenus gilli (Steindachner, 1867)
Malacoctenus macropus (Poey, 1868)
Malacoctenus triangulatus Springer, 1959
Malacoctenus versicolor (Poey, 1876)
Paraclinus barbatus Springer, 1955
Paraclinus fasciatus (Steindachner, 1876)
Paraclinus nigripinnis (Steindachner, 1867)
Starksia atlantica Longley, 1934
Starksia culebrae (Evermann & Marsh, 1899)
Starksia fasciata (Longley, 1934)
Starksia lepicoelia Böhlke & Springer, 1961
Starksia leucovitta Williams & Mounts, 2003
Starksia nanodes Böhlke & Springer, 1961
Starksia ocellata (Steindachner, 1876)
Starksia smithvanizi Williams & Mounts, 2003
Lampris guttatus (Brünnich, 1788)
Lobotes surinamensis (Bloch, 1790)
Lophiodes monodi (Le Danois, 1971)
Apsilus dentatus Guichenot, 1853
Etelis oculatus (Valenciennes, 1828)
Lutjanus ambiguus (Poey, 1860)
Lutjanus analis (Cuvier, 1828)
Lutjanus apodus (Walbaum, 1792)
Lutjanus buccanella (Cuvier, 1828)
Lutjanus campechanus (Poey, 1860)
Lutjanus cyanopterus (Cuvier, 1828)
Lutjanus griseus (Linnaeus, 1758)
Lutjanus jocu (Bloch & Schneider, 1801)
Lutjanus mahogoni (Cuvier, 1828)
Lutjanus purpureus (Poey, 1866)
Lutjanus synagris (Linnaeus, 1758)
Lutjanus vivanus (Cuvier, 1828)
Ocyurus chrysurus (Bloch, 1791)
Pristipomoides aquilonaris (Goode & Bean, 1896)
Pristipomoides macrophthalmus (Müller & Troschel, 1848)
Rhomboplites aurorubens (Cuvier, 1829)
Coelorinchus caribbaeus (Goode & Bean, 1885)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES VÉRTÉBRÉS (suite)
Razon vert
Whitecheek blenny (En)
Blennie à joues ocellées
Blennie joufflue
Palehead blenny (En)
Mimic blenny (En)
Longfin blenny En)
Whitecheek blenny (En)
Longfin blenny (En)
Blennie chevelue
Blennie H
Diamond blenny (En)
Brazilian blenny (En)
Imitator blenny (En)
Blennie ocellée
Blennie rose
Blennie à selles
Blennie versicolore
Goatee blenny (En)
Banded blenny (En)
Blennie trois-yeux à joues blanches
Smooth-eye blenny (En)
Culebra blenny (En)
Blackbar blenny (En)
Blackcheek Blenny (En)
Whitesaddle blenny (En)
Dwarf blenny (En)
Checkered blenny En)
Blennie demi-bandes
Poisson lune; opa
Croupia roche
Club bait anglerfish (En)
Vivaneau noir
Vivaneau royal, Brème
Vivaneau ambigu
Sorbe
Vivaneau dentchien, Parque
Vivaneau oreille noire, Boucanelle
Vivaneau campèche
Vivaneau cubéra
Carde gris
Vivaneau chien
Sarde
Vivaneau rouge
Vivaneau gazou
Vivaneau soie
Vivaneau queue jaune, Colas,
Colas vorace
Colas gros yeux
Vivaneau ti-yeux
Blackfin Grenadier (En)
Domèz
Sad, Vivano
Sad, Vivano
Sad, Vivano
Sorbe
Sad, Vivano
Zorey nwa
Sad roz
Sad, Vivano
Vivanno gri, Sad, Ajante
Snappers
Ajante
Vivanno rouj (V. garance)
Sad, Vivano
Sad, Vivano
Kola, Vivanno jòn (V. Jaune)
Sad, Vivano
Sad, Vivano
Ronn
AphiaID
Alph3
FB-SLB
FAO
OBIS
GBIF
Pplt
273608
1016071
993097
993098
993099
993100
1016102
281247
281255
281260
281491
281492
281494
281496
281498
281500
281503
281504
282017
282021
282031
276361
276364
276366
276374
276376
276379
159670
276385
126522
126973
278531
277617
159789
276522
159792
159793
159794
159795
159796
159797
159798
159799
276547
159800
159801
159803
159805
276555
159807
280261
WRA
DPX
DPX
DPX
DPX
DPX
DPX
DPX
DPX
KVA
DPX
DPX
DPX
DPX
DPX
DPX
DPX
MRV
DPX
DPX
DPX
SKT
DPX
DPX
DPX
DPX
DPX
DPX
DPX
LAG
LOB
ANF
ASX
EEO
SNA
LJN
LJP
LJU
SNR
LJY
LJI
LJJ
LJM
SNC
SNL
LTJ
SNY
PQI
UPZ
RPU
CQI
1999
1998
1997
1997
1997
1997
1997
1998
1997
1896
1997
2006
1997
1997
1997
1997
1997
1896
0
1997
1997
1997
1996
1999
1999
1999
1997
1993
1999
1978
1978
1961
1985
1969
1950
1985
1897
1985
2004
1985
1950
1985
1985
1985
1905
1985
1885
1985
1985
1949
1990
2002
1
0
0
0
0
1999
1
1927
1953
1953
0
1953
1927
0
0
1857
1953
0
1953
1953
1927
1953
1953
1896
2000
0
1927
1999
1927
1999
1959
1999
1999
1927
1999
0
1927
0
2011
0
1950
1927
1857
1857
0
0
1927
1927
1950
1945
1859
1930
1885
1857
1965
1927
1963
p4
p3
p3
p3
p3
p3
p3
p3
p4
p3
p3
p3
p4
p4
p4
p4
p3
p3
p3
p4
p4
p3
p3
p1
p3
p1
p3
p3
p4
p9
p7
p5
p5
p5
p3
p3
p3
p5
p5
p3
p3
p3
p3
p5
p3
p3
p3
p5
p5
p5
p10
1978
1978
2002
1978
1978
1978
1978
1978
0
1978
1978
1978
1978
1978
1978
1978
1978
1978
1978
1978
0
0
0
0
0
0
0
0
0
1999
0
0
0
0
1999
0
0
1999
1999
1999
0
1999
0
1
1
0
1
1
1
0
0
0
1
0
0
0
1
0
1
1
0
1
0
�182
famille
Poissons osseux (suite)
Macrouridae (suite)
Malacanthidae
Megalopidae
Melamphaidae
Melanocetidae
Microdesmidae
Molidae
Monacanthidae
Moringuidae
Moridae
Mugilidae
Mullidae
Muraenesocidae
Muraenidae
Nom scientifique
Coelorinchus occa (Goode & Bean, 1885)
Coryphaenoides rudis Günther, 1878
Gadomus dispar (Vaillant, 1888)
Hymenocephalus billsam Marshall & Iwamoto, 1973
Hymenocephalus italicus Giglioli, 1884
Malacocephalus laevis (Lowe, 1843)
Malacocephalus occidentalis Goode & Bean, 1885
Nezumia aequalis (Günther, 1878)
Ventrifossa macropogon Marshall, 1973
Caulolatilus chrysops (Valenciennes, 1833)
Malacanthus plumieri (Bloch, 1786)
Megalops atlanticus Valenciennes, 1847
Melamphaes pumilus Ebeling, 1962
Scopeloberyx opisthopterus (Parr, 1933)
Melanocetus murrayi Günther, 1887
Cerdale floridana Longley, 1934
Ptereleotris helenae (Randall, 1968)
Ptereleotris calliura (Jordan & Gilbert, 1882)
Mola mola (Linnaeus, 1758)
Aluterus monoceros (Linnaeus, 1758)
Aluterus schoepfii (Walbaum, 1792)
Aluterus scriptus (Osbeck, 1765)
Cantherhines macrocerus (Hollard, 1853)
Cantherhines pullus (Ranzani, 1842)
Cantherhines sandwichiensis (Quoy & Gaimard, 1824)
Monacanthus ciliatus (Mitchill, 1818)
Monacanthus tuckeri Bean, 1906
Stephanolepis hispidus (Linnaeus, 1766)
Stephanolepis setifer (Bennett, 1831)
Moringua edwardsi (Bennett, 1831)
Salilota australis (Günther, 1878)
Crenimugil heterocheilos (Bleeker, 1855)
Dajaus monticola (Bancroft, 1834)
Joturus pichardi Poey, 1860
Mugil cephalus Linnaeus, 1758
Mugil curema Valenciennes, 1836
Mugil curvidens Valenciennes, 1836
Mugil hospes Jordan & Culver, 1895
Mugil incilis Hancock, 1830
Mugil liza Valenciennes, 1836
Mugil trichodon Poey, 1875
Mulloidichthys martinicus (Cuvier, 1829)
Mullus auratus Jordan & Gilbert, 1882
Pseudupeneus maculatus (Bloch, 1793)
Upeneus parvus Poey, 1852
Upeneus sundaicus (Bleeker, 1855)
Cynoponticus savanna (Bancroft, 1831)
Anarchias similis (Lea, 1913)
Channomuraena vittata (Richardson, 1845)
Echidna catenata (Bloch, 1795)
Enchelycore carychroa Böhlke & Böhlke, 1976
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES VÉRTÉBRÉS (suite)
Swordsnout grenadier (En)
Bighead grenadier (En)
longbeard grenadier (En)
(grenadier)
Grenadier barbu
Grenadier barbu
Grenadier scie
Grenadier lisse
Longbeard grenadier (En)
Tile œil doré
Matajuel blanc, Vive tropicale
Tarpon
Bigscale (En)
Baudroie abyssale
Pugjaw wormfish (En)
Poisson-fléchette planant
Blue dartfish (En)
Mole, poisson-lune
Bourse loulou, Bourse licorne
Bourse orange
Bourse écriture, Bourse graffiti
Bourse cabri
Bourse pintade
Bourse pitaire
Bourse émeri, Bourse à frange
Bourse élancée
Bourse brune, Bourse tête plate
Bourse fil, Bourse pygmée
Anguille-spaghetti
More têtard
Mulet boxeur
Mulet de fleuve
Mulet bobo
Mulet cabot
Mulet blanc
Mulet mignon
Mulet hospe
Mulet parassi
Mulet lébranche
Mulet éventail
Capucin jaune, barbaray rouge
Rouget-barbet doré
Rouget barbet tacheté, barbaray
Rouget-souris mignon
Ochrebanded goatfish (En)
Morénésoce coungré
Pygmy Moray (En)
Murène anneau
Murène enchainée
Murène cloutée
Grand-ecaille, Gran kal
Filefishes
Bousse antèn
Souris jaune
Barbaren
Barbaren zéb
Barbaren
Barbaren
Kong
Kong
Kong
Kong
AphiaID
Alph3
FB-SLB
280323
272350
126470
272372
158961
272392
158741
126473
158747
159403
277261
126430
159330
127275
126557
280084
277123
277120
127405
127407
159490
159491
276250
159493
220057
159497
159499
127409
159500
158578
282654
275314
1042835
281205
126983
159416
273649
273653
273654
273655
273660
277991
159418
159421
159422
273673
271798
158581
217466
278676
271805
CKO
CVY
RTX
RTX
HYS
MLL
MLO
NZA
VEM
CKZ
MWP
TAR
MZZ
MZZ
MXN
DFD
JBX
JBX
MOX
ALM
AWI
ALN
FLF
FLF
CWH
FFX
FFX
FIK
FFX
AMM
SAO
MHE
AJW
MUA
MUF
MGU
MGS
MGS
MGI
MUB
MMW
YMZ
MUX
UDU
UPP
UPU
IKX
MUI
AMH
AMD
MUI
0
1990
0
2014
1990
1990
1990
1990
0
1997
1978
1978
0
0
0
1997
1997
2016
1997
0
1978
1997
1997
1950
1897
1911
1997
1950
1978
0
1903
0
1978
2003
1978
1898
1978
1978
1898
1978
1978
1978
1978
1935
1978
1957
1950
0
1978
1997
0
FAO
2002
1978
1978
2002
1978
2002
2002
1978
1978
2002
2002
1978
1978
2002
1978
1978
1978
1978
2002
1978
1978
1978
1978
1978
1978
1978
0
1978
2002
2002
OBIS
GBIF
Pplt
0
0
0
0
0
0
0
0
0
0
1999
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1999
0
1
1999
0
1
1
0
0
1999
0
0
0
0
0
1999
0
1999
0
0
1
0
0
0
1967
1963
0
1963
0
0
0
0
1963
1963
0
1933
1927
1970
1970
1970
1953
0
0
0
1959
1927
1927
0
1927
1897
1911
1999
1930
1927
1903
1903
1865
1912
0
1980
1898
0
0
1898
2018
1953
1927
0
1927
0
1947
1946
1970
0
1953
1959
p10
p10
p10
p10
p10
p10
p10
p10
p10
p5
p5
p2
p9
p9
p9
p3
p1
p1
p8
p3
p5
p3
p3
p3
p3
p4
p4
p5
p5
p1
p5
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p5
p5
p4
p5
p1
p6
p3
p6
p6
p6
�183
famille
Poissons osseux (suite)
Muraenidae (suite)
Myctophidae
Neoscopelidae
Nettastomatidae
Nomeidae
Ogcocephalidae
Ophichthidae
Ophidiidae
Nom scientifique
Enchelycore nigricans (Bonnaterre, 1788)
Gymnothorax conspersus Poey, 1867
Gymnothorax funebris Ranzani, 1839
Gymnothorax maderensis (Johnson, 1862)
Gymnothorax miliaris (Kaup, 1856)
Gymnothorax moringa (Cuvier, 1829)
Gymnothorax ocellatus Agassiz, 1831
Gymnothorax vicinus (Castelnau, 1855)
Monopenchelys acuta (Parr, 1930)
Uropterygius macularius (Lesueur, 1825)
Centrobranchus nigroocellatus (Günther, 1873)
Ceratoscopelus warmingii (Lütken, 1892)
Diaphus adenomus Gilbert, 1905
Diaphus brachycephalus Tåning, 1928
Diaphus dumerilii (Bleeker, 1856)
Diaphus garmani Gilbert, 1906
Diaphus rafinesquii (Cocco, 1838)
Diaphus splendidus (Brauer, 1904)
Hygophum macrochir (Günther, 1864)
Lampadena anomala Parr, 1928
Lepidophanes guentheri (Goode & Bean, 1896)
Myctophum affine (Lütken, 1892)
Myctophum nitidulum Garman, 1899
Myctophum obtusirostre Tåning, 1928
Myctophum selenops Tåning, 1928
Nannobrachium lineatum (Tåning, 1928)
Neoscopelus macrolepidotus Johnson, 1863
Neoscopelus microchir Matsubara, 1943
Venefica procera (Goode & Bean, 1883)
Cubiceps pauciradiatus Günther, 1872
Nomeus gronovii (Gmelin, 1789)
Psenes cyanophrys Valenciennes, 1833
Dibranchus atlanticus Peters, 1876
Halieutichthys aculeatus (Mitchill, 1818)
Ogcocephalus declivirostris Bradbury, 1980
Ogcocephalus nasutus (Cuvier, 1829)
Ogcocephalus radiatus (Mitchill, 1818)
Ogcocephalus vespertilio (Linnaeus, 1758)
Ahlia egmontis (Jordan, 1884)
Echiophis punctifer (Kaup, 1859)
Myrichthys breviceps (Richardson, 1848)
Myrichthys ocellatus (Lesueur, 1825)
Myrophis platyrhynchus Breder, 1927
Ophichthus cruentifer (Goode & Bean, 1896)
Ophichthus gomesii (Castelnau, 1855)
Ophichthus ophis (Linnaeus, 1758)
Bathyonus laticeps (Günther, 1878)
Brotula barbata (Bloch & Schneider, 1801)
Dicrolene kanazawai Grey, 1958
Holcomycteronus squamosus (Roule, 1916)
Lepophidium brevibarbe (Cuvier, 1829)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES VÉRTÉBRÉS (suite)
Murène noire, Murène vipère
Saddled moray (En)
Murène verte
Murène de Madère
Murène dorée
Murène tachetée
Murène ocellée
Murène jaune
Redface moray (En)
Marbled moray (En)
Roundnose lanternfish (En)
Warming’s lanternfish (En)
Gilbert's large lantern fish (En)
Short-headed lantern fish (En)
Lantern fish (En)
Garman’s lanternfish (En)
White-spoted lantern fish (En)
Horned lanternfish (En)
Largefin lanternfish (En)
Anomalous lanternfish (En)
Günther’s lanternfish (En)
Lanterne métallique
Metallic lanternfish (En)
Bluntsnout lanternfish (En)
Wisner's lantern fish (En))
Lanternfish (En)
Large-scaled lantern fish (En)
Shortfin neoscopelid (En)
Short-snout sorcerer (En)
Bigeye cigarfish (En)
Dérivant des physalies
Freckled driftfish (En)
Atlantic batfish (En)
Poisson chauve-souris
Slantbrow batfish (En)
Poisson chauve-souris unicorne
Polka-dot batfish (En)
Batfish (En)
Serpentine clef
Serpenton tiyeux
Serpentine dorée
Serpentine ocellée
Broadnose worm eel (En)
Serpent de mer
Serpenton chevrette
Serpenton tacheté
Brotula barbé
Brotule barbiche
Kong
Kong
Kong vèt
Kong
Kong
Kong morel, Kong gri
Kong
Kong
Kong
Kong
AphiaID
Alph3
FB-SLB
FAO
OBIS
GBIF
Pplt
271808
158582
158583
126299
271852
158584
271865
126302
277933
277951
126584
126586
126587
126589
126590
158888
126596
158893
158895
126606
126621
158902
126626
158904
126628
158912
126634
126635
158593
159424
126991
159427
126558
159190
275907
275908
275913
159195
158595
158610
158637
275486
158642
158644
271955
126315
126666
159067
275896
126671
275619
DLI
AXZ
AMI
AGD
AXZ
AGG
AMW
AMT
MMA
MUI
DBH
NCV
LXX
DPY
DPU
DQA
DPF
DQC
LXX
LXX
JHC
OWS
MCU
OWQ
MMY
LYL
NSM
LAX
XAX
UBU
NMG
PSC
DBA
HLA
MZZ
MZZ
MZZ
MZZ
AOE
AOU
OWX
OWX
OWX
OWX
OOG
OQK
OBP
BRD
OPH
OPH
LPW
1978
1997
1978
0
1978
1896
1978
1978
0
0
0
1999
0
0
1999
1999
1963
1981
0
0
0
0
1999
1999
0
0
0
0
0
0
1997
0
0
1900
0
1997
0
0
1999
0
0
1997
0
0
1950
1978
0
1999
0
0
1949
1978
2002
1978
2002
1978
1978
1978
1978
2002
2002
1999
0
0
0
1999
1972
0
0
1999
0
0
1999
1
0
1999
1956
0
0
0
0
0
0
1999
1999
0
1
0
0
0
0
0
0
0
0
0
1
1953
0
1981
0
1959
1896
1946
1953
1999
1959
1963
1999
0
1962
1999
1956
1963
1962
1962
2011
1962
1956
1999
1999
1962
1963
1963
2011
1970
1962
1884
1962
1963
1900
1933
1927
1963
2011
1927
0
1929
0
1959
1927
1950
0
1970
0
1970
1970
1949
p6
p6
p6
p6
p6
p6
p6
p6
p6
p3
p9
p9
p9
p9
p9
p9
p9
p9
p9
p9
p9
p9
p9
p9
p9
p9
p9
p9
p10
p9
p9
p9
p5
p5
p5
p5
P1
p5
p4
p1
p3
p4
p1
p5
p5
p5
p10
p5
p10
p10
p5
1978
1978
2002
0
0
1999
1
0
0
0
0
0
0
0
0
0
0
0
�184
famille
Poissons osseux (suite)
Ophidiidae (suite)
Opistognathidae
Ostraciidae
Paralepididae
Paralichthyidae
Pempheridae
Percophidae
Phosichthyidae
Poeciliidae
Polymixiidae
Polynemidae
Pomacanthidae
Pomacentridae
Nom scientifique
Neobythites marginatus Goode & Bean, 1886
Neobythites unicolor Nielsen & Retzer, 1994
Ophidion holbrookii Putnam, 1874
Otophidium dormitator Böhlke & Robins, 1959
Petrotyx sanguineus (Meek & Hildebrand, 1928)
Porogadus miles Goode & Bean, 1885
Opistognathus aurifrons (Jordan & Thompson, 1905)
Opistognathus lonchurus Jordan & Gilbert, 1882
Opistognathus macrognathus Poey, 1860
Opistognathus maxillosus Poey, 1860
Opistognathus whitehursti (Longley, 1927)
Acanthostracion polygonius Poey, 1876
Acanthostracion quadricornis (Linnaeus, 1758)
Lactophrys bicaudalis (Linnaeus, 1758)
Lactophrys trigonus (Linnaeus, 1758)
Lactophrys triqueter (Linnaeus, 1758)
Lestidiops affinis (Ege, 1930)
Citharichthys arenaceus Evermann & Marsh, 1900
Citharichthys dinoceros Goode & Bean, 1886
Citharichthys sordidus (Girard, 1854)
Citharichthys spilopterus Günther, 1862
Cyclopsetta fimbriata (Goode & Bean, 1885)
Etropus crossotus Jordan & Gilbert, 1882
Etropus rimosus Goode & Bean, 1885
Paralichthys dentatus (Linnaeus, 1766)
Syacium gunteri Ginsburg, 1933
Syacium micrurum Ranzani, 1842
Pempheris schomburgkii Müller & Troschel, 1848
Bembrops gobioides (Goode, 1880)
Bembrops macromma Ginsburg, 1955
Vinciguerria nimbaria (Jordan & Williams, 1895)
Gambusia affinis (Baird & Girard, 1853)
Gambusia dominicensis Regan, 1913
Gambusia puncticulata Poey, 1854
Limia rivasi Franz & Burgess, 1983
Limia vittata (Guichenot, 1853)
Poecilia reticulata Peters, 1859
Poecilia sphenops Valenciennes, 1846
Polymixia lowei Günther, 1859
Polymixia nobilis Lowe, 1836
Polydactylus oligodon (Günther, 1860)
Polydactylus virginicus (Linnaeus, 1758)
Centropyge argi Woods & Kanazawa, 1951
Holacanthus ciliaris (Linnaeus, 1758)
Holacanthus tricolor (Bloch, 1795)
Pomacanthus arcuatus (Linnaeus, 1758)
Pomacanthus paru (Bloch, 1787)
Abudefduf saxatilis (Linnaeus, 1758)
Abudefduf taurus (Müller & Troschel, 1848)
Chromis cyanea (Poey, 1860)
Chromis enchrysura Jordan & Gilbert, 1882
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES VÉRTÉBRÉS (suite)
Stripefin brotula (En)
Spotted brotula (En)
Brotule de banc
Sleeper cusk (En)
Redfin brotula (En)
Abadèche mince
Marionnette tête d'or
Moustache jawfish (En)
Marionnette ponctuée
Mottled jawfish (En)
Dusky Jawfish (En)
Coffre polygone
Coffre taureau
Coffre zinga
Coffre à cornes
Coffre baquette
Barracudina (En)
Rombou des sables
Rombou à deux tâches
Cardine de Californie
Rombou de plage
Perpeire à queue tachetée
Perpeire frange
Limande grise
Cardeau d'été
Fausse limande de banc
Fausse limande
Hachette cuivrée
Goby flathead (En)
Oceanic lightfish (En)
Gambusie
Dominican gambusia (En)
Caribbean gambusia (En)
Rivas's limia (En)
Cuban Limia (En)
Guppy
Molly
Poisson chèvre
Poisson chèvre robuste
Barbure à petites écailles
Barbure argenté
Poisson-ange nain à tête jaune
Demoiselle royale
Demoiselle beauté
Demoiselle blanche
Demoiselle chiririte
Castagnole
Sergent-major de nuit
Chromis bleu
Yellowtail chromis (En)
Cowfishes
Kòf
Kòf
Kòf
Cowfishes
Angelfishes
AphiaID
Alph3
FB-SLB
276624
276645
272824
275632
282225
158775
276442
276462
276463
276465
276480
158919
158920
275874
158931
158932
126353
275685
275686
275694
159166
158795
158799
158802
158826
275839
158877
277068
159843
276579
127303
159325
276132
276140
281356
281357
154400
275351
158923
127163
276596
159854
278827
276012
276017
159287
276025
159288
273701
273718
273722
OPH
OPH
OVK
OPH
OPH
OPH
OIU
DPX
DPX
DPX
DPX
NCY
NCQ
KBC
LFT
LFQ
LDA
IYE
FLX
IYO
IYP
FLX
UCO
FLX
FLS
YAG
YAM
PRC
JIX
JIX
VII
GSF
DIA
DIA
DIA
DIA
PFL
OZS
MZZ
PXV
QTC
QTG
ANW
ANW
ANW
ANW
ANW
ABU
DJJ
DSF
DSF
0
1961
0
1999
0
0
1997
2004
1997
0
1999
1997
1901
1897
1950
1895
0
0
0
0
1927
1997
1997
1
0
1997
1949
1997
0
0
0
0
1921
0
1989
0
0
0
1965
0
1986
1950
1985
1978
1896
1949
1978
1950
1978
1997
1997
FAO
0
2002
1978
1978
1978
1978
2002
2002
2002
2002
2002
0
0
0
1
2002
0
0
1978
2002
1978
1978
1978
1978
1978
1978
OBIS
GBIF
Pplt
1
1
0
0
0
0
1999
0
0
0
1999
0
1
0
1
0
0
0
0
0
0
0
0
0
0
1999
1999
1970
1970
1999
0
0
1959
1999
2011
1859
1897
1906
1895
1962
1945
1963
1897
1857
0
1953
1950
0
1927
1927
1894
1963
0
1962
1944
1921
1
1980
1857
1
1925
1965
0
1857
1950
1999
1933
1859
1936
1858
1857
1857
1927
0
p5
p5
p1
p1
p3
p10
p3
p5
p1
p1
p5
p3
p3
p3
p3
p3
p10
p1
p10
p5
p1
p5
p5
p5
p1
p5
p5
p3
p5
p5
p10
p1
p1
p1
p1
p1
p1
p1
p5
p5
p1
p1
p3
p3
p3
p3
p3
p3
p3
p3
p3
1
0
0
0
0
1
0
1
1
0
0
1999
1
1999
1
1
1965
0
1999
0
�185
famille
Poissons osseux (suite)
Pomacentridae (suite)
Priacanthidae
Pristigasteridae
Rachycentridae
Rondeletiidae
Scaridae
Sciaenidae
Scombridae
Nom scientifique
Chromis insolata (Cuvier, 1830)
Chromis multilineata (Guichenot, 1853)
Microspathodon chrysurus (Cuvier, 1830)
Stegastes adustus (Troschel, 1865)
Stegastes diencaeus (Jordan & Rutter, 1897)
Stegastes fuscus (Cuvier, 1830)
Stegastes leucostictus (Müller & Troschel, 1848)
Stegastes otophorus (Poey, 1860)
Stegastes partitus (Poey, 1868)
Stegastes planifrons (Cuvier, 1830)
Stegastes variabilis (Castelnau, 1855)
Heteropriacanthus cruentatus (Lacepède, 1801)
Priacanthus arenatus Cuvier, 1829
Chirocentrodon bleekerianus (Poey, 1867)
Rachycentron canadum (Linnaeus, 1766)
Rondeletia bicolor Goode & Bean, 1895
Cryptotomus roseus Cope, 1871
Nicholsina usta usta (Valenciennes, 1840)
Scarus coelestinus Valenciennes, 1840
Scarus coeruleus (Edwards, 1771)
Scarus guacamaia Cuvier, 1829
Scarus iseri (Bloch, 1789)
Scarus taeniopterus Lesson, 1829
Scarus vetula Bloch & Schneider, 1801
Sparisoma atomarium (Poey, 1861)
Sparisoma aurofrenatum (Valenciennes, 1840)
Sparisoma axillare (Steindachner, 1878)
Sparisoma chrysopterum (Bloch & Schneider, 1801)
Sparisoma frondosum (Agassiz, 1831)
Sparisoma radians (Valenciennes, 1840)
Sparisoma rubripinne (Valenciennes, 1840)
Sparisoma viride (Bonnaterre, 1788)
Bairdiella ronchus (Cuvier, 1830)
Corvula batabana (Poey, 1860)
Corvula sanctaeluciae Jordan, 1890
Cynoscion jamaicensis (Vaillant & Bocourt, 1883)
Equetus lanceolatus (Linnaeus, 1758)
Equetus punctatus (Bloch & Schneider, 1801)
Larimus breviceps Cuvier, 1830
Micropogonias furnieri (Desmarest, 1823)
Micropogonias undulatus (Linnaeus, 1766)
Odontoscion dentex (Cuvier, 1830)
Pareques acuminatus (Bloch & Schneider, 1801)
Pogonias cromis (Linnaeus, 1766)
Stellifer colonensis Meek & Hildebrand, 1925
Umbrina broussonnetii Cuvier, 1830
Umbrina coroides Cuvier, 1830
Acanthocybium solandri (Cuvier, 1832)
Auxis rochei rochei (Risso, 1810)
Auxis thazard thazard (Lacepède, 1800)
Euthynnus alletteratus (Rafinesque, 1810)
Katsuwonus pelamis (Linnaeus, 1758)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES VÉRTÉBRÉS (suite)
Olive chromis (En)
Castagnole brune
Chaffet queue jaune
Demoiselle brune
Demoiselle noire
Brazilian damsel (En)
Beau grégoire
Damselfish (En)
Demoiselle bicolore
Demoiselle trois points
Demoiselle cacao)
Beauclaire de roche, Soleil caye
Beauclaire soleil
Poisson-papier dentu
Cobia
Perroquet à lèvre bleue
Perroquet éméraude
Perroquet noir
Perroquet bleu
Perroquet arc-en-ciel
Perroquet rayé
Perroquet princesse
Perroquet périco
Perroquet à tâche verte
Perroquet tacheté
Perroquet basto
Perroquet vert
Redtail parrotfish (En)
Perroquet aile-noire
Perroquet basto
Perroquet feu
Mamselle rouio
Mamselle bleue
Mamselle caimuire
Acoupa mongolare
Évêque couronné
Évêque étoilé, Monsieur l'abbé
Verrue titête
Tambour rayé
Tambour brésilien
Verrue de roche
dragonnet, curé, évêque
Grand tambour
Colon stardrum (En)
Ombrine rayée
Ombrine pétope
Thazard, Wahoo
Bonitou
Auxide
Thonine commune
Listao, Bonite
Pwason jwif, Soley, Sol
Pwason jwif, lougawou, Soley, Sol
Pawokè, Vant sal
Pawokè, Vant sal
Pawokè, Vant sal
Pawokè, Vant sal
Pawokè, Vant sal
Pawokè, Vant sal
Parrotfishes
Pawokè, Vant sal
Pawòkèt roz, boutou, potpot
Pawokè, Vant sal
Pawokè, Vant sal
Pawokè, Vant sal
Pawokè, Vant sal
Pawòkèt labou, resif, bas, boutou,
Pawòkèt ble, boutou, potpot
Pawokè, Vant sal
Tchara, wawou
Bonit reye
Taza
Ton
AphiaID
Alph3
FB-SLB
273731
273743
281571
276659
276666
276669
159291
276676
276677
276679
276688
127004
127005
280154
127006
159428
277118
293635
276042
159300
276049
276052
276062
276064
273771
273772
273773
273774
273775
273777
159301
273780
276072
314211
314213
276079
159315
276097
276129
275307
151158
281837
282139
159333
276154
273794
159338
127014
236487
293552
127017
127018
DSF
DSF
DSF
DSF
DSF
DSF
TGE
DSF
DSF
DSF
DSF
HTU
PQR
CBK
CBA
RRB
OUR
QCJ
USX
USU
USX
USS
USN
UVT
QHI
RMF
PWT
RSY
PWT
PWT
QZV
QRV
BIH
CDX
CDX
YNJ
EQL
CDX
LRJ
CKM
CKA
CDX
EQA
BDM
FYX
UMB
UMC
WAH
BLT
FRI
LTA
SKJ
1999
1978
1950
1997
1905
1
1905
1994
1997
1949
1
1950
1992
1950
1950
1963
1950
1949
1978
1950
1978
1950
1924
1978
1999
1949
0
1949
0
1950
1978
1950
1949
1978
1978
0
1997
1894
1950
1978
1997
1949
0
0
1993
1991
1978
1983
1983
1983
1983
1983
FAO
OBIS
GBIF
Pplt
1978
1999
1999
1999
1999
1999
0
0
0
1999
1999
0
1999
0
0
0
0
0
0
0
0
0
0
0
0
1999
1999
1978
1
2002
1978
1978
1978
1978
1978
0
2002
2002
1978
1978
1978
1978
2002
1978
2002
1978
1978
1978
1978
0
1978
1978
1999
1
0
1
0
0
1
0
1999
1
0
0
1
1999
1927
1927
1927
1905
1953
1857
1943
1927
1927
1927
1946
1946
1927
1950
1963
1950
1953
1
1950
1945
1927
1924
1953
1999
1930
1953
1857
1865
1946
1927
1930
1927
0
0
0
1999
1894
1857
1947
0
1936
1999
p3
p3
p3
p3
p3
p3
p3
p1
p3
p3
p3
p3
p3
p2
p7
p10
p4
p4
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
p4
p3
p3
p5
p4
p4
p5
p3
p3
p5
p5
p5
p5
p3
p1
p5
p5
p5
p7
p7
p7
p8
p8
1978
1978
1978
1978
1978
1978
2002
1978
1978
1978
1978
1978
1978
1978
0
0
0
1992
0
0
0
1992
1993
1857
0
0
0
0
1983
1965
�186
famille
Poissons osseux (suite)
Scombridae (suite)
Scophthalmidae
Scorpaenidae
Serranidae
Nom scientifique
Sarda sarda (Bloch, 1793)
Scomberomorus cavalla (Cuvier, 1829)
Scomberomorus regalis (Bloch, 1793)
Thunnus alalunga (Bonnaterre, 1788)
Thunnus albacares (Bonnaterre, 1788)
Thunnus atlanticus (Lesson, 1831)
Thunnus obesus (Lowe, 1839)
Thunnus thynnus (Linnaeus, 1758)
Scophthalmus aquosus (Mitchill, 1815)
Pontinus castor Poey, 1860
Pterois volitans (Linnaeus, 1758)
Scorpaena albifimbria Evermann & Marsh, 1900
Scorpaena brasiliensis Cuvier, 1829
Scorpaena elachys Eschmeyer, 1965
Scorpaena grandicornis Cuvier, 1829
Scorpaena inermis Cuvier, 1829
Scorpaena plumieri Bloch, 1789
Scorpaenodes caribbaeus Meek & Hildebrand, 1928
Alphestes afer (Bloch, 1793)
Baldwinella aureorubens (Longley, 1935)
Bullisichthys caribbaeus Rivas, 1971
Cephalopholis argus Schneider, 1801
Cephalopholis cruentata (Lacepède, 1802)
Cephalopholis fulva (Linnaeus, 1758)
Dermatolepis inermis (Valenciennes, 1833)
Diplectrum bivittatum (Valenciennes, 1828)
Diplectrum formosum (Linnaeus, 1766)
Diplectrum radiale (Quoy & Gaimard, 1824)
Epinephelus adscensionis (Osbeck, 1765)
Epinephelus guttatus (Linnaeus, 1758)
Epinephelus itajara (Lichtenstein, 1822)
Epinephelus morio (Valenciennes, 1828)
Epinephelus striatus (Bloch, 1792)
Gonioplectrus hispanus (Cuvier, 1828)
Hypoplectrus aberrans Poey, 1868
Hypoplectrus chlorurus (Cuvier, 1828)
Hypoplectrus gummigutta (Poey, 1851)
Hypoplectrus guttavarius (Poey, 1852)
Hypoplectrus indigo (Poey, 1851)
Hypoplectrus liberte Victor & Marks, 2018
Hypoplectrus maculiferus Poey, 1871
Hypoplectrus nigricans (Poey, 1852)
Hypoplectrus puella (Cuvier, 1828)
Hypoplectrus unicolor (Walbaum, 1792)
Hyporthodus flavolimbatus (Poey, 1865)
Hyporthodus mystacinus (Poey, 1852)
Hyporthodus nigritus (Holbrook, 1855)
Hyporthodus niveatus (Valenciennes, 1828)
Liopropoma rubre Poey, 1861
Mycteroperca bonaci (Poey, 1860)
Mycteroperca interstitialis (Poey, 1860)
Mycteroperca tigris (Valenciennes, 1833)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES VÉRTÉBRÉS (suite)
Bonite à dos rayé
Thazard barré
Thazard franc
Germon
Albacore
Thon à nageoires noires
Thon obèse
Thon rouge du Nord
Turbot de sable
Rascasse longnez
Laffe volant, Poisson lion
Coral scorpionfish (En)
Rascasse brésilienne
Dwarf scorpionfish (En)
Poisson scorpion à tentacules
Rascasse champignon
Vingt-quatre heures
Petite rascasse de récif
Varech
Coné dorée
Pugnose bass (En)
Vieille la prude
Vieille de roche, Coné essain
Coné ouatalibi, Tanche
Mérou marbré
Serran fil
Serran de sable
Serran des lagunes
Grand gueule noir
Grand gueule rouge
Mérou géant
Mérou rouge
Mérou rayé, Vieille franche
Pavillon espagnol
Hamlet
Hamlet queue jaune
Hamlet doré
Hamlet timide
Hamlet indigo
Striped hamlet (En)
Hamlet bicolore
Hamlet noir
Hamlet marbré
Hamlet unicolore
Mérou aile jaune
Mérou brouillard, mérou huit raies
Mérou varsovie (polonais)
Mérou neige
Peppermint basslet (En)
Badèche bonaci
Badèche gueule jaune
Badèche tigre
Taza
Kejon
Bonit-Ton
Bonit
Zizirit
Preval, fenk vini, minista
Vennkatrè
Zizirit
Zizirit
Zizirit
Zizirit
Zizirit
Zizirit
Neg
Neg
Neg
Neg
Fenfen, nèg, vyèj
Groupers
Neg
Neg
Neg
Neg
Fenfen
Grandyol
Neg
Vieille rouge
Nég, Nagul, Tienne
Neg
Neg
Neg
Golden hamlet
Neg
Indigo hamlet
Mero rayado
Neg
Black hamlet
Neg
Neg
Neg
Neg
Neg
Neg
Neg
Neg
Croupers
Croupers
AphiaID
Alph3
FB-SLB
FAO
OBIS
GBIF
Pplt
127021
159340
273819
127026
127027
159343
127028
127029
158907
274682
159559
274697
159562
274707
274711
274717
159564
274743
279567
1015364
280007
218174
279146
279148
276920
276176
159350
276184
159351
159352
159353
159354
159222
280924
281112
281113
281115
281116
281117
1340380
314657
281118
281120
281121
475077
475099
475100
475101
275954
159231
273878
273884
BON
KGM
CER
ALB
YFT
BLF
BET
BFT
FLD
SCO
PZO
SCS
SBJ
SCS
SGN
SCS
SMW
SCO
LSF
HNE
BSX
CFF
CFL
CFJ
BSX
BSX
PES
DLD
EFD
EEU
EET
GPR
GPN
GOH
BSX
HCO
BSX
BSX
BSX
BSX
BSX
HNP
BSX
HUN
EEL
EEY
ELG
EFV
BSX
MAB
MKN
MKT
0
1949
1885
0
1983
1983
1983
1983
0
1978
2010
1969
1950
1997
0
1997
1894
1896
1950
1997
0
0
1949
1950
1993
0
1997
1950
1897
1894
1950
1949
1950
1993
1994
0
1950
1994
1994
2018
0
1994
1994
1950
1993
1993
1993
0
1997
1993
1950
1993
0
1978
1978
1978
1978
1978
1978
1978
0
1978
0
1997
1
1992
1992
1992
1992
1992
1
0
0
1999
0
0
0
0
1
1999
1927
0
1
0
1967
1999
1
0
0
0
0
1
0
1
1
0
0
1
0
0
0
2015
0
0
1999
0
0
0
0
0
1999
0
0
1
1877
1936
1857
1955
0
1965
1955
0
0
0
0
1959
1927
0
1927
0
1894
1896
1
0
0
1865
1950
1857
0
1936
0
1950
1897
1857
1927
1950
1857
0
1953
0
1950
0
1959
2015
0
1994
1959
1950
0
0
0
1980
1959
0
1950
0
p7
p7
p7
p8
p8
p8
p8
p8
p1
p5
p3
p5
p5
p5
p4
p5
p3
p3
p4
p5
p5
p3
p3
p3
p3
p5
p5
p5
p3
p3
p3
p3
p3
p5
p3
p3
p3
p3
p3
p1
p3
p3
p3
p3
p5
p5
p5
p5
p3
p3
p3
p3
2002
2002
0
2002
2002
1978
2002
1978
0
1978
1978
1978
0
1978
1978
1978
1978
1978
0
2002
2002
2002
2002
2002
2002
2002
2002
2002
1978
2002
1978
1978
1978
1978
1978
�187
famille
Poissons osseux (suite)
Serranidae (suite)
Sparidae
Sphyraenidae
Sternoptychidae
Stomiidae
Stromateidae
Symphysanodontidae
Syngnathidae
Nom scientifique
Mycteroperca venenosa (Linnaeus, 1758)
Paranthias furcifer (Valenciennes, 1828)
Pseudogramma gregoryi (Breder, 1927)
Rypticus bistrispinus (Mitchill, 1818)
Rypticus bornoi Beebe & Tee-Van, 1928
Rypticus carpenteri Baldwin & Weigt, 2012
Rypticus randalli Courtenay, 1967
Rypticus saponaceus (Bloch & Schneider, 1801)
Rypticus subbifrenatus Gill, 1861
Serraniculus pumilio Ginsburg, 1952
Serranus atrobranchus (Cuvier, 1829)
Serranus baldwini (Evermann & Marsh, 1899)
Serranus flaviventris (Cuvier, 1829)
Serranus maytagi Robins & Starck, 1961
Serranus phoebe Poey, 1851
Serranus tabacarius (Cuvier, 1829)
Serranus tigrinus (Bloch, 1790)
Serranus tortugarum Longley, 1935
Archosargus rhomboidalis (Linnaeus, 1758)
Calamus bajonado (Bloch & Schneider, 1801)
Calamus calamus (Valenciennes, 1830)
Calamus penna (Valenciennes, 1830)
Calamus pennatula Guichenot, 1868
Calamus proridens Jordan & Gilbert, 1884
Diplodus caudimacula (Poey, 1860)
Lagodon rhomboides (Linnaeus, 1766)
Pagrus pagrus (Linnaeus, 1758)
Sphyraena barracuda (Edwards, 1771)
Sphyraena guachancho Cuvier, 1829
Sphyraena picudilla Poey, 1860
Argyropelecus aculeatus Valenciennes, 1850
Polyipnus asteroides Schultz, 1938
Polyipnus laternatus Garman, 1899
Astronesthes cyaneus (Brauer, 1902)
Astronesthes richardsoni (Poey, 1852)
Bathophilus digitatus (Welsh, 1923)
Chauliodus sloani Bloch & Schneider, 1801
Eustomias brevibarbatus Parr, 1927
Eustomias longibarba Parr, 1927
Grammatostomias flagellibarba Holt & Byrne, 1910
Idiacanthus fasciola Peters, 1877
Leptostomias gladiator (Zugmayer, 1911)
Stomias affinis Günther, 1887
Peprilus paru (Linnaeus, 1758)
Symphysanodon berryi Anderson, 1970
Amphelikturus dendriticus (Barbour, 1905)
Bryx dunckeri (Metzelaar, 1919)
Bryx randalli (Herald, 1965)
Cosmocampus brachycephalus (Poey, 1868)
Cosmocampus elucens (Poey, 1868)
Hippocampus comes Cantor, 1849 *
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES VÉRTÉBRÉS (suite)
Badèche de roche
Badèche créole
Reef-bass (En)
Freckled soapfish (En)
Large-spotted soapfish (En)
Savon tacheté
Plain soapfish (En)
Poisson savon, savon
Savon tacheté
Pygmy sea bass
Blackear bass (En)
Serran lanterne
Serran de mangrove
Palid bass (En)
Serran tatler
Serran tabac
Serran tigré
Serran craie
Rondeau brème
Daubenet trembleur
Daubenet loto
Daubenet bélier
Daubenet plume
Daubenet titête
Sar argenté
Sar salème
Pagre rouge
Barracuda
Bécune guachanche
Bécune chandelle, Picudilla
Hache d'argent à épines
Dix-bardes à épines courtes
Spiny hatchetfish (En)
Dragon-saumon de Richardson
Scaleless Black Dragonfish (En)
Chauliode de sloane
Pez dragón pelado (Sp)
Idiacanthe ruban
Scaleless dragonfish (En)
Scaly dragonfish (En)
Stromate lune
Slope Bass (En)
Hippocampe
Pugnose Pipefish (En)
Ocellated pipefish (En)
Crested pipefish (En)
Syngnathe annelé
Hippocampe à queue tigrée
Croupers
Creole-fish
Neg
Neg
Neg
Neg
Neg
Neg
Neg
Neg
Neg
Neg
Neg
Neg
Neg
Neg
Harlequin serranid
Neg
Valèt
Diapav
Djol pave
Diapav
Diapav
Diapav
Odo
Valèt
Kwokwo
Bekin
Guaguanche
AphiaID
Alph3
FB-SLB
FAO
OBIS
GBIF
Pplt
273885
282084
278293
275958
275959
712600
275962
275963
275964
282762
273891
273893
273896
273900
273903
273908
273909
273910
159239
159241
159242
159245
275972
275973
305181
159249
127063
345843
159814
273984
127306
158839
274986
275012
158843
127330
127338
158852
127344
127353
127354
127355
158736
159827
159831
316266
159444
276235
278058
278059
275191
MKV
TIF
EDG
BSX
BSX
BSX
BSX
RYC
QZZ
RLP
RNB
BAS
BAS
BAS
BAS
BAS
BAS
BAS
AVB
CBD
CMV
CFE
PRG
CFO
DIG
LGO
RPG
GBA
YRU
YRP
SEE
HAF
HAF
RQX
IDD
BTU
CDN
RQX
EUO
GMF
IDF
RQX
QZY
ERP
ERP
VUX
VUX
VUX
VUX
VUX
HWF
1950
1993
1997
0
1999
2012
1950
1978
1997
2016
1997
1997
1
0
1997
1950
1950
1997
1950
1978
1911
1978
1949
0
1978
1
2018a
1978
1950
1950
1981
0
1965
1
0
1990
0
1963
0
0
0
1990
1990
1949
0
2006
1999
1999
0
0
0
1978
1978
1
1
1999
0
0
0
0
1999
1999
0
0
1999
0
0
0
0
0
0
0
0
1
0
0
0
0
0
0
0
0
0
0
1
1
1
1
0
0
0
0
0
0
0
0
0
1
0
1999
1999
0
0
1
1950
1953
1959
1927
1927
1970
1945
1857
1953
0
0
1959
1950
1965
0
1950
1959
1999
1946
1946
1911
0
1
0
0
1950
0
1943
1950
1950
1970
1963
0
1922
0
0
1962
1963
1990
1963
1970
0
2011
1857
1965
0
1927
1999
1953
1927
0
p3
p3
p3
p5
p3
p3
p1
p5
p5
p4
p5
p5
p3
p5
p5
p3
p3
p3
p3
p3
p3
p4
p3
p3
p3
p1
p5
p7
p7
p7
p9
p9
p9
p9
p9
p9
p9
p9
p9
p9
p9
p9
p9
p7
p3
p1
p1
p1
p1
p3
p3
1978
1978
1978
1978
1978
1978
1978
1978
0
0
1978
1978
1978
1978
0
�188
famille
Poissons osseux (suite)
Syngnathidae (suite)
Synodontidae
Tetraodontidae
Trachichthyidae
Trichiuridae
Triglidae
Tripterygiidae
Xiphiidae
Élasmobranches - Raies
Dasyatidae
Myliobatidae
Potamotrygonidae
Pristidae
Rajidae
Urotrigonidae
Elasmobranches - Requins
Alopiidae
Carcharhinidae
Nom scientifique
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES VÉRTÉBRÉS (suite)
Hippocampus erectus Perry, 1810
Hippocampus guttulatus Cuvier, 1829 *
Hippocampus reidi Ginsburg, 1933
Micrognathus crinitus (Jenyns, 1842)
Microphis brachyurus brachyurus (Bleeker, 1854)
Microphis brachyurus lineatus (Kaup, 1856)
Syngnathus floridae (Jordan & Gilbert, 1882)
Syngnathus pelagicus Linnaeus, 1758
Saurida suspicio Breder, 1927
Synodus bondi Fowler, 1939
Synodus foetens (Linnaeus, 1766)
Synodus intermedius (Spix & Agassiz, 1829)
Synodus poeyi Jordan, 1887
Synodus saurus (Linnaeus, 1758)
Synodus synodus (Linnaeus, 1758)
Trachinocephalus myops (Forster, 1801)
Canthigaster rostrata (Bloch, 1786)
Colomesus psittacus (Bloch & Schneider, 1801)
Lagocephalus laevigatus (Linnaeus, 1766)
Lagocephalus lagocephalus (Linnaeus, 1758)
Sphoeroides greeleyi Gilbert, 1900
Sphoeroides nephelus (Goode & Bean, 1882)
Sphoeroides spengleri (Bloch, 1785)
Sphoeroides testudineus (Linnaeus, 1758)
Hoplostethus mediterraneus Cuvier, 1829
Zu cristatus (Bonelli, 1819)
Benthodesmus tenuis (Günther, 1877)
Evoxymetopon taeniatus Gill, 1863
Trichiurus lepturus Linnaeus, 1758
Bellator egretta (Goode & Bean, 1896)
Prionotus punctatus (Bloch, 1793)
Enneanectes altivelis Rosenblatt, 1960
Enneanectes boehlkei Rosenblatt, 1960
Enneanectes jordani (Evermann & Marsh, 1899)
Xiphias gladius Linnaeus, 1758
Hippocampe rayé
Hippocampe moucheté
Hippocampe long nez
Banded pipefish (En
Syngnathe à queue courte
Opossum pipefish (En)
Dusky pipefish (En)
Siphonostome, Vipère de mer
Suspicious lizardfish (En)
Sharpnose lizardfish (En)
Anoli des plages
Anoli de sable
Anoli Poey
Anoli saury, Poisson-lézard rayé
Anali commun
Anoli serpent
Tétrodon nain
Compère à bandes
Compère lisse
Compère lièvre
Compère vert
Compère foutre
Compère collier
Compère corotuche
Hoplostète argenté
Trachyptère ventru
Sabre fleuret
Poisson sabre canal
Poisson sabre commun
Streamer searobin (En)
Grondin poule
Lofty triplefin (En)
Blennie trois-nageoires à bandes
Redeye triplefin (En)
Espadon
Dasyatis hastata (DeKay, 1842)
Hypanus americanus (Hildebrand & Schroeder, 1928)
Hypanus guttatus (Bloch & Schneider, 1801)
Hypanus say (Lesueur, 1817)
Aetobatus narinari (Euphrasen, 1790)
Styracura schmardae (Werner, 1904)
Pristis pectinata Latham, 1794
Raja eglanteria Bosc, 1800
Urobatis jamaicensis (Cuvier, 1816)
Pastenague américaine
Pastenague long-nez
Bluntnose stingray (En)
Aigle de mer léopard
Pastenague chupare
Poisson-scie
Raie blanc nez
Raie ronde
Alopias superciliosus Lowe, 1841
Carcharhinus acronotus (Poey, 1860)
Carcharhinus brevipinna (Müller & Henle, 1839)
Carcharhinus falciformis (Müller & Henle, 1839)
Carcharhinus leucas (Müller & Henle, 1839)
Carcharhinus limbatus (Müller & Henle, 1839)
Renard gros yeux
Requin nez noir
Requin tisserand
Requin soyeux
Requin bouledogue
Requin pointes noires
AphiaID
Alph3
FB-SLB
159445
154776
159446
278317
223864
159449
159450
367332
272119
1014889
158758
158759
158760
126372
126373
158884
127411
280367
158933
127414
275276
275280
158935
158936
126404
126529
159834
159836
127089
276272
276288
280677
280679
280681
127094
HIC
HIC
HIC
VUX
QBV
VUX
SWY
SWY
SZX
LIX
LIX
LIX
LIX
SDR
DYZ
LIX
PUX
KOP
LFL
LGH
PUA
PUA
QBY
FDT
HPR
ZUC
BWN
CUT
LHT
SRA
PQT
EAV
VVX
VVX
SWO
1999
0
1950
1997
1997
1927
2006
1927
1997
2013
1950
1896
1997
2016
1997
1997
1897
0
1897
0
2016
1978
1900
1978
0
1981
0
1993
1993
0
1950
0
1999
0
0
Re
Re, santi pise
271435
1042856
271434
1042865
217426
1297575
105848
158556
283086
STT
RDH
RDU
JDY
MAE
DHH
RPP
JFE
RUJ
Reken
Reken, Vach
Reken, Vach
Reken
Reken
105835
158508
105788
105789
105792
105793
BTH
CCN
CCB
FAL
CCE
CCL
Pwason mabouya
Espadon
Re
FAO
OBIS
GBIF
Pplt
1978
0
1
0
1999
0
0
0
0
0
0
1
0
0
0
1999
0
1999
1
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1999
0
1992
0
1982
1922
1959
1943
1927
0
1927
0
1946
1927
1896
1963
0
1999
1927
1897
0
1897
2011
0
1927
1900
1927
1963
2011
1963
0
1936
1965
1950
1959
1999
1927
0
p4
p4
p3
p3
p1
p4
p1
p4
p1
p5
p5
p5
p5
p5
p5
p5
p3
p1
p7
p7
p1
p1
p4
p1
P5
p7
p7
p5
p5
p5
p5
p3
p3
p3
p8
1950
1978
1978
1997
1978
1978
0
2018a
1949
1978
1978
2002
1978
1978
0
0
2002
0
0
0
1
1
0
1
0
1
1950
0
0
0
1
0
0
1857
p1
p5
p5
p1
p5
p1
p1
p5
p1
0
1984
0
1984
1984
1897
0
1978
1978
1978
1978
1978
1997
1
0
1972
1
0
0
0
0
1972
0
1897
p8
p3
p8
p8
p5
p7
2002
2002
2002
2002
0
2002
2002
2002
0
1978
2002
2002
1978
1978
1978
0
0
1978
2002
0
�189
famille
Nom scientifique
Elasmobranches - Requins (suite)
Carcharhinidae (suite)
Carcharhinus longimanus (Poey, 1861)
Carcharhinus perezii (Poey, 1876)
Carcharhinus signatus (Poey, 1868)
Galeocerdo cuvier (Péron & Lesueur, 1822)
Negaprion brevirostris (Poey, 1868)
Prionace glauca (Linnaeus, 1758)
Rhizoprionodon porosus (Poey, 1861)
Rhizoprionodon terraenovae (Richardson, 1836)
Etmopteridae
Etmopterus hillianus (Poey, 1861)
Etmopterus robinsi Schofield & Burgess, 1997
Ginglymostomatidae
Ginglymostoma cirratum (Bonnaterre, 1788)
Lamnidae
Isurus oxyrinchus Rafinesque, 1810
Rhincodontidae
Rhincodon typus Smith, 1828
Pentanchidae
Galeus antillensis Springer, 1979
Galeus springeri Konstantinou & Cozzi, 1998
Scyliorhinidae
Scyliorhinus boa Goode & Bean, 1896
Sphyrnidae
Sphyrna lewini (Griffith & Smith, 1834)
Sphyrna mokarran (Rüppell, 1837)
Sphyrna tiburo (Linnaeus, 1758)
Sphyrna zygaena (Linnaeus, 1758)
Squalidae
Squalus cubensis Howell Rivero, 1936
Triakidae
Mustelus canis (Mitchill, 1815)
Mammifères
Balaenopteridae
Balaenoptera acutorostrata Lacépède, 1804
Balaenoptera borealis Lesson, 1828
Balaenoptera edeni Anderson, 1878
Balaenoptera musculus (Linnaeus, 1758)
Balaenoptera physalus (Linnaeus, 1758)
Megaptera novaeangliae (Borowski, 1781)
Delphinidae
Delphinus delphis Linnaeus, 1758
Feresa attenuata Gray, 1874
Globicephala macrorhynchus Gray, 1846
Grampus griseus (G. Cuvier, 1812)
Lagenodelphis hosei Fraser, 1956
Orcinus orca (Linnaeus, 1758)
Peponocephala electra (Gray, 1846)
Pseudorca crassidens (Owen, 1846)
Stenella attenuata (Gray, 1846)
Stenella clymene (Gray, 1850)
Stenella coeruleoalba (Meyen, 1833)
Stenella frontalis (Cuvier, 1829)
Stenella longirostris (Gray, 1828)
Steno bredanensis (G. Cuvier in Lesson, 1828)
Tursiops truncatus (Montagu, 1821)
Kogiidae
Kogia breviceps (de Blainville, 1838)
Kogiidae (suite)
Kogia sima (Owen, 1866)
Phocidae
Monachus tropicalis Gray, 1850
Physeteridae
Physeter macrocephalus Linnaeus, 1758
Trichechidae
Trichechus manatus Linnaeus, 1758
Ziphiidae
Mesoplodon densirostris (de Blainville, 1817)
Mesoplodon europaeus (Gervais, 1855)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES VÉRTÉBRÉS (suite)
Requin océanique
Requin de récif
Requin de nuit
Requin tigre commun
Requin citron
Peau bleue
Requin aiguille antillais
Requin à nez pointu
Sagre antillais
West Indian lanternshark (En)
Requin nourrice
Taupe bleu
Requin baleine
Chien de mer des Antilles
Chien de mer rayé
Roussette boa
Requin marteau halicorne
Grand requin-marteau
Requin-marteau tiburo
Requin marteau commun
Aiguillat cubain
Emissole douce
Petit rorqual
Baleine noire
Rorqual de Bryde
Baleine bleue
Rorqual commun
Baleine à bosse
Dauphin commun
Orque pygmée
Globicéphale tropical
Dauphin de Riso
Dauphin de Fraser
Epaulard
Peponocephale
Fausse orque
Dauphin tacheté
Dauphin clymène
Dauphin rayé
Dauphin tacheté de l'Atlantique
Dauphin longirostre
Dauphin à bec étroit
Grand souffleur
Cachalot nain
Cachalot nain
Phoque moine des Caraïbes
Cachalot
Lamentin des Caraïbes
Baleine à bec de Blainville
Baleine à bec de Gervais
Reken, Vach
Reken
Reken, Vach
Reken, Vach
Reken
Reken, Vach
Reken, Vach
Reken
squales
Rekin
Pantoufouye
AphiaID
Alph3
FB-SLB
FAO
OBIS
GBIF
Pplt
105794
271324
105798
105799
105800
105801
271328
158510
158522
271641
105846
105839
105847
271354
271367
271369
105816
105817
158517
105819
158524
158518
OCS
CCV
CCS
TIG
NGB
BSH
RHR
RHT
ETN
SHX
GNC
SMA
RHN
GAA
GAU
SYA
SPL
SPK
SPJ
SPZ
QUC
CTI
1984
1984
0
1917
1984
1984
1984
1
0
1963
1895
1984
1937
1965
1965
1984
1984
1984
0
1984
1984
1984
1978
1978
1978
1978
2002
1978
1978
0
0
0
1978
1978
1978
2002
0
2002
1978
2002
1978
0
1978
1978
1955
1997
0
1997
0
1995
0
0
1
1
0
1998
1
1
1
0
1972
1
0
0
1
0
1972
0
0
1917
0
0
1
1
0
1963
1895
0
0
0
0
1972
0
0
1
0
0
p8
p3
p8
p8
p3
p8
p8
p5
p5
p5
p7
p8
p8
p5
p5
p10
p7
p7
p1
p7
p5
p5
137087
137088
242603
137090
137091
137092
137094
137095
137096
137098
137099
137102
137103
137104
137105
137106
137107
137108
137109
137110
137111
137113
159025
255020
137119
159509
137122
137123
MIW
SIW
BRW
BLW
FIW
HUW
DCO
KPW
SHW
DRR
FRD
KIW
MEW
FAW
DPN
DCL
DST
DSA
DSI
RTD
DBO
PYW
DWW
SKC
SPW
WIM
BBW
BGW
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1998
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
1993
2002
1993
1993
0
0
0
0
0
1913
0
0
0
0
0
1866
0
0
1995
0
0
1995
0
0
0
0
0
0
1913
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1940
0
0
0
0
0
0
0
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p7
p1
p7
p1
p7
p7
�190
famille
Mammifères (suite)
Ziphiidae (suite)
Tortues marines
Cheloniidae
Dermochelyidae
Crustacés
Crustacés - Amphipodes
Aoridae
Hadziidae
Leucothoidae
Maeridae
Talitridae
Crustacés - Anatifes
Lepadidae
Crustacés - Copépodes
Aetideidae
Ameiridae
Bomolochidae
Calanidae
Caligidae
Candaciidae
Clausocalanidae
Euchaetidae
Heterorhabdidae
Lernanthropidae
Paracalanidae
Nom scientifique
Ziphius cavirostris Cuvier, 1823
Caretta caretta (Linnaeus, 1758)
Chelonia mydas (Linnaeus, 1758)
Eretmochelys imbricata (Linnaeus, 1766)
Lepidochelys kempii Garman, 1880
Lepidochelys olivacea (Eschscholtz, 1829)
Dermochelys coriacea (Vandelli, 1761)
Grandidierella megnae (Giles, 1890)
Metaniphargus (Guadzia) crenatus Stock, 1985
Metaniphargus (Caribdzia) haitianus Stock, 1985
Metaniphargus (Caribdzia) longipes Stock, 1977
Zombiweckelia parvipalpus Stock, 1985
Anamixis hanseni Stebbing, 1897
Quadrivisio lutzi (Shoemaker, 1933)
Platorchestia platensis (Krøyer, 1845)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES VÉRTÉBRÉS (suite)
Baleine à bec de Cuvier
Tortue caouane
Tortue verte
Tortue Caret
Tortue de Kemp
Tortue olivâtre
Tortue Luth
LA FAUNE MARINE – LES INVÉRTÉBRÉS
Amphipode
Amphipode
Amphipode
Amphipode
Tòti
Karèt, Tòti
Tòti
Tòti
Tòti
Kawann
AphiaID
Alph3
FB-SLB
FAO
OBIS
GBIF
Pplt
137127
BCW
1993
1993
0
0
p7
137205
137206
137207
137208
220293
137209
TTL
TUG
TTH
LKY
LKV
DKK
1990
1990
1990
0
1990
1990
1990
1990
1990
0
1990
1990
1997
2007
2007
1995
0
1993
0
1959
1959
0
0
0
p7
p11
p11
p11
p11
p11
488814
876175
876164
876166
490545
510221
535464
103217
AQM
AQM
AQM
AQM
AQM
AQM
AQM
AQM
0
0
p4
1981
0
0
0
0
1933
1979
1978
1979
1978
0
1978
1979
2008
0
0
p1
0
0
1970
1960
0
1982
1
1
0
0
0
0
1928
p7
p7
p1
0
0
0
0
0
0
0
1960
1928
0
0
0
0
0
0
0
0
0
p7
p7
p7
p7
p7
p7
p7
p7
Lepas (Anatifa) anatifera Linnaeus, 1758
Anatif commun
733346
ESF
Chirundina streetsii Giesbrecht, 1895
Undeuchaeta plumosa (Lubbock, 1856) *
Antillesia cardisomae Humes, 1958
Cancrincola longiseta Humes, 1957
Acantholochus divaricatus (Cressey & Cressey, 1980)
Mesocalanus tenuicornis (Dana, 1849)
Nannocalanus minor (Claus, 1863) *
Neocalanus robustior (Giesbrecht, 1888) *
Undinula vulgaris (Dana, 1849) *
Caligus atromaculatus Wilson C.B., 1913
Euryphorus brachypterus (Gerstaecker, 1853)
Candacia bispinosa (Claus, 1863) *
Candacia simplex (Giesbrecht, 1889) *
Clausocalanus arcuicornis (Dana, 1849) *
Clausocalanus furcatus (Brady, 1883)
Clausocalanus mastigophorus (Claus, 1863)
Clausocalanus paululus Farran, 1926
Euchaeta marina (Prestandrea, 1833)
Disseta palumbii Giesbrecht, 1889
Lernanthropus amplitergum Pearse, 1951
Calocalanus latus Shmeleva, 1968
Calocalanus longisetosus Shmeleva, 1965
Calocalanus neptunus Shmeleva, 1965
Calocalanus pavo (Dana, 1852)
Calocalanus pavoninus Farran, 1936
Calocalanus plumulosus (Claus, 1863)
Calocalanus styliremis Giesbrecht, 1888
Delibus nudus (Sewell, 1929)
Ischnocalanus gracilis (Tanaka, 1956)
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
104294
104343
348864
349795
356555
104468
104469
104472
104473
349565
135819
220915
220914
104502
104503
104506
104508
104552
345779
352970
104658
104660
104664
104669
104670
211848
104673
363905
104678
JPP
JPP
JPP
JPP
JPP
JPP
JPP
JPP
JPP
JPP
JPP
JPP
JPP
JPP
JPP
JPP
JPP
JPP
JPP
JPP
JPP
JPP
JPP
JPP
JPP
JPP
JPP
JPP
JPP
0
0
0
0
1991
.
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1
1970
1970
1970
1970
0
1965
1970
1970
1970
1970
1970
1970
1970
1
0
1970
1970
1970
1970
1970
1970
1970
1970
1970
p4
p1
p1
p1
p7
p7
p7
p7
p3
p7
p7
p7
p7
p7
p7
p7
�191
famille
Nom scientifique
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES INVÉRTÉBRÉS (suite)
Crustacés (suite)
Crustacés – Copépodes (suite)
Paracalanidae (suite)
Mecynocera clausi Thompson I.C., 1888
Paracalanus aculeatus Giesbrecht, 1888
Paracalanus parvus parvus (Claus, 1863)
Pennellidae
Lernaeolophus sultanus (Milne Edwards, 1840)
Pseudocycnidae
Cybicola buccatus (Wilson C.B., 1922)
Scolecitrichidae
Amallothrix tenuiserrata (Giesbrecht, 1893)
Scolecithrix danae (Lubbock, 1856)
Crustacés - Isopodes
Aegidae
Rocinela signata Schioedte & Meinert, 1879
Anthuridae
Haliophasma poorei Kensley, 1980
Bopyridae
Bopyrella corneti Markham
Bopyridae
Bopyrella harmopleon Bowman, 1956
Bopyrione synalphei Bourdon & Markham, 1980
Eophrixus subcaudalis (Hay, 1917)
Synsynella choprai (Pearse, 1932)
Synsynella deformans Hay, 1917
Cirolanidae
Bathynomus giganteus A. Milne-Edwards, 1879
Booralana tricarinata Camp & Heard, 1988
Eurydice personata Kensley, 1987
Cymothoidae
Aegathoa oculata (Say, 1818)
Cymothoa oestrum (Linnaeus, 1758)
Glossobius hemiramphi Williams & Bunkley-Williams, 1985
Mothocya bermudensis Bruce, 1986
Sphaeromatidae
Paracerceis caudata (Say, 1818)
Crustacés - Stomatopodes
Bathysquillidae
Bathysquilla microps (Manning, 1961)
Gonodactylidae
Gonodactylellus spinosus (Bigelow, 1893) *
Neogonodactylus curacaoensis (Schmitt, 1924)
Neogonodactylus oerstedii (Hansen, 1895)
Neogonodactylus spinulosus (Schmitt, 1924)
Squillidae
Cloridopsis dubia (H. Milne Edwards, 1837)
Fennerosquilla heptacantha (Chace, 1939)
Gibbesia prasinolineata (Dana, 1852)
Squilla intermedia Bigelow, 1893
Crustacés - Crevettes
Alpheidae
Alpheus armillatus H. Milne Edwards, 1837 [in H. Milne Edwards, 1834-1840]
Alpheus bahamensis Rankin, 1898
Alpheus floridanus Kingsley, 1878
Alpheus immaculatus Knowlton & Keller, 1983
Aristeidae
Aristaeomorpha foliacea (Risso, 1827 in [Risso, 1826-1827])
Aristaeopsis edwardsiana (Johnson, 1868)
Aristeus antillensis A. Milne-Edwards & Bouvier, 1909
Cerataspis monstrosus Gray, 1828
Aristeidae (suite)
Hepomadus tener Smith, 1884
Benthesicymidae
Benthoecetes bartletti (Smith, 1882)
Callichiridae
Glypturus acanthochirus Stimpson, 1866
Lysmatidae
Lysmata ankeri Rhyne & Lin, 2006
Palaemonidae
Ancylomenes pedersoni (Chace, 1958)
Cuapetes americanus (Kingsley, 1878)
Macrobrachium acanthurus (Wiegmann, 1836)
AphiaID
Alph3
FB-SLB
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
Copépode
104616
104681
745865
135996
571976
356949
104821
JPP
JPP
JPP
JPP
JPP
JPP
JPP
Isopode
256479
255470
258423
259347
255228
263448
263449
259252
259338
256613
258695
118888
256807
256814
261817
ISH
ISH
ISH
ISH
ISH
ISH
ISH
ISH
ISH
ISH
ISH
ISH
ISH
ISH
ISH
ISH
136116
408915
408942
408949
408952
409227
409249
409252
409351
SVX
SVX
SVX
SVX
SVX
OII
SQY
SQY
SQY
0
0
2003
0
2003
2003
2003
421730
421731
240707
514897
158326
240796
158327
589796
107084
107087
421822
515360
514493
514508
421685
DCP
DCP
DCP
DCP
ARS
SSH
ANJ
ARI
ARI
DCP
CZP
DCP
PAL
PAL
HUK
0
Giant isopod (En)
Squille, Mantis shrimp (En)
Squille, Mantis shrimp (En)
Squille, Mantis shrimp (En)
(Squille)
Squille de lagune
(Squille)
Squille, Mantis shrimp (En)
Squille, Mantis shrimp (En)
Banded snapping shrimp (En)
Snapping shrimp (En)
Sand snapping shrimp (En)
Gambon rouge
Crevette impériale
Crevette pourprée
Gamba prawns (En)
Shrimps (En)
Gamba de Bartlett
Ghost shrimp (En)
Crevette menthe
Crevette nettoyeuse de Pederson
American grass shrimp (En)
Bouquet cannelle
Ekrevis
FAO
OBIS
GBIF
Pplt
0
0
0
0
0
0
0
1970
1970
1970
0
0
1970
1970
0
0
0
1970
1
0
0
p7
p7
p7
pa
pa
p7
p7
0
1925
1
pa
1963
0
1960
1961
0
0
1988
1930
1930
1930
1
1984
1941
1925
0
1961
1963
1
1960
1961
1961
2014
1988
1930
1930
1930
1
1
1941
0
0
0
0
0
0
0
0
0
1
1937
1959
1937
0
0
1963
1953
0
p10
0
0
0
1
1
1925
1981
1963
1963
1963
1970
1970
1970
1930
2003
0
1925
1937
p4
p4
p6
0
0
1989
0
2003
0
0
2002
0
0
0
0
0
2006b
0
0
0
2002
0
1970
0
1970
1970
1970
0
0
0
0
0
pa
pa
pa
pa
pa
p1
p6
p1
pa
pa
pa
pa
p6
p1
p6
p1
P1
p6
p1
p6
p6
p10
p10
p10
p10
p10
p1
p1
p1
p1
p1
�192
famille
Crustacés (suite)
Crustacés - Crevettes (suite)
Palaemonidae (suite)
Nom scientifique
Macrobrachium carcinus (Linnaeus, 1758)
Macrobrachium heterochirus (Wiegmann, 1836)
Periclimenaeus wilsoni (Hay, 1917)
Penaeidae
Metapenaeopsis smithi (Schmitt, 1924)
Parapenaeus longirostris (Lucas, 1846)
Penaeus aztecus Ives, 1891 *
Penaeus duorarum Burkenroad, 1939 *
Penaeus schmitti Burkenroad, 1936
Penaeus setiferus (Linnaeus, 1767)
Penaeus subtilis (Pérez Farfante, 1967)
Rimapenaeus similis (Smith, 1885)
Rhynchocinetidae
Cinetorhynchus rigens (Gordon, 1936)
Sergestidae
Sergestes atlanticus H. Milne Edwards, 1830
Solenoceridae
Hadropenaeus affinis (Bouvier, 1906)
Pleoticus robustus (Smith, 1885)
Stenopodidae
Stenopus hispidus (Olivier, 1811)
Stylodactylidae
Stylodactylus rectirostris A. Milne-Edwards, 1883
Crustacés - Homards, Langoustes
Nephropidae
Acanthacaris caeca A. Milne-Edwards, 1881
Nephropsis neglecta Holthuis, 1974
Nephropsis rosea Spence Bate, 1888
Palinuridae
Panulirus argus (Latreille, 1804)
Panulirus guttatus (Latreille, 1804)
Panulirus laevicauda (Latreille, 1817)
Polychelidae
Stereomastis sculpta (Smith, 1880) *
Willemoesia leptodactyla (Thomson, 1873)
Scyllaridae
Bathyarctus faxoni (Bouvier, 1917)
Parribacus antarcticus (Lund, 1793)
Scyllarides aequinoctialis (Lund, 1793)
Scyllarus chacei Holthuis, 1960
Crustacés - Crabes
Aethridae
Hepatus pudibundus (Herbst, 1785)
Calappidae
Calappa flammea (Herbst, 1794)
Calappa galloides Stimpson, 1859
Calappa ocellata Holthuis, 1958
Cyclozodion angustum (A. Milne-Edwards, 1880)
Cancridae
Cancer irroratus Say, 1817 *
Carpiliidae
Carpilius corallinus (Herbst, 1783)
Domeciidae
Domecia hispida Eydoux & Souleyet, 1842
Dromiidae
Dromia erythropus (Edwards in Catesby, 1771)
Hypoconcha arcuata Stimpson, 1859
Hypoconcha parasitica (Linnaeus, 1763)
Moreiradromia antillensis (Stimpson, 1859)
Epialtidae
Acanthonyx petiverii H. Milne Edwards, 1834
Chorinus heros (Herbst, 1790)
Epialtus bituberculatus H. Milne Edwards, 1834
Herbstia parvifrons Randall, 1840
Macrocoeloma subparallelum (Stimpson, 1860)
Macrocoeloma trispinosum (Latreille, 1825)
Stenocionops furcatus (Olivier, 1791)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES INVÉRTÉBRÉS (suite)
Bouquet pintade
Bouquet cascade
Clear sponge shrimp (En)
Shrimp (En)
Crevette rose du large
Tritri
crevette royale grise
Tritri
Crevette rodché du nord
Tritri
Crevette ligubam du sud
Tritri
Crevette ligubam du nord
Tritri
Crevette café
Tritri
Crevette gambri jaune
Tritri
Crevette danseuse rouge atlantique
Salicoque royale rouge
Grande crevette nettoyeuse
Chevrèt, Kribich
Langoustine arganelle
(Langoustine), Ruby lobsterette (En)
Langoustine bicolore
Langouste blanche
Roma, Woma
Langouste brésilienne
Woma
Langouste indienne
Woma
Blind lobsters (En)
(Cigales), Slipper lobster (En)
Cigale savate
Cigale marie-carogne
Petite cigale de mer
Migraine pointillée
Migraine flamboyante
Migraine jaune
Migraine ocellée
Migraine bouclée
Tourteau poïnclos
Crabe moro, crabe bombé antillais
Crabe
Crabe spongieux
Granulate shellback crab (En)
Rough shellback crab (En)
Antilles sponge crab (En)
Jacknife spider crab (En)
Shorthorn decorator crab (En)
Variegate spider crab (En)
Crevice spider crab (En)
Crabe
Decorator crab (En)
Furcate spider crab (En)
Mè Oma
AphiaID
Alph3
FB-SLB
246169
587257
421703
377524
107109
395176
246391
582132
762818
762829
377580
107577
107127
240804
158338
210370
421676
MBK
HHQ
PAL
PEZ
DPS
ABS
APS
PNT
PST
PNU
TMY
DCP
SHS
SOZ
RRS
TPD
DCP
0
0
0
0
2016
2018b
2018b
1995
0
2012
0
0
0
0
1977
2013
293250
382865
382867
382891
382896
382899
107700
107702
382935
210364
382909
382969
NTK
NFN
NFI
SLC
NLG
NUL
SJT
LOX
LOS
RRN
YLA
YLX
1991
1991
1991
1991
1991
1991
0
2011
2011
1991
1991
0
344730
158052
241042
421918
421921
158057
422051
209146
241022
421891
421892
421894
421940
422005
421941
441545
442100
421982
421998
HUY
KPF
CRA
KPO
KAT
CRK
CRA
CRA
DRH
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
2005
0
0
0
0
0
FAO
0
0
2002
0
1978
2002
0
1978
2001
1978
1978
1978
1978
1978
1993
0
1993
1993
0
1993
2005
2005
2005
0
0
OBIS
GBIF
Pplt
0
0
0
0
0
0
0
0
0
0
0
0
0
1970
1963
0
0
1958
1937
1930
1922
0
0
0
1944
1930
1946
1925
1
1935
1970
1963
0
1970
p1
p1
p6
p6
p6
p6
p6
p1
p6
p6
p6
p3
p9
p6
p10
p3
p6
0
0
0
0
0
0
1
0
0
0
0
0
0
0
0
1946
0
0
0
0
1
0
1859
1961
p6
p10
p10
p6
p3
p3
p10
p10
p6
p3
p3
p6
0
0
0
0
0
0
0
0
0
0
0
0
0
1858
1
1
1945
1961
1
1930
1
1
0
0
1937
1937
1
1937
1
1927
1927
1859
p1
p5
p5
p6
p6
p6
p1
p3
p1
0
0
0
0
p6
p6
p4
p1
p6
�193
famille
Crustacés (suite)
Crustacés - Crabes (suite)
Epialtidae (suite)
Eriphiidae
Gecarcinidae
Grapsidae
Homolidae
Inachidae
Leucosiidae
Menippidae
Mithracidae (Majidae nv)
Ocypodidae
Oziidae
Panopeidae
Nom scientifique
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES INVÉRTÉBRÉS (suite)
Stenocionops spinosissimus (Saussure, 1857)
Tenspine spider crab (En)
Eriphia gonagra (Fabricius, 1781)
Crabe cagneux
Cardisoma guanhumi Latreille in Latreille, Le Peletier, Serville & Guérin, 1828
Tombourou matoutou
Gecarcinus lateralis (Guérin, 1832)
Blackback land crab (En)
Gecarcinus ruricola (Linnaeus, 1758)
Purple land crab (En), Crabe zombi
Geograpsus lividus (H. Milne Edwards, 1837)
Variegate shore crab (En)
Goniopsis cruentata (Latreille, 1803)
Grapse ensanglanté
Grapsus grapsus (Linnaeus, 1758)
Anglette commune
Pachygrapsus gracilis (de Saussure, 1857)
Dark shore crab (En)
Pachygrapsus transversus (Gibbes, 1850)
Anglette africaine, Crabe marbré
Planes minutus (Linnaeus, 1758)
Crabe de Christophe Colomb
Homola barbata (Fabricius, 1793)
Homole
Anisonotus curvirostris A. Milne-Edwards, 1879 [in A. Milne-Edwards, 1873-1880] Crabe
Anomalothir furcillatus (Stimpson, 1871)
Stenorhynchus seticornis (Herbst, 1788)
Crabe flèche, Crabe Tour Eiffel
Iliacantha liodactylus Rathbun, 1898
Crabe
Iliacantha subglobosa Stimpson, 1871
Longfinger purse crab (En)
Persephona mediterranea (Herbst, 1794)
Mottled purse crab (En)
Persephona punctata (Linnaeus, 1758)
Purse crab (En)
Menippe mercenaria (Say, 1818)
Crabe caillou noir
Menippe nodifrons Stimpson, 1859
Crabe caillou guinéen
Amphithrax aculeatus (Herbst, 1790)
Crabe-araignée chevelu
Amphithrax hemphilli (Rathbun, 1892)
Amphithrax pilosus (Rathbun, 1892)
crabe-araignée poilu
Amphithrax tuberculatus (Stimpson, 1860)
Non trouvé dans Sealife
Maguimithrax spinosissimus (Lamarck, 1818)
Crabe royal des Caraïbes
Mithraculus coryphe (Herbst, 1801)
Nodose clinging crab (En)
Mithraculus forceps A. Milne-Edwards, 1875 [in A. Milne-Edwards, 1873-1880]
Crabe-araignée rouge hérissé
Mithraculus sculptus (Lamarck, 1818)
Crabe-araignée vert émeraude
Mithrax hispidus (Herbst, 1790)
Coral clinging crab (En)
Mithrax pleuracanthus Stimpson, 1871
Shaggy clinging crab 'En)
Nemausa acuticornis (Stimpson, 1871)
Sharphorn clinging crab (En)
Nonala holderi (Stimpson, 1871)
Omalacantha bicornuta (Latreille, 1825)
Speck-claw decorator crab (En)
Pitho aculeata (Gibbes, 1850)
Massive urn crab (En)
Thoe puella Stimpson, 1860
Scarlet mime crab (En)
Leptuca pugilator (Bosc, 1802)
Crabe violoniste
Leptuca thayeri (Rathbun, 1900)
Crabe violoniste des mangroves
Minuca burgersi (Holthuis, 1967)
Crabe violoniste des salines
Minuca mordax (Smith, 1870)
Crabe violoniste
Minuca pugnax (Smith, 1870)
Crabe violoniste des marais
Minuca rapax (Smith, 1870)
Crabe violoniste des vasières
Ocypode quadrata (Fabricius, 1787)
Crabe fantôme atlantique
Ucides cordatus (Linnaeus, 1763)
Crabe mantou
Ozius verreauxii de Saussure, 1853
Crabe caillou perfore
Eucratopsis crassimanus (Dana, 1851)
Heavyhand rubble crab (En)
Eurypanopeus abbreviatus (Stimpson, 1860)
Lobate mud crab (En)
Eurypanopeus transversus (Stimpson, 1860)
Eurytium limosum (Say, 1818)
Broadback mud crab (En)
Panopeus americanus de Saussure, 1857
Narrowback mud crab (En)
AphiaID
Alph3
422000
422068
422183
422184
422185
241196
422187
422188
241200
107457
107462
107262
441856
421949
421957
421930
421932
158443
441258
422070
241128
1258708
1258715
1258717
1258716
987079
421987
421988
421990
158429
454040
421996
878751
878753
422015
442143
955239
1264329
955259
955267
955270
955271
158432
422170
440522
443940
422075
443964
422077
422084
CRA
CRA
KDG
CRA
CRA
CRA
CRA
GSQ
CRA
YGT
CRA
OAT
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
MXI
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
UCC
CRA
CRA
CRA
CRA
CRA
CRA
FB-SLB
2002
FAO
OBIS
GBIF
Pplt
1993
0
0
0
1998
0
0
0
1998
0
0
0
0
0
0
0
0
0
0
0
0
0
1
1889
1865
1929
1858
1
1858
1858
1
1878
1
0
1965
1988
0
1933
1969
0
1
0
1865
1878
1937
0
1
1933
1865
1927
1865
1865
1
1933
1
1927
1927
1937
1858
1937
1912
1918
1
1917
1858
1930
1937
0
1
1
1930
0
p6
p1
p1
p1
p1
p1
p1
p1
p1
p1
p2
p6
p6
p6
p6
p6
p6
p6
p1
p1
p1
p1
p6
p1
p6 ??
p6
p6
p1
p6
p6
p6
p1
p6
p6
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
2002
2008
2008
0
0
2005
2005
2005
2005
2012
2008
0
2006b
0
1993
0
0
0
0
0
0
0
0
0
.
0
0
2005
0
.
0
0
0
0
2003
2005
2008
2005
1978
0
0
0
0
0
0
0
0
0
0
0
0
0
0
p6
p1
p1
p1
p1
�194
famille
Crustacés (suite)
Crustacés - Crabes (suite)
Panopeidae (suite)
Parthenopidae
Percnidae
Pilumnidae
Pinnotheridae
Plagusiidae
Porcellanidae
Portunidae
Sesarmidae
Varunidae
Xanthidae
Nom scientifique
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES INVÉRTÉBRÉS (suite)
Panopeus herbstii H. Milne Edwards, 1834
Panopeus occidentalis de Saussure, 1857
Panopeus rugosus A. Milne-Edwards, 1880 [in A. Milne-Edwards, 1873-1880]
Heterocrypta lapidea Rathbun, 1901
Mesorhoea sexspinosa Stimpson, 1871
Spinolambrus fraterculus (Stimpson, 1871)
Spinolambrus pourtalesii (Stimpson, 1871)
Percnon gibbesi (H. Milne Edwards, 1853)
Actumnus setifer (De Haan, 1835 [in De Haan, 1833-1850]) *
Pilumnus dasypodus Kingsley, 1879
Pilumnus holosericus Rathbun, 1898
Pilumnus reticulatus Stimpson, 1860
Pilumnus spinosissimus Rathbun, 1898
Dissodactylus primitivus Bouvier, 1917
Parapinnixa hendersoni Rathbun, 1918
Plagusia depressa (Fabricius, 1775)
Megalobrachium poeyi (Guérin-Méneville, 1855)
Pachycheles pilosus (H. Milne Edwards, 1837)
Pachycheles serratus (Benedict, 1901)
Petrolisthes elongatus (H. Milne Edwards, 1837)
Petrolisthes politus (Gray, 1831)
Petrolisthes quadratus Benedict, 1901
Petrolisthes tonsorius Haig, 1960
Achelous ordwayi Stimpson, 1860
Achelous spinicarpus Stimpson, 1871
Achelous spinimanus (Latreille, 1819)
Arenaeus cribrarius (Lamarck, 1818)
Callinectes bocourti A. Milne-Edwards, 1879 [in A. Milne-Edwards, 1873-1880]
Callinectes danae Smith, 1869
Callinectes exasperatus (Gerstaecker, 1856)
Callinectes marginatus (A. Milne-Edwards, 1861)
Callinectes ornatus Ordway, 1863
Callinectes sapidus Rathbun, 1896
Cronius ruber (Lamarck, 1818)
Portunus sayi (Gibbes, 1850)
Aratus pisonii (H. Milne Edwards, 1837)
Armases angustipes (Dana, 1852)
Armases angustum (Smith, 1870)
Armases ricordi (H. Milne Edwards, 1853)
Armases roberti (H. Milne Edwards, 1853)
Cyclograpsus integer H. Milne Edwards, 1837
Actaea acantha (H. Milne Edwards, 1834)
Actaea bifrons Rathbun, 1898
Banareia palmeri (Rathbun, 1894)
Cataleptodius floridanus (Gibbes, 1850)
Microcassiope taboguillensis (Rathbun, 1907)
Micropanope sculptipes Stimpson, 1871
Paractaea sulcata (Stimpson, 1860)
Paraliomera longimana (A. Milne-Edwards, 1865)
Platyactaea setigera (H. Milne Edwards, 1834)
Ratha longimanus (H. Milne Edwards, 1834)
Oyster mud crab (En)
Furrowed mud crab (En)
Granulose mud crab (En)
Sixspine elbow crab (En)
Rough elbow crab (En)
Pourtales' long-armed crab (En)
Crabe plat des oursins
Short-haired crab (En)
shortspine hairy crab (En)
Roseate hairy crab (En)
Longspine hairy crab (En)
Crabe-pois des spatangues
Plagusie déprimée
Hairyclaw porcelain crab (En)
Pilose porcelain crab (En)
Porcelain crab (En)
New Zealand porcelain crab (En)
Redback porcelain crab (En)
Porcelain crab (En)
Porcelain crab (En)
Redhair swimming crab (En)
Longspine swimming crab (En)
Crabe tacheté
Crabe cyrique
Crabe chancre
Crabe lénée
Crabe liré
Crabe marbré
Crabe grise
Crabe bleu
Crabe rouge
Crabe des sargasses
Crabe des palétuviers
Humic marsh crab (En)
Globose shore crab (En)
Spinose rubble crab (En)
Areolate rubble crab (En)
Hoary rubble crab (En)
Spoonfinger rubble crab (En)
Sculptured mud crab (En)
Longarm coral crab (En)
Bristled rubble crab 'En)
Sirik
AphiaID
Alph3
FB-SLB
158436
422086
422087
442284
422025
442338
442342
107458
210170
422095
422099
442562
422106
422153
422158
107459
421864
421869
425864
396708
421877
421878
431835
451838
557889
456069
158046
394860
107378
422037
241106
158053
107379
241109
1061759
422190
444481
444482
422194
444487
209414
422122
422123
422125
241142
444299
422137
444054
422141
422142
881760
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
UIS
CRA
CRA
CRA
CRA
CRA
CRA
CRA
SWM
SWM
CRS
RSQ
KLB
CRZ
KLE
KLG
KLO
CRB
KNR
CRS
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
CRA
0
2005
FAO
2005
2005
2005
2005
2006b
0
2005
2005
2005
2006
.
0
.
2005
2005
2005
2002
2002
2002
2002
1973
2002
2002
2005
0
0
0
0
0
2005
2012
1978
1978
1978
1978
1978
1978
1978
OBIS
GBIF
Pplt
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1943
0
0
0
0
0
0
0
0
0
0
0
0
1
0
1
0
0
0
0
0
1
1933
1937
0
0
0
1930
1858
1937
1937
1937
1
1937
1937
1937
1859
1970
1
1865
0
1942
1860
1857
1860
1865
0
1
1
1
1928
1889
1912
1937
1927
1937
1927
1871
1937
p1
p1
p1
p1
p6
p6
p6
p1
p6
p1
p1
p1
p1
p4
p1
0
0
0
0
0
0
p1
p6
p6
p6
p6
p1
p6
p6
p6
p6
p6
p6
p1
p1
p1
p1?
p1
p1
p1
p1
p1
p1
p1
p6
1937
1865
1
1
p6
p6
�195
famille
Crustacés (suite)
Crustacés - Anomoures
Xanthidae (suite)
Albuneidae
Chirostylidae
Diogenidae
Hippidae
Munidopsidae
Paguridae
Pylochelidae
Mollusques
Céphalopodes décapodes
Ancistrocheiridae
Brachioteuthidae
Chiroteuthidae
Chtenopterygidae
Cranchiidae
Cycloteuthidae
Enoploteuthidae
Joubiniteuthidae
Loliginidae
Octopoteuthidae
Ommastrephidae
Onychoteuthidae
Onychoteuthidae (suite)
Pyroteuthidae
Sepiolidae
Nom scientifique
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES INVÉRTÉBRÉS (suite)
AphiaID
Alph3
CRA
NUQ
LOX
LOX
LOX
NUQ
NUQ
NUQ
NUQ
NUQ
NUQ
NUQ
NUQ
LOX
CZM
CZM
CZM
CZM
CZM
NKL
BQP
BQR
KTV
SQU
YXS
ZBL
SQU
ZEI
ICR
WMG
CYC
SQU
SQU
OJL
UHS
OKS
NID
SQM
OFJ
OKA
OFE
YHB
UHY
UWV
TID
YRM
HHP
MQI
Williamstimpsonia denticulatus (White, 1848)
Lepidopa richmondi Benedict, 1903
Gastroptychus spinifer (A. Milne Edwards, 1880)
Uroptychus janiceae Baba & Wicksten, 2017
Uroptychus nitidus (A. Milne Edwards, 1880)
Calcinus tibicen (Herbst, 1791)
Clibanarius antillensis Stimpson, 1859
Dardanus insignis (de Saussure, 1857)
Dardanus venosus (H. Milne Edwards, 1848)
Paguristes grayi Benedict, 1901
Paguristes puncticeps Benedict, 1901
Petrochirus diogenes (Linnaeus, 1758)
Hippa testudinaria (Herbst, 1791)
Munidopsis longimanus (A. Milne Edwards, 1880)
Nematopaguroides karukera Lemaitre, Felder & Poupin, 2017
Pagurus brevidactylus (Stimpson, 1859)
Pagurus provenzanoi Forest & de Saint Laurent, 1968
Xylopagurus rectus A. Milne-Edwards, 1880
Bathycheles cubensis (Ortiz & Gómez, 1986)
Denticulate rubble crab (En)
Mole crab (En)
Bernard-l'hermite à yeux rouges
Bernard-l'hermite
Bernard-l'hermite
Bernard l'hermite
742108
421882
392034
952999
148418
367457
367492
367585
367596
368232
368275
368346
246314
392555
1023071
366662
366753
366944
411825
Ancistrocheirus lesueurii (d'Orbigny [in Férussac & d'Orbigny], 1842)
Brachioteuthis picta Chun, 1910
Brachioteuthis riisei (Steenstrup, 1882)
Chiroteuthis veranii (Férussac, 1834)
Grimalditeuthis bonplandi (Vérany, 1839)
Chtenopteryx sicula (Vérany, 1851)
Bathothauma lyromma Chun, 1906
Cranchia scabra Leach, 1817
Egea inermis Joubin, 1933
Liocranchia reinhardti (Steenstrup, 1856)
Sandalops melancholicus Chun, 1906
Discoteuthis discus Young & Roper, 1969
Enoploteuthis anapsis Roper, 1964
Joubiniteuthis portieri (Joubin, 1916)
Doryteuthis (Amerigo) ocula (Cohen, 1976)
Sepioteuthis sepioidea (Blainville, 1823)
Octopoteuthis sicula Rüppell, 1844
Taningia danae Joubin, 1931
Illex coindetii (Vérany, 1839)
Ommastrephes bartramii (Lesueur, 1821)
Ornithoteuthis antillarum Adam, 1957
Sthenoteuthis pteropus (Steenstrup, 1855)
Onychoteuthis banksii (Leach, 1817)
Onykia carriboea Lesueur, 1821
Walvisteuthis virilis Nesis & Nikitina, 1986
Pterygioteuthis giardi H. Fischer, 1896
Pyroteuthis margaritifera (Rüppell, 1844)
Heteroteuthis (Heteroteuthis) dispar (Rüppell, 1844)
Semirossia equalis (Voss, 1950)
Encornet cachalot
Encornet bras courts orné
Encornet bras courts commun
Chirocalmar de Vérany
Chirocalmar de Grimaldi
Calmar pectiné sicilienne
Encornet-outre lyre
Encornet-outre rude
Encornet-outre désarmé
Encornet-outre de Reinhardt
Encornet-outre mélancolie
Discoloutène rond
Encornet etoile
Loutène de Joubin
Calmar à gros yeux
Calmar ris
Encornet-poulpe de Ruppell
Encornet poulpe dana
Encornet rouge
Encornet volant
Encornet oiseau
Encornet dos orange
Cornet crochu
Cornet crochu de Caraïbes
Encornet baleine
Encornet boubou
Encornet-bijoutier
Sépiole différente
Sépiole cracheuse
138747
341795
138852
139125
238742
181377
139422
181386
342293
341818
342386
342234
342295
879785
410352
342241
181379
140609
140621
181382
225573
140623
140649
140650
342418
141097
157031
877780
342232
Bernard-l'hermite à pattes orange
Bernard-l'hermite
Red brocade hermit crab (En)
Bernard-l'hermite à yeux étoilés
Bernard-l'hermite
Pagure à points blancs
Bernard-l'hermite géant des lambis
Sand crab (En)
Squat lobster (En)
FB-SLB
FAO
1970
0
1962
0
0
0
0
0
0
0
0
0
0
0
0
0
1922
0
0
1979
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1922
0
1969
1979
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
2006
0
0
0
1978
1978
1978
1978
1978
1978
GBIF
1937
1930
1988
1931
1877
1859
1
1
1929
1937
0
1863
1
1963
1
0
1970
0
1963
0
0
0
2010
2010
1984
2010
2010
2010
2010
2010
2010
2010
2010
2010
0
2010
0
1984
2010
2010
1998
1984
1984
1984
1984
2010
2010
1984
2010
2005
2005
OBIS
Pplt
p1
p10
p6
p10
p1
p1
p6
p6
p1
p3
p6
p1
p10
p1
p6
p9
p9
p9
p9
p9
p9
p9
p9
p9
p9
p9
p9
p9
p9
p6
p3
p10
p9
p7
p9
p9
p9
p9
p8
p9
p9
p9
p9
p6
�196
famille
Nom scientifique
Mollusques (suite)
Céphalopodes décapodes (suite)
Sepiolidae (suite)
Semirossia tenera (Verrill, 1880)
Spirulidae
Spirula spirula (Linnaeus, 1758)
Thysanoteuthidae
Thysanoteuthis rhombus Troschel, 1857
Céphalopodes octopodes
Alloposidae
Haliphron atlanticus Steenstrup, 1861
Argonautidae
Argonauta argo Linnaeus, 1758
Argonautidae (suite)
Argonauta hians Lightfoot, 1786
Bolitaenidae
Bolitaena pygmaea (A. E. Verrill, 1884)
Amphitretidae
Japetella diaphana Hoyle, 1885
Octopodidae
Callistoctopus macropus (Risso, 1826)
Macrotritopus defilippi (Vérany, 1851)
Octopus briareus Robson, 1929
Octopus hummelincki Adam, 1936
Octopus occidentalis Steenstrup in Hoyle, 1886
Octopus vulgaris Cuvier, 1797
Pteroctopus schmidti (Joubin, 1933)
Scaeurgus unicirrhus (Delle Chiaje [in Férussac & d'Orbigny], 1841)
Tetracheledone spinicirrhus Voss, 1955
Opisthoteuthidae
Opisthoteuthis agassizii Verrill, 1883
Tremoctopodidae
Tremoctopus violaceus delle Chiaje, 1830
Vitreledonellidae
Vitreledonella richardi Joubin, 1918
Mollusques bivalves
Anatinellidae
Anatina anatina (Spengler, 1802)
Anomiidae
Anomia simplex d'Orbigny, 1853
Arcidae
Anadara brasiliana (Lamarck, 1819)
Anadara chemnitzii (Philippi, 1851)
Anadara notabilis (Röding, 1798)
Anadara secticostata (Reeve, 1844)
Arca imbricata Bruguière, 1789
Arca reticulata Gmelin, 1791 *
Arca zebra Swainson, 1833
Barbatia amygdalumtostum (Röding, 1798) *
Barbatia barbata (Linnaeus, 1758)
Barbatia candida (Helbling, 1779)
Barbatia domingensis (Lamarck, 1819)
Fugleria tenera (C. B. Adams, 1845)
Lunarca ovalis (Bruguière, 1789)
Tegillarca granosa (Linnaeus, 1758) *
Basterotiidae
Basterotia quadrata (Hinds, 1843)
Cardiidae
Acrosterigma magnum (Linnaeus, 1758)
Americardia media (Linnaeus, 1758)
Dallocardia muricata (Linnaeus, 1758)
Dinocardium robustum (Lightfoot, 1786)
Fulvia laevigata (Linnaeus, 1758)
Laevicardium serratum (Linnaeus, 1758)
Laevicardium sybariticum (Dall, 1886)
Papyridea aspersa (G. B. Sowerby I, 1833)
Papyridea semisulcata (Gray, 1825)
Trachycardium isocardia (Linnaeus, 1758)
Trigoniocardia antillarum (d'Orbigny, 1853)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES INVÉRTÉBRÉS (suite)
AphiaID
Alph3
FB-SLB
Sépiole calamarette
Spirule
Chipiloua commun
157036
141548
141680
IRE
RKS
YUR
Poulpe gelée gèant
Argonaute papier
Argonaute mineur
Poulpe pélagique pygmée
Poulpe pélagique translucide
Poulpe tacheté
Poulpe à longs bras
Poulpe ris
Poulpe bourdon
Pieuvre
Poulpe commun, pieuvre
Poulpe dana
Poulpe licorne
Poulpe cornu
Discopoulpe de Agassiz
Poulpe manteau violet
Poulpe vitreux
341781
138803
215276
410340
138849
534558
534126
341954
341972
342007
140605
420654
140607
342400
140652
141694
141962
420849
156737
504322
504337
420712
504356
215252
215250
420713
504394
138793
504386
582484
420720
420721
504471
420830
381240
420847
381280
156843
605734
381803
381769
381290
381297
519472
381545
Smooth duckclam (En)
Common jingle (En)
Arche incongrue
Triangular ark (En)
Arche auriculée
Arche crochue
Arche zèbre
Arche bicolore
Arche barbue
White-beard ark (En)
White miniature ark (En)
Arche ovale
Arche granuleuse
Square sportella (En)
Bucarde fraisine
Bucarde jaune
Bucarde géante de l'Atlantique
Frilled papercockle (En)
West Indian prickly cockle (En)
Chatwouj, chaltrou
OBIS
GBIF
Pplt
2005
2005
1984
0
0
0
0
1800
0
p10
p9
p9
CEP
GGQ
GJH
CEP
CEP
OCN
OQD
OTQ
OQH
OCT
OCC
DTS
UGU
TLQ
UZS
TUV
CEP
2014
1984
2014
2014
2014
1984
1984
1984
1984
0
1984
1984
1984
2014
2014
2014
2014
0
0
0
0
1922
0
0
1983
0
1937
1930
0
0
0
0
0
0
0
0
0
0
1922
1929
0
1
0
1937
1930
0
0
0
0
0
0
p9
p8
p9
p9
p9
p3
p1
p3
p3
p6
p1
p10
p6
p9
p10
p8
p8
MWQ
NLX
FCR
FCE
NDL
BLS
RKM
ARK
RQZ
BQU
BQB
BJX
ARK
ARK
ARK
ARK
CLX
COZ
MDQ
TIX
DKR
FVX
KZX
KZX
COZ
KFX
TIQ
KFX
0
0
0
0
0
0
0
0
2002
0
0
0
0
0
2001
0
2009
0
0
2002
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1
1851
1
1986
1975
1
2019
1927
1925
1
1
1
1925
1
1986
1
1
1
1975
1975
1
1975
1953
1992
1992
1
1
1986
0
0
FAO
1978
2002
1978
2002
2002
1978
2002
2002
2002
2002
1978
0
2002
0
0
0
0
0
0
p4
p4
p3
p3
p3
p6
p6
p6
p1
p1
p1
p10
p6
p6
p3
p1
p6
p6
p1
p6
�197
famille
Mollusques (suite)
Mollusques bivalves (suite)
Carditidae
Chamidae
Corbulidae
Crassatellidae
Cuspidariidae
Donacidae
Dreissenidae
Gastrochaenidae
Glycymerididae
Hiatellidae
Isognomonidae
Limidae
Lucinidae
Mactridae
Malleidae
Mytilidae
Nom scientifique
Carditamera gracilis (Shuttleworth, 1856)
Arcinella arcinella (Linnaeus, 1767)
Chama congregata Conrad, 1833
Chama macerophylla Gmelin, 1791
Chama sarda Reeve, 1847
Pseudochama cristella (Lamarck, 1819)
Caryocorbula chittyana (C. B. Adams, 1852)
Caryocorbula contracta (Say, 1822)
Caryocorbula swiftiana (C. B. Adams, 1852)
Juliacorbula aequivalvis (Philippi, 1836)
Varicorbula philippii (E. A. Smith, 1885)
Crassinella lunulata (Conrad, 1834)
Crassinella martinicensis (d'Orbigny, 1853)
Cardiomya cleryana (d'Orbigny, 1842) ~
Donax assimilis Hanley, 1845
Donax denticulatus Linnaeus, 1758
Donax purpurascens (Gmelin, 1791)
Donax striatus Linnaeus, 1767
Donax variabilis Say, 1822
Iphigenia brasiliensis (Lamarck, 1818)
Mytilopsis leucophaeata (Conrad, 1831)
Mytilopsis sallei (Récluz, 1849)
Gastrochaena ovata G. B. Sowerby I, 1834
Glycymeris undata (Linnaeus, 1758)
Tucetona pectinata (Gmelin, 1791)
Hiatella arctica (Linnaeus, 1767)
Isognomon alatus (Gmelin, 1791)
Isognomon bicolor (C. B. Adams, 1845)
Isognomon radiatus (Anton, 1838)
Ctenoides mitis (Lamarck, 1807)
Ctenoides scaber (Born, 1778)
Lima lima (Linnaeus, 1758)
Anodontia alba Link, 1807
Callucina keenae (Chavan, 1971)
Clathrolucina costata (d'Orbigny, 1845)
Codakia orbicularis (Linnaeus, 1758)
Ctena orbiculata (Montagu, 1808)
Divalinga quadrisulcata (d'Orbigny, 1845)
Divaricella dentata (Wood, 1815)
Lucina adansoni d'Orbigny, 1840
Lucina pensylvanica (Linnaeus, 1758)
Lucinisca muricata (Spengler, 1798)
Parvilucina pectinella (C. B. Adams, 1852)
Phacoides pectinatus (Gmelin, 1791)
Pleurolucina leucocyma (Dall, 1886)
Mactrellona alata (Spengler, 1802)
Mactrotoma fragilis (Gmelin, 1791)
Malleus candeanus (d'Orbigny, 1853)
Brachidontes exustus (Linnaeus, 1758)
Brachidontes modiolus (Linnaeus, 1767)
Gregariella coralliophaga (Gmelin, 1791)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES INVÉRTÉBRÉS (suite)
West Indian cardita
Corrugate jewelbox (En)
Leafy jewelbox (En)
Cherry jewelbox (En)
Radial-ridged corbula (En)
Lunate crassinella
Martinique crassinella (En)
Flion des Caraïbes
Purplish semele (En)
Flion ridée
Variable coquina (En)
Donace géanté
Dark false mussel (En)
Santo Domingo false mussel (En)
Ovate gastrochaenid (En)
Wavy bittersweet (En)
Arctic hiatella (En)
Huître plate
Bicolor purse-oyster (En)
Radial purse-oyster (En)
Lime rêche
Lime écailleuse
Buttercup lucine (En)
Costate lucine (En)
Lucine tigrée américaine
Cross-hatched lucine (En)
Dentate lucine (En)
Pennsylvania lucine (En)
Spinose lucine (En)
Little-comb lucine (En)
Mactre ailée
Fragile surfclam (En)
Huître-marteau des Caraïbes
Scorched mussel (En)
Yellow mussel (En)
Coral-eating mussel 'En)
AphiaID
Alph3
FB-SLB
504860
504764
420814
397039
420819
504796
420976
420977
820357
420980
420983
420843
420844
408446
494694
420902
494721
494732
156776
420905
156887
397147
420984
420730
420731
140103
420736
420737
397087
420744
420747
140233
493932
420785
747384
420787
420788
464137
464142
464187
420791
420792
464249
420800
420801
505717
420850
420738
397026
420696
420699
COZ
CLX
CLX
CLX
CLX
CLX
CLX
CLX
CLX
CLX
CLX
CLX
CLX
CLX
DON
DXD
DON
DNT
DON
IFB
YIH
YSQ
CLX
GCD
ARK
ZHA
IMA
IMX
IMX
CLX
KTX
IML
EWX
EWX
EWX
KKO
KLX
EWX
EWX
EWX
EWQ
EWX
EWX
EWX
EWX
WMC
MWQ
CLX
MSX
MSX
MSX
0
2009
0
0
0
0
0
0
0
0
0
0
0
0
2002
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
2002
0
0
0
0
0
0
0
0
2002
0
0
0
0
0
FAO
0
2002
0
2002
2002
2002
OBIS
GBIF
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1
0
1975
1974
1975
1
1
1986
1986
1
1
1
1
1986
1
1950
1
1
1969
1
1
1
1937
1
1
1
1926
1
1927
1
1975
1
1944
1
1
1944
1927
1992
1992
1
1971
1
1986
1
1
1
1
0
1929
1
1
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
Pplt
p6
p3
p6
p1
p6
p1
p1
p6
p6
p6
p3
p6
p1
p1
p1
p1
p1
p1
p1
p3
p1
p6
p4
p1
p1
p6
p6
p6
p3
p3
p4
p4
p6
p6
p6
p1
p6
p1
p1
p1
p6
p6
p3
p6
p3
�198
famille
Mollusques (suite)
Mollusques bivalves (suite)
Mytilidae (suite)
Noetiidae
Nuculanidae
Ostreidae
Pectinidae
Pholadidae
Pinnidae
Propeamussiidae
Psammobiidae
Pteriidae
Semelidae
Solecurtidae
Solenidae
Spondylidae
Tellinidae
Nom scientifique
Lioberus castanea (Say, 1822)
Modiolus americanus (Leach, 1815)
Musculus lateralis (Say, 1822)
Arcopsis adamsi (Dall, 1886)
Saccella acuta (Conrad, 1831)
Crassostrea rhizophorae (Guilding, 1828)
Crassostrea tulipa (Lamarck, 1819) *
Crassostrea virginica (Gmelin, 1791)
Dendostrea frons (Linnaeus, 1758)
Ostrea equestris Say, 1834
Ostrea stentina Payraudeau, 1826
Aequipecten exasperatus (Sowerby II, 1842)
Argopecten gibbus (Linnaeus, 1758)
Argopecten nucleus (Born, 1778)
Caribachlamys ornata (Lamarck, 1819)
Euvola laurenti (Gmelin, 1791)
Euvola ziczac (Linnaeus, 1758)
Leptopecten bavayi (Dautzenberg, 1900)
Nodipecten nodosus (Linnaeus, 1758)
Cyrtopleura costata (Linnaeus, 1758)
Martesia cuneiformis (Say, 1822)
Martesia striata (Say, 1822)
Atrina rigida (Lightfoot, 1786)
Atrina seminuda (Lamarck, 1819)
Atrina serrata (G. B. Sowerby I, 1825)
Pinna carnea Gmelin, 1791
Propeamussium dalli (E. A. Smith, 1885)
Asaphis deflorata (Linnaeus, 1758)
Heterodonax bimaculatus (Linnaeus, 1758)
Psammotella cruenta (Lightfoot, 1786)
Sanguinolaria sanguinolenta (Gmelin, 1791)
Pinctada imbricata Röding, 1798
Pteria colymbus (Röding, 1798)
Pteria penguin (Röding, 1798) *
Abra aequalis (Say, 1822)
Cumingia lamellosa G. B. Sowerby I, 1833
Semele proficua (Pulteney, 1799)
Tagelus divisus (Spengler, 1794)
Tagelus plebeius (Lightfoot, 1786)
Solena obliqua (Spengler, 1794)
Spondylus americanus Hermann, 1781
Spondylus tenuis Schreibers, 1793
Ameritella janeiroensis (Jaeckel, 1927)
Ameritella sybaritica (Dall, 1881)
Ameritella versicolor (De Kay, 1843)
Arcopagia fausta (Pulteney, 1799)
Eurytellina angulosa (Gmelin, 1791)
Eurytellina lineata (W. Turton, 1819)
Eurytellina nitens (C. B. Adams, 1845)
Eurytellina punicea (Born, 1778)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES INVÉRTÉBRÉS (suite)
Modiole tulipe
Lateral mussel (En)
Cancellate ark (En)
Pointed nutclam (En)
Huître creuse des Caraïbes
Huître africaine de mangroves
Huître creuse américaine
Frond oyster (En)
Crested oyster (En)
Huître naine
Mossy scallop (En)
Peigne calicot
Nucleus scallop (En)
Ornate scallop (En)
Peigne de Laurent
Peigne zigzag
Bavay's scallop (En)
Coquille
Aîle d’ange
Wedge piddock (En)
Martésie striée
Jambonneau raide
Jambonneau demi-lisse
Jambonneau dents de scie
Jambonneau ambre
Sanguinolaire ridée
Faux haricot
Atlantic sanguin (En)
Huître perlière de l’Atlantique
Atlantic wing-oyster (En)
Huître perlière ailée
Atlantic abra (En)
Contracted semele (En)
Atlantic semele (En)
Purplish tagelus (En)
Tagal corpulent
Couteau antillais
Huître épineuse de l'Atlantique
Huître épineuse
Sybaritic tellin (En)
Many-colored tellin (En)
Telline fasute
AphiaID
Alph3
FB-SLB
1261741
420705
420707
420724
866898
420777
506706
140657
420779
156924
489077
420758
394271
394268
393707
746587
394073
394314
225252
156840
397138
216465
420739
420740
420741
420742
391457
213509
420907
420908
420909
207901
420735
208448
293683
507257
420915
156999
157001
512089
420772
506972
878511
878517
849119
420864
420868
420869
420870
420871
MSX
DJI
MSX
CLX
CLX
OYM
OYC
OYA
DDO
OYX
OYX
SCX
SCC
SCX
SCX
SCX
SCX
SCX
YRD
YPK
FJX
MJX
TQY
TQY
TQY
IDX
CLX
FWX
CLX
UNU
UJX
IKI
TXX
TXX
CLX
CLX
XML
GHX
GHX
SOI
DYM
DZX
TWL
TWL
TWL
TWL
TWL
TWL
TWL
TWL
0
2002
0
0
0
2002
2018b
0
0
0
0
2002
0
0
0
2002
0
2006
2002
0
0
2002
2002
0
2006b
0
2002
0
0
2002
2006b
0
0
0
0
0
2002
0
0
0
0
0
0
0
0
0
0
FAO
2002
2002
0
2002
2002
2002
0
2002
2002
2002
2002
2002
2002
2002
OBIS
GBIF
Pplt
0
0
0
0
0
0
0
0
0
0
0
1970
0
1975
0
0
0
1970
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1
0
0
0
0
0
0
0
0
0
0
1
1
1
1927
1
0
0
1
1974
1
1
1
1953
0
1
1
1
1
1
1
1
1
1
1
1
1
1963
1948
1
1976
2000
1
1974
1974
1986
1
1927
1986
1
1929
1974
0
1
1986
1
1944
1
1
1
1986
p1
p3
p6
p6
p6
p1
p6
p6
p6
p8
p4
p4
p6
p1
p4
p1
p6
p1
p1
p1
p4
p4
p1
p4
p10
p1
p1
p1
p1
p1
p6
p1
p6
p1
p6
p4
p1
p3
p3
p6
p4
p1
p1
p6
p1
�199
famille
Mollusques (suite)
Mollusques bivalves (suite)
Tellinidae (suite)
Teredinidae
Thyasiridae
Trapezidae
Ungulinidae
Veneridae
Nom scientifique
Heteromacoma irus (Hanley, 1845) *
Laciolina laevigata (Linnaeus, 1758)
Leporimetis ephippium (Spengler, 1798)
Macoma cerina C. B. Adams, 1845
Macoploma tenta (Say, 1838)
Merisca cristallina (Spengler, 1798)
Oudardia sandix (Boss, 1968)
Psammotreta brevifrons (Say, 1834)
Serratina aequistriata (Say, 1824)
Serratina martinicensis (d'Orbigny, 1853)
Strigilla carnaria (Linnaeus, 1758)
Strigilla mirabilis (Philippi, 1841)
Strigilla pisiformis (Linnaeus, 1758)
Strigilla producta Tryon, 1870
Strigilla pseudocarnaria Boss, 1969
Tampaella mera (Say, 1838)
Tellina radiata Linnaeus, 1758
Tellinella listeri (Röding, 1798)
Bankia fimbriatula Moll & Roch, 1931
Bankia gouldi (Bartsch, 1908)
Lyrodus massa (Lamy, 1923)
Lyrodus pedicellatus (Quatrefages, 1849)
Nototeredo knoxi (Bartsch, 1917)
Teredo clappi Bartsch, 1923
Teredo fulleri Clapp, 1924
Teredo furcifera Martens, 1894
Teredo portoricensis Clapp, 1924
Teredo somersi Clapp, 1924
Thyasira granulosa (Monterosato, 1874)
Coralliophaga coralliophaga (Gmelin, 1791)
Diplodonta notata Dall & Simpson, 1901
Diplodonta punctata (Say, 1822)
Phlyctiderma semiasperum (Philippi, 1836)
Anomalocardia cuneimeris (Conrad, 1846)
Anomalocardia flexuosa (Linnaeus, 1767)
Anomalocardia puella (Pfeiffer in Philippi, 1846)
Callpita eucymata (Dall, 1890)
Chione cancellata (Linnaeus, 1767)
Chioneryx pygmaea (Lamarck, 1818)
Choristodon robustus (G. B. Sowerby I, 1834)
Dosinia concentrica (Born, 1778)
Globivenus rigida (Dillwyn, 1817)
Globivenus rugatina (Heilprin, 1887)
Gouldia cerina (C. B. Adams, 1845)
Hysteroconcha dione (Linnaeus, 1758)
Hysteroconcha lupanaria (Lesson, 1831)
Lamelliconcha circinata (Born, 1778)
Leukoma granulata (Gmelin, 1791)
Lirophora paphia (Linnaeus, 1767)
Megapitaria maculata (Linnaeus, 1758)
Parastarte triquetra (Conrad, 1846)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES INVÉRTÉBRÉS (suite)
Telline lisse
Telline lacuneuse
Waxy macoma (En)
Elongate macoma (En)
Crystal tellin (En)
Short macoma (En)
Striate tellin (En)
Martinique tellin (En)
White strigilla (En)
Pea strigilla (En)
Pure tellin (En)
Telline coucher de soleil
Telline mouchetée
Fimbriate shipworm (En)
Cupped shipworm (En)
Taret siamois
Foliaceous shipworm (En)
Yellow-margin shipworm (En)
Deep-cleft shipworm (En)
Puerto Rico shipworm (En)
Granulose cleftclam (En)
Coral clam (En)
Marked diplodon (En)
Atlantic diplodon (En)
Pointed clam (En)
Pointed venus (En)
Glory-of-the-seas venus (En)
Vénus quadrillée
Pygmy-venus (En)
Atlantic petricolid (En)
West Indian dosinia (En)
Rigid venus (En)
Queen venus (En)
Waxy gouldclam (En)
Beaded venus (En)
Vénus calicot
Brown gemclam (En)
AphiaID
Alph3
FB-SLB
FAO
714923
420872
724897
420877
879984
420886
878537
606748
877243
877258
420893
420895
420896
533459
141583
878344
420900
420901
141599
156749
397095
141600
420994
397192
527827
397193
527831
420995
141664
208484
420806
420808
420810
507441
215265
507442
507497
397040
420961
420970
507553
420937
420938
420939
507709
507708
545943
507743
420943
420944
420946
TWL
TWL
TWL
OVX
TWL
TWL
TWL
TWL
TWL
TWL
TWL
TWL
TWL
CLX
CLX
TWL
TWL
TWL
CLX
CLX
CLX
YRK
CLX
CLX
CLX
CLX
CLX
CLX
CLX
CLX
CLX
EWX
EWX
VEX
NKB
VEX
CLV
KNN
VEX
CLV
DSZ
VEX
CLV
CLV
IUX
IUX
VEX
FDX
VEX
VEX
CLV
0
0
0
2002
0
0
0
0
0
0
2009
0
0
0
2009
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
2002
0
0
0
0
0
0
0
0
0
0
2002
0
2002
2002
OBIS
GBIF
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1
0
1
1
1
1
1
1
1
1986
1986
1
1986
1
1986
1
1980
1927
1922
1922
1922
1922
1922
1922
1922
1922
1922
1922
0
1
1986
1
1
1
1953
1
1
1986
1
1
1992
1
1
1
1
1992
1986
1
1975
1
1
Pplt
p1
p1
p1
p3
p1
p1
p1
p1
p1
p1
p1
p6
p6
p1
p1
p4
p1
p3
p1
p6
p4
p1
p1
p6
p4
p4
p3
p1
p4
p6
p4
p1
p1
p1
p6
p4
p1
�200
famille
Mollusques (suite)
Mollusques bivalves (suite)
Veneridae (suite)
Verticordiidae
Mollusques gastéropodes
Acteonidae
Anabathridae
Ancillariidae
Aplustridae
Aporrhaidae
Architectonicidae
Areneidae
Assimineidae
Batillariidae
Bellolividae
Borsoniidae
Buccinidae
Bullidae
Bursidae
Caecidae
Calliostomatidae
Calyptraeidae
Cancellariidae
Capulidae
Cassidae
Cavoliniidae
Cerithiidae
Nom scientifique
Periglypta listeri (J.E. Gray, 1838)
Petricola lapicida (Gmelin, 1791)
Pitar albidus (Gmelin, 1791)
Pitar fulminatus (Menke, 1828)
Tivela fulminata (Bory de Saint-Vincent, 1827)
Tivela mactroides (Born, 1778)
Haliris fischeriana (Dall, 1881)
Acteon exiguus Mörch, 1875
Amphithalamus vallei Aguayo & Jaume, 1947
Ancilla lineolata (A. Adams, 1853)
Micromelo undatus (Bruguière, 1792)
Aporrhais pespelecani (Linnaeus, 1758) *
Heliacus bisulcatus (d'Orbigny, 1842)
Heliacus cylindricus (Gmelin, 1791)
Heliacus infundibuliformis (Gmelin, 1791)
Arene cruentata (Megerle von Mühlfeld, 1824)
Arene tricarinata (Stearns, 1872)
Arene venustula Aguayo & Rehder, 1936
Assiminea succinea (Pfeiffer, 1840)
Lampanella minima (Gmelin, 1791)
Jaspidella jaspidea (Gmelin, 1791)
Bathytoma viabrunnea (Dall, 1889)
Manaria fusiformis (Clench & Aguayo, 1941)
Bulla occidentalis A. Adams, 1850
Bulla striata Bruguière, 1792
Bursa cubaniana (d'Orbigny, 1841)
Caecum floridanum Stimpson, 1851
Caecum regulare Carpenter, 1858
Caecum textile de Folin, 1867
Caecum tortile Dall, 1892
Meioceras cornucopiae Carpenter, 1859
Calliostoma aurora Dall, 1888
Calliostoma jujubinum (Gmelin, 1791)
Crepidula plana Say, 1822
Tritonoharpa lanceolata (Menke, 1828)
Ariadnaria borealis (Broderip & G. B. Sowerby I, 1829) *
Casmaria kalosmodix (Melvill, 1883) **
Cassis flammea (Linnaeus, 1758)
Cassis madagascariensis Lamarck, 1822
Cassis tuberosa (Linnaeus, 1758)
Cypraecassis testiculus (Linnaeus, 1758)
Galeodea echinophora (Linnaeus, 1758)
Oocorys verrillii (Dall, 1889)
Semicassis granulata (Born, 1778)
Diacavolinia longirostris (Blainville, 1821)
Diacria trispinosa (Blainville, 1821)
Bittiolum varium (Pfeiffer, 1840)
Cerithium atratum (Born, 1778)
Cerithium eburneum Bruguière, 1792
Cerithium guinaicum Philippi, 1849
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES INVÉRTÉBRÉS (suite)
Venus princesse
Boring petricola (En)
Praire éclair
Tivèle trigone
Del Valle's tiny shell (En)
Miniature melo (En)
Pied de pélican
Beaded sundial (En)
Channeled sundial (En)
Star cyclostreme (En)
Gem cyclostreme (En)
Graceful cyclostreme (En)
Atlantic assiminea (En)
West Indian false cerith (En)
Jasper dwarf olive (En)
Striate bubble (En)
Common Atlantic bubble (En)
Granulate frog shell (En)
Florida caecum (En)
Gastropode
Textile caecum (En)
Twisted caecum (En)
Minute sea snail (En)
Mottled topsnail (En)
Crépidule plate
Arrow dwarf triton (En)
Boreal hairysnail (En)
Casque flamme
Casque impérial
Casque royal
Reticulate cowrie-helmet (En)
Casque échinophore
Casque cannelé
Shelled pteropod (En)
Three-spine cavoline (En)
Grass cerith (En)
Dark cerith (En)
Ivory cerith (En)
Guinea cerith (En)
AphiaID
Alph3
FB-SLB
420947
216533
420948
420952
507947
420964
405225
EGI
PIX
IUX
ITI
TVW
TVW
CLX
0
0
0
0
532278
419574
208355
140121
138760
224351
224358
214971
419471
419474
419476
160168
446438
420102
420246
491092
420521
138940
477024
419588
419593
419598
532252
419600
532283
419419
160230
420198
714762
731712
419777
419778
224977
224277
139023
533236
419784
405962
139045
160174
224572
419521
224773
GAS
GAS
GAS
GAS
OHQ
GAS
TSH
TSH
GSH
GAS
GAS
GAS
MUE
GAS
GAS
GAS
GAS
GAS
VAX
GAS
GAS
GAS
GAS
GAS
GAS
TSH
KWX
GAS
GAS
KSX
KSF
KSD
KST
KSX
XIX
XIX
FMG
GAS
GAS
GAS
GAS
GAS
GAS
2002
0
FAO
2002
0
0
GBIF
Pplt
0
0
0
0
0
0
0
1
1
1992
1992
1
1986
0
p6
p3
p6
p4
p1
p1
p6
0
0
0
0
0
0
0
0
0
0
0
0
0
1988
1988
0
1976
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
2002
2002
2002
0
0
0
0
0
0
0
0
0
0
OBIS
2002
2002
2002
1976
0
1976
1989
0
0
1976
0
0
0
0
1976
0
1
1
1
1
1
1927
1927
1
1
1
1
1
1
1
1988
1988
1975
1
1
1
1
2003
1
1
1
1
1
1
1937
1
1927
1
1929
1927
1
1978
1976
1937
1937
1
1934
1976
1
p4
p1
p6
p1
p6
p3
p3
p3
p1
p1
p4
p6
p10
p4
p4
p6
p3
p1
p4
p6
p3
p10
p4
p4
p6
p6
p4
p4
p4
p4
p6
p6
p8
p10
p4
p4
p4
p4
�201
famille
Nom scientifique
Mollusques (suite)
Mollusques gastéropodes (suite)
Cerithiidae (suite)
Cerithium litteratum (Born, 1778)
Cerithium lutosum Menke, 1828
Cerithium muscarum Say, 1832
Cerithium vulgatum Bruguière, 1792 *
Rhinoclavis fasciata (Bruguière, 1792) *
Cerithiopsidae
Seila adamsii (H. C. Lea, 1845)
Charoniidae
Charonia tritonis (Linnaeus, 1758) *
Charonia variegata (Lamarck, 1816)
Clionidae
Clione limacina (Phipps, 1774) *
Cochliopidae
Pyrgophorus coronatus (L. Pfeiffer, 1840)
Colubrariidae
Colubraria obscura (Reeve, 1844) *
Columbellidae
Aesopus obesus (Hinds, 1844)
Anachis catenata (G. B. Sowerby, 1844)
Columbellidae (suite)
Astyris lunata (Say, 1826)
Columbella mercatoria (Linnaeus, 1758)
Conella ovuloides (C. B. Adams, 1850)
Costoanachis sparsa (Reeve, 1859)
Falsuszafrona pulchella (Blainville, 1829)
Mazatlania cosentini (Philippi, 1836)
Mitrella nycteis (Duclos, 1846)
Mitrella ocellata (Gmelin, 1791)
Nassarina glypta (Bush, 1885)
Nitidella nitida (Lamarck, 1822)
Parvanachis obesa (C. B. Adams, 1845)
Rhombinella laevigata (Linnaeus, 1758)
Steironepion moniliferum (G. B. Sowerby I, 1844)
Suturoglypta pretrii (Duclos, 1846)
Conidae
Conasprella centurio (Born, 1778)
Conasprella delessertii (Récluz, 1843)
Conasprella jaspidea (Gmelin, 1791)
Conasprella mindana (Hwass in Bruguière, 1792)
Conasprella pealii (Green, 1830)
Conasprella puncticulata (Hwass in Bruguière, 1792)
Conasprella verrucosa (Hwass in Bruguière, 1792)
Conus abbreviatus Reeve, 1843 *
Conus byssinus (Röding, 1798)
Conus cardinalis Hwass in Bruguière, 1792
Conus cedonulli Linnaeus, 1767
Conus daucus Hwass in Bruguière, 1792
Conus dominicanus Hwass in Bruguière, 1792
Conus geographus Linnaeus, 1758 *
Conus granulatus Linnaeus, 1758
Conus hieroglyphus Duclos, 1833
Conus inscriptus Reeve, 1843 *
Conus magellanicus Hwass in Bruguière, 1792
Conus monachus Linnaeus, 1758
Conus mus Hwass in Bruguière, 1792
Conus patae Abbott, 1971
Conus pulcher [Lightfoot], 1786 *
Conus regius Gmelin, 1791
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES INVÉRTÉBRÉS (suite)
Stocky cerith En)
Dwarf Atlantic cerith (En)
Fly-specked cerith (En)
Mediterranean cerithe (En)
Cérithe fascié
Adams miniature cerith (En)
Triton émaillé
Triton de l'Atlantique
Common clione (En)
Obscure dwarf triton (En)
Chain dove-shell (En)
Mitrelle lunée
West Indian dovesnail (En)
Dove snails (En)
Sparse dovesnail (En)
Beautiful dovesnail (En)
False auger (En)
White-spot dovesnail (En)
Engraved dovesnail (En)
Glossy dove-shell (En)
Fat dovesnail (En)
Smooth dovesnail (En)
Dove snails (En)
Cone
Sozon's cone (En)
Jasper cone (En)
Bermuda cone (En)
Abbreviated cone (En)
Cône cardinal
Carrot cone (En)
Antilles cone (En)
Geographer cone (En)
Cone hiéroglyphe
Engraved cone (En)
Cône souris
Sunrise cone (En)
Butterfly cone (En)
Cône royale
AphiaID
Alph3
FB-SLB
216687
419522
419523
139066
215117
160051
141102
181006
533632
397179
225043
409951
511378
160102
208599
419991
419998
420017
511710
878481
139202
420004
420006
160440
420008
420011
420014
835892
835976
836687
836701
1350018
836771
1349984
426286
430458
426444
430327
420208
430330
215499
420211
428151
215573
428197
215542
420216
420217
224308
420220
GAS
GAS
GAS
KHV
RVF
GAS
KRN
KVX
GAS
GAS
GAS
GAS
GAS
BEX
GAS
BEX
BEX
BEX
BEX
GAS
BEX
GAS
BEX
BEX
BEX
GAS
GAS
XUX
XUX
XUX
XUX
XUX
XUX
XUX
XUX
XUX
XUX
XUX
XUX
XUX
XUX
XUX
XUX
XUX
XUX
XUX
KUM
XUX
XUX
KUJ
2026b
0
0
0
0
0
0
2002
0
0
0
2009
0
0
0
0
0
0
0
0
0
0
0
2009
0
0
2006b
0
0
0
0
0
0
0
0
0
0
2009
0
0
.
0
0
0
0
FAO
2002
OBIS
GBIF
Pplt
1976
0
0
0
0
0
0
1989
0
0
0
0
1917
1927
1
1
1
1
1
1858
1937
1933
1
0
1
1
1976
1
1
1
1
1
1
1
1
1
1976
1
1
1961
0
1953
1974
0
1
1918
1
1
1
1
1900
1
1
1
1
1
1
1
1800
1
1
1
p4
p4
p1
p1
p3
p4
0
1976
0
0
0
0
0
0
0
0
0
1976
0
0
0
0
1976
0
0
0
0
0
0
0
1976
0
0
0
0
0
0
1976
0
0
1976
p3
p7
p1
p1
p6
p3
p3
p6
p1
p1
p1
p6
p4
p6
p1
p6
p1
p6
p6
p1
p6
p6
p1
p3
p6
p3
p6
p3
p3
p3
p6
p1
p3
p1
p3
�202
famille
Nom scientifique
Mollusques (suite)
Mollusques gastéropodes (suite)
Conidae (suite)
Conus villepinii P. Fischer & Bernardi, 1857
Costellariidae
Atlantilux exigua (C. B. Adams, 1845)
Atlantilux puella (Reeve, 1845)
Mitromica williamsae Rosenberg & R. Salisbury, 2003
Vexillum albocinctum (C. B. Adams, 1845)
Vexillum consanguineum (Reeve, 1845)
Vexillum cubanum Aguayo & Rehder, 1936
Vexillum interruptum (Anton, 1838) *
Cylichnidae
Acteocina canaliculata (Say, 1826)
Cylichna alba (T. Brown, 1827) *
Cylichna verrillii Dall, 1889
Cylichnella bidentata (d'Orbigny, 1841)
Scaphander nobilis Verrill, 1884
Cymatiidae
Cymatium femorale (Linnaeus, 1758)
Gutturnium muricinum (Röding, 1798)
Linatella caudata (Gmelin, 1791)
Monoplex aquatilis (Reeve, 1844)
Monoplex gemmatus (Reeve, 1844) *
Monoplex nicobaricus (Röding, 1798)
Monoplex parthenopeus (Salis Marschlins, 1793)
Monoplex pilearis (Linnaeus, 1758)*
Monoplex vespaceus (Lamarck, 1822)
Monoplex wiegmanni (Anton, 1838)
Ranularia cynocephala (Lamarck, 1816)
Turritriton labiosus (W. Wood, 1828)
Cypraeidae
Luria cinerea (Gmelin, 1791)
Macrocypraea cervinetta (Kiener, 1844)
Macrocypraea cervus (Linnaeus, 1771)
Macrocypraea zebra (Linnaeus, 1758)
Naria acicularis (Gmelin, 1791)
Naria spurca (Linnaeus, 1758)
Cystiscidae
Gibberula catenata (Montagu, 1803)
Gibberula lavalleeana (d'Orbigny, 1842)
Persicula frumentum (Sowerby I, 1832)
Persicula obesa (Redfield, 1846)
Drilliidae
Clathrodrillia solida (C. B. Adams, 1850)
Fenimorea janetae Bartsch, 1934
Ellobiidae
Blauneria heteroclita (Montagu, 1808)
Ellobium dominicense (Férussac, 1821)
Melampus bidentatus Say, 1822
Melampus bullaoides (Montagu, 1808)
Melampus coffea (Linnaeus, 1758)
Melampus flavus (Gmelin, 1791)
Melampus monile (Bruguière, 1789)
Pedipes mirabilis (Megerle von Mühlfeld, 1816)
Tralia ovula (Bruguière, 1789)
Eoacmaeidae
Eoacmaea pustulata (Helbling, 1779)
Epitoniidae
Cycloscala echinaticosta (d'Orbigny, 1842)
Epitonium albidum (d'Orbigny, 1842)
Epitonium apiculatum (Dall, 1889)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES INVÉRTÉBRÉS (suite)
White-spot miter En)
Sulcate miter (En)
Cylichna blanc
Two-tooth barrel-bubble (En)
Triton anguleux
Triton bosselé
Ringed triton (En)
Triton aquatile
Jeweled triton (En)
Triton de Naple, Triton velu
Triton poilu
Dwarf hairy triton (En)
Doghead triton (En)
Lip triton (En)
Deer cowry (En)
Atlantic deer cowrie (En)
Measled cowrie (En)
Atlantic yellow cowrie (En)
Cowries (En)
Princess marginella (En)
Snowflake marginella (En)
Solid drillia (En)
Janet's turrid (En)
Left-hand melampus (En)
Common marsh snail (En)
Coffee melampus (En)
Caribbean melampus (En)
Miraculous pedipes (En)
Egg melampus (EN)
Spotted limpet (En)
Wide-coiled wentletrap (En)
Semismooth wentletrap (En)
AphiaID
Alph3
FB-SLB
420226
866426
957170
395918
596885
567321
754382
758836
160065
139474
420537
420538
139489
225025
220950
141114
476516
476521
476529
476531
476533
476538
476540
476546
476594
390557
578043
419722
419723
1075023
1075013
420128
420130
533266
533271
433229
420307
420634
420636
160368
420639
420640
764416
420641
420644
420646
458655
419797
419803
419804
XUX
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
YJF
YMM
KMU
YMJ
GAS
YMN
KMR
YUJ
GAS
GAS
GAS
MUE
ZAX
ZAX
ZAX
ZAX
ZAX
ZAX
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
LPZ
GAS
GAS
GAS
0
0
0
2009
0
0
0
2010
0
0
0
2005
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
2009
2009
0
2009
0
0
0
2009
0
0
0
2009
0
FAO
OBIS
GBIF
Pplt
1988
0
0
1988
1
1
p6
p4
p4
p1
0
0
0
0
0
0
0
0
0
1976
0
0
0
0
1976
0
0
1976
1
1
1
1
0
1
1
1
0
1900
1
1
1
1
1976
1
1858
1976
1
1
1
1917
1960
1982
1976
1976
1
1
1
1
1
1
1
1
1
1
1
1
1
1929
1
1
1927
1
1
1
0
0
1976
0
0
1863
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1976
0
0
0
p6
p1
p2
p10
p6
p6
p0
p4
p4
p6
p4
p6
p4
p1
p4
p3
p10
p3
p4
p4
p6
p6
p6
p1
p1
p1
p1
p1
p1
p1
p4
p6
p6
p6
�203
famille
Nom scientifique
Mollusques (suite)
Mollusques gastéropodes (suite)
Epitoniidae (suite)
Epitonium candeanum (d'Orbigny, 1842)
Epitonium foliaceicosta (d'Orbigny, 1842)
Epitonium hexagonum (G. B. Sowerby II, 1844)
Epitonium multistriatum (Say, 1826)
Epitonium novangliae (Couthouy, 1838)
Epitonium occidentale (Nyst, 1871)
Epitonium tiburonense Clench & R. D. Turner, 1952
Epitonium unifasciatum (Sowerby II, 1844)
Gyroscala commutata (Monterosato, 1877)
Janthina janthina (Linnaeus, 1758)
Opalia crenata (Linnaeus, 1758)
Opalia hotessieriana (d'Orbigny, 1842)
Opalia pumilio (Mörch, 1875)
Eratoidae
Hespererato maugeriae (J.E. Gray, 1832)
Eulimidae
Eulima bifasciata d'Orbigny, 1841
Eulima fulvocincta C. B. Adams, 1850
Hemiliostraca auricincta (Abbott, 1958)
Melanella eburnea (Megerle von Mühlfeld, 1824)
Niso aeglees Bush, 1885
Vitreobalcis nutans (Megerle von Mühlfeld, 1824)
Fasciolariidae
Aristofusus excavatus (G. B. Sowerby II, 1880)
Fasciolaria tulipa (Linnaeus, 1758)
Hemipolygona carinifera (Lamarck, 1816)
Hemipolygona mcgintyi (Pilsbry, 1939)
Leucozonia leucozonalis (Lamarck, 1822)
Leucozonia nassa (Gmelin, 1791)
Leucozonia ocellata (Gmelin, 1791)
Polygona infundibulum (Gmelin, 1791)
Teralatirus roboreus (Reeve, 1845)
Triplofusus giganteus (Kiener, 1840)
Fissurellidae
Diodora arcuata (G. B. Sowerby II, 1862)
Diodora cayenensis (Lamarck, 1822)
Diodora dysoni (Reeve, 1850)
Diodora listeri (d'Orbigny, 1847)
Diodora minuta (Lamarck, 1822)
Diodora sayi (Dall, 1889)
Diodora viridula (Lamarck, 1822)
Fissurella angusta (Gmelin, 1791)
Fissurella barbadensis (Gmelin, 1791)
Fissurella barbouri Pérez Farfante, 1943
Fissurella clenchi Pérez Farfante, 1943
Fissurella fascicularis Lamarck, 1822
Fissurella nimbosa (Linnaeus, 1758)
Fissurella nodosa (Born, 1778)
Fissurella nubecula (Linnaeus, 1758) *
Hemimarginula pumila (A. Adams, 1852)
Hemitoma octoradiata (Gmelin, 1791)
Lucapina sowerbii (Sowerby I, 1835)
Lucapina suffusa (Reeve, 1850)
Lucapinella limatula (Reeve, 1850)
Montfortia emarginata (Blainville, 1825)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES INVÉRTÉBRÉS (suite)
Many-ribbed wentletrap (En)
Lamellose wentletrap (En)
Common purple sea snail (En)
Pitted wentletrap (En)
Dwarf wentletrap (En)
Green erato
Two-band eulima (En)
Gold-stripe eulima (En)
Brown-line niso (En)
Apricot Spindle (En)
Fasciolaire tulipe
McGinty's latirus (En)
Fuseau marron
White-spot latirus (En)
Fuseau zébré
Pleuroploque géant
Arcuate keyhole limpet (En)
Cayenne keyhole limpet (En)
Dyson's keyhole limpet (En)
Fissurelle de Lister
Dwarf keyhole limpet (En)
Say's keyhole limpet (En)
Green keyhole limpet (En)
Narrow keyhole limpet (En)
Fissurelle de Barbade
Wobbly keyhole limpet (En)
Fissurelle rayonnante
Fissurelle nuageuse
Pygmy emarginula (En)
Sowerby's fleshy limpet (En)
File fleshy limpet (En)
Emarginate emarginula (En)
AphiaID
Alph3
FB-SLB
419806
419808
523875
160295
160297
419813
524203
419817
524634
140155
139750
419824
224843
419744
419836
419837
566069
537003
419851
533601
1318056
420024
489043
420041
420043
420044
420045
420047
746841
420051
419337
160265
419339
419343
419345
419347
419349
419354
419355
224275
731983
419356
729935
419357
139970
585729
419360
419366
419367
419368
585820
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
UXS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
FST
GAS
GAS
UAX
LZN
BEX
JSI
GAS
FKX
DFX
DFX
DFX
DDL
DFX
DFX
DFX
FSX
FSB
FSX
FSX
FSX
FSM
FSX
FSU
GAS
LPZ
GAS
GAS
GAS
GAS
OBIS
GBIF
Pplt
2009
2009
0
0
p6
p6
0
2009
2009
2009
2009
2009
0
2009
0
0
0
0
2009
0
0
0
0
0
2002
0
0
0
0
0
0
0
0
0
0
0
2002
0
0
2009
0
2002
0
0
0
0
1
0
1
1
1
1
1
1
1
1
1
1
1
1
1
1
1
1
1
1
1
1927
1
1
1979
1858
1
1976
1927
1
1
1
1
1927
1
1
1
1
1976
1
1
1976
1
1
1
1
1976
1
0
1
1
0
2002
2009
0
0
2009
0
2009
0
0
FAO
0
0
0
0
0
0
0
0
0
0
0
0
2002
0
2002
2002
2002
0
1976
0
0
0
0
0
1976
0
0
0
0
0
1976
0
0
0
0
1976
0
0
1976
0
0
0
0
1976
0
0
0
0
p3
p6
p6
p1
p3
p7
p6
p6
p6
p6
p6
p6
p6
p4
p6
p4
p3
p1
p1
p6
p1
p3
p1
p4
p6
p4
p1
p4
p3
p6
p6
p3
p1
p1
p3
p1
p4
p6
p3
p4
p6
p4
p3
p6
�204
famille
Nom scientifique
Mollusques (suite)
Mollusques gastéropodes (suite)
Haminoeidae
Haminoea elegans (Gray, 1825)
Haminoea navicula (da Costa, 1778) *
Harpidae
Harpa major Röding, 1798 *
Morum dennisoni (Reeve, 1842)
Morum oniscus (Linnaeus, 1767)
Hipponicidae
Cheilea equestris (Linnaeus, 1758)
Hipponix antiquatus (Linnaeus, 1767)
Hydrobiidae
Pyrgophorus parvulus (Guilding, 1828)
Laubierinidae
Pisanianura grimaldii (Dautzenberg, 1899)
Litiopidae
Alaba incerta (d'Orbigny, 1841)
Litiopa basistriata Dall
Litiopa melanostoma Rang, 1829
Littorinidae
Cenchritis muricatus (Linnaeus, 1758)
Echinolittorina angustior (Mörch, 1876)
Echinolittorina dilatata (d'Orbigny, 1842)
Echinolittorina jamaicensis (C. B. Adams, 1850)
Echinolittorina lineolata (d'Orbigny, 1840)
Echinolittorina meleagris (Potiez & Michaud, 1838)
Echinolittorina tuberculata (Menke, 1828)
Echinolittorina ziczac (Gmelin, 1791)
Littoraria angulifera (Lamarck, 1822)
Littoraria flava (P. P. King, 1832)
Littoraria nebulosa (Lamarck, 1822)
Littoraria scabra (Linnaeus, 1758) *
Littoraria tessellata (Philippi, 1847)
Tectarius antonii (Philippi, 1846)
Tectarius coronatus Valenciennes, 1832
Lottiidae
Lottia antillarum G. B. Sowerby I, 1834
Lottia leucopleura (Gmelin, 1791)
Mangeliidae
Agathotoma candidissima (C. B. Adams, 1845)
Brachycythara biconica (C. B. Adams, 1850)
Cryoturris quadrilineata (C. B. Adams, 1850)
Glyphoturris quadrata (Reeve, 1845)
Glyphoturris rugirima (Dall, 1889)
Ithycythara auberiana (d'Orbigny, 1847)
Ithycythara psila (Bush, 1885)
Pyrgocythara filosa Rehder, 1943
Vitricythara metria (Dall, 1903)
Marginellidae
Granulina ovuliformis (d'Orbigny, 1842)
Marginellopsis serrei Bavay, 1911
Prunum apicinum (Menke, 1828)
Prunum carneum (Storer, 1837)
Prunum guttatum (Dillwyn, 1817)
Prunum labrosum (Redfield, 1870)
Prunum marginatum (Born, 1778)
Prunum pellucidum (Pfeiffer, 1840)
Prunum pruinosum (Hinds, 1844)
Prunum prunum (Gmelin, 1791)
Prunum rostratum (Redfield, 1870)
Prunum storeria (Couthouy, 1837)
Volvarina angustata (G. B. Sowerby II, 1846)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES INVÉRTÉBRÉS (suite)
Elegant glassy-bubble (En)
Limace Petit-bateau
Harpe majeure
Dennison morum (En)
Atlantic morum (En)
False cup-and-saucer (En)
White hoofsnail (En)
Varicose cerith (En)
Sargassum snail (En)
Beaded periwinkle (En)
Slender periwinkle (En)
Pricklywinkle (En)
Lineolate periwinkle (En)
White-spot periwinkle (En)
Common prickly winkle (En)
Mangrove periwinkle (En)
Cloudy periwinkle (En)
Scabra periwinkle (En)
Littorine couronnée
Southern limpet (En)
Black-rib limpet (En)
White-frosted mangelia (En)
Biconic mangelia (En)
Square glyph-turrid (En)
Filose mangelia
Teardrop marginella (En)
Common Atlantic marginella (En)
Orange marginella (En)
White-spot marginella (En)
Plum marginella (En)
AphiaID
Alph3
FB-SLB
140071
140075
208166
403719
403731
212110
212117
533366
140782
419526
GAS
GAS
HBM
JJX
CON
LPZ
GAS
GAS
GAS
GAS
0
0
0
0
0
0
0
2009
140258
419557
419558
446856
449199
446863
419560
419563
419564
419565
446914
419567
208939
419568
419569
446936
456586
419325
409957
420326
420332
420335
420336
420339
420344
420356
420366
532891
550138
420149
420152
420156
473965
473968
473974
420163
473978
420165
473986
537152
BEX
GSH
PER
PER
PER
PER
PER
PER
PER
PER
PER
PER
LRZ
GAS
PER
EKQ
KJX
KJX
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
0
0
0
0
0
0
0
2009
0
0
0
0
0
2009
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
FAO
OBIS
GBIF
Pplt
0
0
0
0
1976
0
0
0
1988
0
1
1
1
1
1927
1
1
0
1988
1
1
1
1865
1928
1
1927
1975
1927
1865
1917
1927
1
1
1929
1929
1865
1
1
1976
1
1
1
1
1
1
1
1
1
1
1
1
1
1
1
1
1
1
1
1
1
1
p4
1929
1970
0
0
1970
1927
0
1917
1927
0
0
1929
1929
0
0
0
1976
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
p6
p6
p4
p3
p3
p1
p4
p4
p3
p3
p4
p4
p3
p3
p4
p1
p1
p4
p1
p3
p1
p3
p6
p6
p1
p6
p6
p6
p6
p1
p1
p3
p3
p1
p1
p1
p1
p1
p1
p1
p6
p1
p1
�205
famille
Nom scientifique
Mollusques (suite)
Mollusques gastéropodes (suite)
Marginellidae (suite)
Volvarina avena (Kiener, 1834)
Volvarina beyerleana (Bernardi, 1853)
Volvarina rubella (C. B. Adams, 1845)
Melongenidae
Melongena melongena (Linnaeus, 1758)
Mitridae
Neotiara nodulosa (Gmelin, 1791)
Probata barbadensis (Gmelin, 1791)
Modulidae
Modulus modulus (Linnaeus, 1758)
Trochomodulus carchedonius (Lamarck, 1822)
Muricidae
Chicoreus brevifrons (Lamarck, 1822)
Chicoreus florifer (Reeve, 1846)
Claremontiella nodulosa (C. B. Adams, 1845)
Coralliophila caribaea Abbott, 1958
Coralliophila erosa (Röding, 1798)
Coralliophila galea (Dillwyn, 1823)
Eupleura tampaensis (Conrad, 1846)
Hexaplex duplex (Röding, 1798)
Hexaplex fulvescens (G. B. Sowerby II, 1834)
Murexsul oxytatus (M. Smith, 1938)
Muricopsis caribbaea (Bartsch & Rehder, 1939)
Muricopsis rosea (Reeve, 1846)
Muricopsis rutila (Reeve, 1846)
Nucella lapillus (Linnaeus, 1758)
Phyllonotus pomum (Gmelin, 1791)
Plicopurpura patula (Linnaeus, 1758)
Siratus articulatus (Reeve, 1845)
Siratus cailleti (Petit de la Saussaye, 1856)
Siratus ciboney (Clench & Pérez Farfante, 1945)
Siratus formosus (G. B. Sowerby II, 1841)
Siratus kugleri (Clench & Pérez Farfante, 1945)
Siratus perelegans (Vokes, 1965)
Stramonita floridana (Conrad, 1837)
Stramonita haemastoma (Linnaeus, 1767)
Stramonita rustica (Lamarck, 1822)
Thais undata Lamarck
Vasula deltoidea (Lamarck, 1822)
Vokesimurex cabritii (Bernardi, 1859)
Vokesimurex recurvirostris (Broderip, 1833)
Nassariidae
Buccinanops monilifer (Kiener, 1834)
Nassarius acutus (Say, 1822)
Nassarius candei (d'Orbigny, 1847)
Nassarius consensus (Ravenel, 1861)
Nassarius fenistratus (Marrat, 1877)
Phrontis alba (Say, 1826)
Phrontis antillarum (d'Orbigny, 1847)
Phrontis polygonata (Lamarck, 1822)
Phrontis vibex (Say, 1822)
Naticidae
Natica turtoni E. A. Smith, 1890
Naticarius canrena (Linnaeus, 1758)
Naticarius stercusmuscarum (Gmelin, 1791)
Polinices hepaticus (Röding, 1798)
Polinices lacteus (Guilding, 1834)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES INVÉRTÉBRÉS (suite)
Orange-band marginella (En)
Mélongène des Caraïbes
Beaded miter (En)
Barbados miter (En)
Button snail (En)
Angled modulus (En)
Rocher antillais
Flowery lace murex (En)
Blackberry drupe (En)
South seas coral shell (En)
Helmet coralsnail (En)
Tampa drill (En)
Giant eastern murex (En)
Hexagonal murex (En)
Pink drupe (En)
Pourpre de l'Atlantique
Rocher pomme
Caillet's murex (En)
Antilles murex (En)
Pourpre haemastoma
Ovarque couronne
Pourpre deltoide
Murex à bec recourbé
Collared buccinum (En)
Striate nassa (En)
White nassa (En)
Antilles nassa (En)
Black-spot nassa (En)
Bruised nassa (En)
Natice de Turton
Tiger eye (En)
Brown moonsnail (En)
Milk moonsnail (En)
AphiaID
Alph3
FB-SLB
420170
865685
474072
420062
1060369
1074824
419529
816991
558803
558810
1335417
419933
208126
419934
404195
596154
596160
407876
744161
744601
744593
140403
419944
396994
405261
405264
405267
405271
593236
405276
397115
140417
397116
GAS
GAS
GAS
NGK
VGX
VGX
TSH
GAS
KSB
NCX
JLX
JLX
RPN
MUE
MUE
HZX
HZX
MUE
JLX
JLX
JLX
JLX
FLO
JLX
MUE
MUE
MUE
MUE
MUE
NCX
IBX
MUE
JLX
JLX
IBX
MUE
MUE
BEX
NBX
NBX
NBX
NBX
NBX
NBX
NBX
NBX
NKT
GAS
NKS
NDX
NDX
0
0
0
2002
0
0
0
0
2002
0
0
0
0
0
0
714225
405198
405226
532467
160395
532265
420065
576764
877063
877064
877060
877061
224854
419760
720574
419762
224824
FAO
2002
2002
0
0
0
0
0
2002
2009
0
0
2009
0
0
2009
0
2002
2009
2002
2002
0
0
0
0
2009
0
0
0
0
0
0
1981
0
0
0
0
OBIS
GBIF
Pplt
1976
0
1927
1
1
1900
1
1
1927
1929
1
1
1
1
1
1925
1
0
1
1
1
1
1
1
1858
1858
1858
1980
0
1900
1962
1
1
1858
1976
1
1976
0
1
1972
1
1
1
1
1
1
1
1928
0
1976
1
1
1976
p6
p1
1976
1976
1976
1976
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1976
0
0
0
0
0
0
0
0
0
1976
0
0
0
0
0
0
0
0
0
0
1978
0
0
0
1976
p1
p3
p6
p4
p4
p6
p4
p4
p4
p3
p1
p1
p6
p4
p1
p4
p4
p3
p6
p6
p6
p6
p6
p3
p6
p4
p4
p6
p1
p6
p1
p6
p3
p6
p1
p1
p1
p3
p1
p3
�206
famille
Nom scientifique
Mollusques (suite)
Mollusques gastéropodes (suite)
Naticidae (suite)
Sinum maculatum (Say, 1831)
Stigmaulax cancellatus (Hermann, 1781)
Stigmaulax sulcatus (Born, 1778)
Tectonatica pusilla (Say, 1822)
Neritidae
Clithon madecassinum (Morelet, 1860)
Nerita fulgurans Gmelin, 1791
Nerita peloronta Linnaeus, 1758
Nerita tessellata Gmelin, 1791
Nerita versicolor Gmelin, 1791
Puperita pupa (Linnaeus, 1767)
Smaragdia viridis (Linnaeus, 1758)
Vitta clenchi (Russell, 1940)
Vitta meleagris (Lamarck, 1822)
Vitta virginea (Linnaeus, 1758)
Neritiliidae
Neritilia succinea (Récluz, 1841)
Olividae
Agaronia acuminata (Lamarck, 1811)
Americoliva reticularis (Lamarck, 1811)
Oliva bifasciata Kuster, 1878
Oliva fulgurator (Röding, 1798)
Oliva jamaicensis Marrat, 1867
Oliva scripta Lamarck, 1811
Olivancillaria millepunctata (Duclos, 1840)
Olivella diodocus (Marrat, 1871)
Olivella mica (Duclos, 1835)
Olivella micula (Marrat, 1871)
Olivella minuta (Link, 1807)
Olivella miriadina (Duclos, 1835)
Olivella mutica (Say, 1822)
Olivella nivea (Gmelin, 1791)
Olivella rosolina (Duclos, 1835)
Olivella verriauxii (Duclos, 1857)
Ovulidae
Cymbovula acicularis (Lamarck, 1810)
Cyphoma gibbosum (Linnaeus, 1758)
Cyphoma intermedium (G. B. Sowerby I, 1828)
Cyphoma signatum Pilsbry & McGinty, 1939
Patellidae
Patella caerulea Linnaeus, 1758 *
Patella rustica Linnaeus, 1758
Pectinodontidae
Pectinodonta arcuata Dall, 1882
Personidae
Distorsio clathrata (Lamarck, 1816)
Phasianellidae
Echinolittorina punctata (Gmelin, 1791) *
Eulithidium adamsi (Philippi, 1853)
Eulithidium affine (C. B. Adams, 1850)
Eulithidium bellum (M. Smith, 1937)
Eulithidium tessellatum (Potiez & Michaud, 1838)
Eulithidium thalassicola (R. Robertson, 1958)
Phenacolepadidae
Hyalopatina rushii (Dall, 1889)
Plesiothyreus cytherae (Lesson, 1831) *
Plesiothyreus hamillei (P. Fischer, 1857)
Pisaniidae
Bailya intricata (Dall, 1884)
Engina turbinella (Kiener, 1836)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES INVÉRTÉBRÉS (suite)
Brown baby ear (En)
Grooved moonsnail (En)
Miniature moonsnail (En)
Antillean nerite (En)
Nérite dent saignant
Checkered nerite (En)
Four-tooth nerite (En)
Emerald nerite (En)
Virgin nerite (En)
Olive réticulée
Minute dwarf olive (En)
West Indian simnia (En)
Flamingo tongue (En)
Intermediate cyphoma (En)
Monnaie Caraïbe sinuée
Patelle de la Méditerranée
Patelle ponctuée
Stained pheasant (En)
Shouldered pheasant (En)
Turtlegrass pheasant (En)
Hamille's limpet (En)
Intricate phos (En)
White-spot engina (En)
AphiaID
Alph3
FB-SLB
419768
419770
419772
160063
873244
419503
419504
419505
419506
419513
140570
1355740
1362579
865834
419514
225436
815489
448086
448107
448112
420127
465622
448200
448224
448225
420111
448228
159949
420113
420116
UIX
GAS
NDX
NDX
NIX
NIX
NIX
NIX
NIX
NIX
NIX
NIX
GAS
NIX
NIX
OXX
OXX
OXX
OXX
OXX
OXX
OXX
OXX
OXX
OXX
OXX
OXX
OXX
OXX
OXX
OXX
GAS
GAS
GAS
GAS
LQC
LQR
GAS
GAS
GSH
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
0
0
0
0
419725
432297
430876
419732
140677
140683
488974
419785
419484
419482
419483
419484
419486
419487
754642
1323144
419516
419961
234108
0
2002
0
0
2009
0
0
0
0
2009
0
0
0
0
2009
FAO
2002
OBIS
GBIF
Pplt
0
0
1976
0
0
0
1976
1976
1976
0
1976
1976
0
1929
0
0
1976
0
0
1
1
1976
1
1
1975
1973
1934
1927
1981
1976
1976
1
1918
1
1
1937
1
1984
1974
1956
1
1
1
1
1
1
1
1
1
1
1979
1911
1
1
1
1
1963
1
1
1980
1
1
1
1
1
1
1
1
1
p6
p6
p1
p6
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
2006b
0
2006b
0
0
0
2009
0
2009
2009
2009
2009
2009
0
0
0
0
0
0
0
0
0
0
0
1963
0
0
1980
0
0
0
0
0
0
0
0
0
p4
p3
p3
p4
p1
p4
p1
p4
p4
p1
p6
p6
p1
p1
p1
p6
p1
p1
p3
p1
P3
p10
p6
p4
p4
p4
p4
p4
p1
p1
p4
p4
�207
famille
Nom scientifique
Mollusques (suite)
Mollusques gastéropodes (suite)
Pisaniidae (suite)
Gemophos auritulus (Link, 1807)
Gemophos tinctus (Conrad, 1846)
Monostiolum tessellatum (Reeve, 1844)
Pisania pusio (Linnaeus, 1758)
Plakobranchidae
Elysia crispata Mörch, 1863
Planaxidae
Angiola lineata (da Costa, 1778)
Fossarus orbignyi P. Fischer, 1864
Planaxis nancyae Petuch, 2013
Supplanaxis nucleus (Bruguière, 1789)
Pleurobranchidae
Berthellina quadridens (Mörch, 1863)
Pleurotomariidae
Bayerotrochus midas (Bayer, 1965)
Entemnotrochus adansonianus (Crosse & P. Fischer, 1861)
Perotrochus lucaya Bayer, 1965
Perotrochus quoyanus (P. Fischer & Bernardi, 1856)
Potamididae
Cerithideopsis costata (da Costa, 1778)
Cerithideopsis pliculosa (Menke, 1829)
Pseudomelatomidae
Crassispira sanibelensis Bartsch & Rehder, 1939
Hormospira maculosa (Sowerby I, 1834) *
Pilsbryspira albocincta (C. B. Adams, 1845)
Pilsbryspira leucocyma (Dall, 1884)
Pilsbryspira nodata (C. B. Adams, 1850)
Pilsbryspira zebroides (Weinkauff & Kobelt, 1876)
Pyramidellidae
Boonea bisuturalis (Say, 1822)
Chrysallida dux (Dall & Bartsch, 1906)
Fargoa bushiana (Bartsch, 1909)
Longchaeus candidus (Mörch, 1875)
Odostomia laevigata (d'Orbigny, 1841)
Sayella fusca (C. B. Adams, 1839)
Turbonilla abrupta Bush, 1899
Turbonilla exilis (C. B. Adams, 1850)
Turbonilla puncta (C. B. Adams, 1850)
Turbonilla pupoides (d'Orbigny, 1841)
Turbonilla verkruezeni Clessin, 1902 ***
Raphitomidae
Daphnella lymneiformis (Kiener, 1840)
Rhizoridae
Volvulella paupercula (R. B. Watson, 1883)
Rissoidae
Alvania auberiana (d'Orbigny, 1842)
Phosinella privati (de Folin, 1867)
Zebinella striatocostata (d'Orbigny, 1842)
Rissoinidae
Rissoina krebsii Mörch, 1876
Zebinella decussata (Montagu, 1803)
Skeneidae
Lissospira valvata (Dall, 1927)
Strombidae
Aliger gallus (Linnaeus, 1758)
Aliger gigas (Linnaeus, 1758)
Lobatus raninus (Gmelin, 1791)
Macrostrombus costatus (Gmelin, 1791)
Strombus alatus Gmelin, 1791
Strombus pugilis Linnaeus, 1758
Tegulidae
Cittarium pica (Linnaeus, 1758)
Tegula excavata (Lamarck, 1822)
Tegula fasciata (Born, 1778)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES INVÉRTÉBRÉS (suite)
Gaudy cantharus (En)
Tinted cantharus (En)
Miniature trumpet triton (En)
Lettuce slug (En)
Dwarf Atlantic planaxis (En)
Orbigny's fossarus (En)
Black planaxis (En)
Adanson's pleurotomaria (En)
Costate hornsnail (En)
Plicate hornsnail (En)
White-knob drillia (En)
Odostomie à double suture
Smooth odostome (En)
Fat turbonille (En)
Absente de WoRMS, OBIS, GBIF
Volute daphnelle (En)
Spineless spindle-bubble (En)
West Indian Alvania (En)
Decussate risso
Strombe queue-de-coq
Strombe rosé
Strombe aile de faucon
Strombe laiteux
Conque batailleuse
Strombe combattant
Troque des Antilles
Green-base tegula (En)
Silky tegula (En)
Lambi
AphiaID
Alph3
FB-SLB
419968
419969
419976
419978
420572
224584
419532
730456
419533
420584
413447
413449
467988
467973
758590
758582
433430
434028
420407
420409
420411
434643
397024
739904
160330
420462
420457
160443
420477
533558
420495
420497
BEX
GAS
GAS
BEX
GAS
BEX
GAS
GAS
BEX
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
UGA
COO
RXR
MBQ
CON
RXU
KUI
GFX
GFX
420373
420551
419615
767542
731915
419629
731914
532983
419692
1429769
531851
1429775
419694
419695
419449
419458
419459
FAO
OBIS
GBIF
Pplt
0
0
0
0
2006b
0
0
0
0
0
1976
0
0
0
p3
p3
p3
p1
p3
p4
p4
0
2005
0
0
0
0
0
0
1976
0
1988
1988
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1976
1979
1
1976
2007
1984
1
1
1874
0
1988
1988
1
1969
1
1
1
1
1
1
1979
1
1
1988
1
1
1
1
2003
0
1
1
0
0
0
1888
1
1
p1
p6
p4
0
0
0
0
1
1
1
1960
1900
1900
1976
1
1900
1900
1976
1976
p1
p6
p6
p6
p4
p1
p4
p4
p4
p4
p3
p4
0
0
0
0
0
0
0
0
0
0
2009
0
0
1
0
0
0
2009
1
0
0
0
0
2002
2006b
2002
2006b
2002
2002
0
0
2002
2002
2002
2002
1996
1976
1976
1976
0
1976
1976
1976
1976
p4
p1
p6
p6
p6
p6
p1
p4
p1
p4
p1
p1
p6
p6
p1
p1
p6
p1
p6
�208
famille
Nom scientifique
Mollusques (suite)
Mollusques gastéropodes (suite)
Tegulidae (suite)
Tegula hotessieriana (d'Orbigny, 1842)
Tegula lividomaculata (C. B. Adams, 1845)
Terebridae
Hastula hastata (Gmelin, 1791)
Hastula cinerea (Born, 1778)
Tonnidae
Tonna galea (Linnaeus, 1758)
Tonna pennata (Mörch, 1853)
Tonna perdix (Linnaeus, 1758)
Tornatinidae
Acteocina candei (d'Orbigny, 1841)
Acteocina liratispira (E. A. Smith, 1872)
Acteocina recta (d'Orbigny, 1841)
Tornidae
Solariorbis semipunctus D. R. Moore, 1965
Triphoridae
Cosmotriphora melanura (C. B. Adams, 1850)
Iniforis turristhomae (Holten, 1802)
Triviidae
Niveria nix (Schilder, 1922)
Niveria quadripunctata (J.E. Gray, 1827)
Triviidae (suite)
Niveria suffusa (J.E. Gray, 1827)
Pusula pediculus (Linnaeus, 1758)
Trochidae
Pseudostomatella coccinea (A. Adams, 1850)
Truncatellidae
Truncatella pulchella Pfeiffer, 1839
Truncatella scalaris (Michaud, 1830)
Turbinellidae
Turbinella angulata (Lightfoot, 1786)
Vasum muricatum (Born, 1778)
Turbinidae
Lithopoma americanum (Gmelin, 1791)
Lithopoma brevispina (Lamarck, 1822)
Lithopoma caelatum (Gmelin, 1791)
Lithopoma phoebium (Röding, 1798)
Lithopoma tectum (Lightfoot, 1786)
Lithopoma tuber (Linnaeus, 1758)
Lodderena ornata (Olsson & McGinty, 1958)
Lodderena pulchella (Olsson & McGinty, 1958)
Turbo canaliculatus Hermann, 1781
Turbo castanea Gmelin, 1791
Turridae
Epideira candida (Laseron, 1954)
Polystira albida (G. Perry, 1811)
Turritellidae
Turritella exoleta (Linnaeus, 1758)
Turritella variegata (Linnaeus, 1758)
Turritellinella tricarinata (Brocchi, 1814) *
Vermicularia spirata (Philippi, 1836)
Vermetidae
Dendropoma corrodens (d'Orbigny, 1841)
Petaloconchus varians (d'Orbigny, 1839)
Vitrinellidae
Parviturboides interruptus (C. B. Adams, 1850)
Teinostoma goniogyrus Pilsbry & McGinty, 1945
Vitrinella helicoidea C. B. Adams, 1850
Volutidae
Voluta musica Linnaeus, 1758
Voluta polypleura Crosse, 1876
Voluta virescens Lightfoot, 1786
Xenophoridae
Onustus longleyi (Bartsch, 1931)
Xenophora conchyliophora (Born, 1780)
Zebinidae
Schwartziella bryerea (Montagu, 1803)
Schwartziella catesbyana (d'Orbigny, 1842)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES INVÉRTÉBRÉS (suite)
Caribbean tegula (En)
West Indian tegula (En)
Shiny auger (En)
Gray auger (En)
Tonne cannelée
Atlantic partridge tun (En)
Tonne perdrix
Channeled barrel-bubble (En)
Straight barrel-bubble (En)
White Atlantic triphora (En)
St. Thomas triphora (En)
Snowy trivia (En)
Fourspot trivia (En)
Pink trivia (En)
Coffee bean trivia (En)
Caribbean truncatella (En)
Chanque antillais
Turbinelle des Caraïbes
American star snail (En)
Turban incisé
Longspine starsnail (En)
Turban imbriqué
Green star-shell (En)
Turban canaliculé
Turban marron
White giant-turris (En)
Tourelle orientale
Variegate turretsnail (En)
Turritelle commune
West Indian wormsnail (En)
Ringed wormsnail (En)
Variable wormsnail (En)
Helix vitrinella (En)
Volute musique
Green music volute (En)
Shingled carriersnail (En)
American carriersnail (En)
Catesby's risso (En)
AphiaID
Alph3
FB-SLB
419461
419462
420227
225109
141687
410165
208014
420532
532342
420536
419668
141714
419902
419745
419746
419747
419749
419455
419690
527382
420076
420079
413407
581680
413408
413409
419499
528078
224556
419492
528088
528089
1056341
420396
419542
430319
1381415
160074
419547
419554
419662
419676
419686
382406
382543
382547
468054
743840
419636
419637
GFX
GFX
JVX
JVX
TOQ
GAS
TPX
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
GAS
UAX
VSU
TSH
TSH
LQK
GAS
IPT
IPU
GAS
GAS
UBN
UOT
GAS
GAS
GSH
GSH
UTO
GAS
GAS
GAS
GAS
GAS
GAS
VLU
GAS
VLV
GAS
TSH
TSH
GAS
0
0
0
0
2009
0
0
0
0
0
2009
0
0
0
0
0
0
0
0
0
2002
2009
0
0
0
0
0
0
2009
2009
2002
2002
2009
0
0
0
0
0
0
0
2009
2009
0
0
0
0
0
2006b
0
2009
FAO
2002
2002
2002
OBIS
GBIF
Pplt
0
0
0
0
1976
0
0
0
0
0
0
0
0
0
0
0
1976
0
0
0
0
0
0
1976
0
1976
0
0
0
0
0
1976
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1976
0
0
1
1
1
1984
1976
1979
1
1
1
1
0
1
1
1917
1917
1
1976
p1
p3
p6
p1
p10
p4
p3
p1
1
1
0
1979
1
1976
1
1976
1976
1
0
0
0
1937
0
1
0
1
1
1
1
1
0
0
1
1
1
1
1
1900
1
1927
p6
p1
p3
p6
p6
p4
p4
p3
p1
p1
p1
p4
p4
p3
p1
p3
p4
p1
p1
p3
p6
p6
p4
p3
p6
p1
p6
p1
p4
p6
p4
p6
p1
p6
p6
p6
p4
p4
p4
�209
famille
Nom scientifique
Mollusques (suite)
Mollusques gastéropodes (suite)
Zebinidae (suite)
Zebina browniana (d'Orbigny, 1842)
Échinodermes
Oursins
Aspidodiadematidae
Plesiodiadema antillarum (A. Agassiz, 1880)
Brissidae
Brissopsis atlantica mediterranea Mortensen, 1913
Brissus unicolor (Leske, 1778)
Meoma ventricosa ventricosa (Lamarck, 1816)
Cidaridae
Eucidaris tribuloides (Lamarck, 1816)
Clypeasteridae
Clypeaster luetkeni Mortensen, 1948
Clypeaster rosaceus (Linnaeus, 1758)
Clypeaster subdepressus (Gray, 1825)
Diadematoidae
Diadema antillarum Philippi, 1845
Echinometridae
Echinometra lucunter (Linnaeus, 1758)
Echinometra viridis A. Agassiz, 1863
Echinoneidae
Echinoneus cyclostomus Leske, 1778
Echinothuriidae
Hygrosoma petersii (A. Agassiz, 1880)
Mellitidae
Leodia sexiesperforata (Leske, 1778)
Phormosomatidae
Phormosoma placenta Thomson, 1872
Pourtalesiidae
Pourtalesia A. Agassiz, 1869
Saleniidae
Salenocidaris profundi (Duncan, 1877)
Salenocidaris varispina A. Agassiz, 1869
Toxopneustidae
Lytechinus euerces H.L. Clark, 1912
Lytechinus variegatus (Lamarck, 1816)
Lytechinus williamsi Chesher, 1968
Tripneustes ventricosus (Lamarck, 1816)
Holothuries
Holothuriidae
Actinopyga agassizii (Selenka, 1867)
Apostichopus japonicus (Selenka, 1867)
Holothuria (Halodeima) floridana (Pourtalès, 1851)
Holothuria (Halodeima) grisea Selenka, 1867
Holothuria (Halodeima) mexicana Ludwig, 1875
Holothuria (Selenkothuria) glaberrima Selenka, 1867
Holothuria (Theelothuria) princeps Selenka, 1867
Holothuria (Thymiosycia) arenicola Semper, 1868
Holothuria (Thymiosycia) thomasi Pawson & Caycedo, 1980
Molpadiidae
Molpadia oolitica (Pourtalès, 1851)
Phyllophoridae
Stolus cognatus (Lampert, 1885)
Thyone comata Cherbonnier, 1988
Psychropotidae
Benthodytes typica Théel, 1882
Stichopodidae
Astichopus multifidus (Sluiter, 1910)
Isostichopus badionotus (Selenka, 1867)
Synaptidae
Euapta lappa (J. Müller, 1850)
Porifères Desmospongia - Éponges
Agelasidae
Agelas cervicornis (Schmidt, 1870)
Agelas citrina Gotera & Alcolado, 1987
Agelas clathrodes (Schmidt, 1870)
Agelas conifera (Schmidt, 1870)
Agelas dilatata Duchassaing & Michelotti, 1864
Agelas dispar Duchassaing & Michelotti, 1864
Agelas flabelliformis (Carter, 1883)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES INVÉRTÉBRÉS (suite)
Smooth risso (En)
Oursin de sable gris
Oursin de sable rouge
Oursin-lance Antillais
Cake ursin (En)
Dollar des sables à rosace
Sand dollar (En)
Oursin-diadème
Oursin de récif
Oursin perforant vert
Petit oursin
Keyhole sand dollar (En)
Oursin galette
Green sea urchin (En)
Oursin blanc
Bêche de mer
Bêche-de-mer japonaise
Holothuries de Floride
Holothurie bouse d'âne
Holothurie roche brune
Concombre de mer de sable
Holothurie queue de tigre
Concombre de mer à poil
concombre pépites de chocolat
Concombre de mer perlé
Éponge corne de cerf
Éponge jaune
Orange elephant ear sponge (En)
Éponge corne d'élan
Éponge oreille d'éléphant
AphiaID
Alph3
FB-SLB
419645
GAS
2009
124330
738053
124380
422804
396741
422496
367962
422499
124332
213380
422493
212461
124339
422502
124343
123408
226068
124364
422488
367850
422489
422490
URX
URX
URX
URX
URX
URX
URX
URX
URX
URX
URX
URX
URX
URX
URX
URX
URX
URX
URX
URX
URX
TWV
241768
241776
210900
241833
125180
241851
210890
210814
241876
124802
422531
210686
124765
241780
367868
124454
YYC
WBX
WBX
WBX
JCQ
WBX
WBX
JCE
WBX
CUX
CUX
CUX
CUX
JPN
HIZ
CUX
164820
164822
164823
164824
164826
164827
164829
DMO
DMO
DMO
DMO
DMO
DMO
DMO
0
0
0
0
2011
0
2016
0
0
0
0
2016
0
0
0
0
0
2012
2004
2006c
0
0
2004b
0
0
0
.
2012
2018b
0
0
2006b
2006b
2016
2016
2006
FAO
OBIS
GBIF
Pplt
0
1
p4
1970
1970
0
0
1937
0
1867
0
1937
1937
1933
1934
1970
0
1970
1970
1970
1878
1970
1988
1988
1988
1878
1970
1
1
1937
0
1928
0
1937
1937
1842
1934
1970
0
1970
1970
1970
1970
1970
1
0
1989
p10
p6
p6
p4
p4
P6
p4
P6
p4
0
0
0
0
1988
1937
0
0
1988
0
0
1937
0
0
0
0
0
0
0
1857
2010
1865
1955
0
0
1970
0
0
1878
0
0
1
p4
p4
p1
p4
p4
p10
p6
p4
p1
p6
p1
2010
2010
0
2010
0
0
2010
2010
0
1
0
0
0
p3
p3
p1
p10
p6
p4
P3
p4
p10
p4
p4
p4
p3
�210
famille
Nom scientifique
Porifères Desmospongia Éponges (suite)
Agelasidae (suite)
Agelas schmidtii Wilson, 1902
Agelas tubulata Lehnert & van Soest, 1996
Agelas wiedenmayeri Alcolado, 1984
Ancorinidae
Asteropus simplex (Carter, 1879)
Stelletta sp. Schmidt, 1862
Stelletta kallitetilla (Laubenfels, 1936)
Aplysinidae
Aiolochroia crassa (Hyatt, 1875)
Aplysina archeri (Higgin, 1875)
Aplysina cauliformis (Carter, 1882)
Aplysina fistularis (Pallas, 1766)
Aplysina fulva (Pallas, 1766)
Aplysina insularis (Duchassaing & Michelotti, 1864)
Aplysina lacunosa (Lamarck, 1814)
Verongula gigantea (Hyatt, 1875)
Verongula reiswigi Alcolado, 1984
Verongula rigida (Esper, 1794)
Axinellidae
Phakellia ventilabrum (Linnaeus, 1767)
Ptilocaulis walpersii (Duchassaing & Michelotti, 1864)
Biemnidae
Biemna caribea Pulitzer-Finali, 1986
Neofibularia mordens Hartman, 1967
Neofibularia nolitangere (Duchassaing & Michelotti, 1864)
Callyspongiidae
Callyspongia (Cladochalina) armigera (Duchassaing & Michelotti, 1864)
Callyspongia (Callyspongia) fallax Duchassaing & Michelotti, 1864
Callyspongia (Callyspongia) pallida Hechtel, 1965
Callyspongia (Cladochalina) plicifera (Lamarck, 1814)
Callyspongia (Callyspongia) strongylophora Hartman, 1955
Callyspongia (Cladochalina) tenerrima Duchassaing & Michelotti, 1864
Callyspongia (Cladochalina) vaginalis (Lamarck, 1814)
Siphonochalina sp. Schmidt, 1868
Chalinidae
Chalinula molitba (de Laubenfels, 1949)
Haliclona (Soestella) caerulea (Hechtel, 1965)
Haliclona pigmentifera (Dendy, 1905)
Haliclona (Reniera) ruetzleri de Weerdt, 2000
Haliclona (Reniera) tubifera (George & Wilson, 1919)
Chondrosiidae
Chondrilla caribensis Rützler, Duran & Piantoni, 2007
Chondrilla nucula Schmidt, 1862
Chondrosia collectrix (Schmidt, 1870)
Chondrosia reniformis Nardo, 1847
Chondropsidae
Batzella rubra (Alcolado, 1984)
Clionaidae
Cliona aprica Pang, 1973
Cliona caribbaea Carter, 1882
Cliona delitrix Pang, 1973
Cliona laticavicola Pang, 1973
Cliona peponaca Pang, 1973
Cliona tenuis Zea & Weil, 2003
Cliona varians (Duchassaing & Michelotti, 1864)
Spheciospongia vesparium (Lamarck, 1815)
Crambeidae
Monanchora arbuscula (Duchassaing & Michelotti, 1864)
Desmacididae
Desmapsamma anchorata (Carter, 1882)
Dictyodendrillidae
Igernella notabilis (Duchassaing & Michelotti, 1864)
Dictyonellidae
Dictyonella funicularis (Rützler, 1981)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES INVÉRTÉBRÉS (suite)
Common brown tube sponge (En)
Éponge multicolore
Stove-pipe sponge (En)
Éponge-corde lavande
Éponge-tube jaune
Orange rope sponge (En)
Yellow finger tube sponge (En)
Convoluted barrel sponge (En)
Netted barrel sponge (En)
Amphiroa rigide
Éponge-calice
Axinelle rouge-orange
Éponge pas-touche
Éponge pas-touche
Éponge-pieuvre mauve rose
Éponge-tuyau rose
Éponge-vase ramifiée
Blue Caribbean sponge (En)
Chicken liver sponge
Éponge-cerveau
Eponge cuir, Eponge rognon
Red boring sponge (En)
Brown variable sponge (En)
Loggerhead sponge (En)
Éponge-cerveau rouge
Pink rope sponge (En)
AphiaID
Alph3
FB-SLB
164842
164845
164846
169793
131994
169953
169632
169636
169642
169648
169649
169655
169656
169672
169674
169675
132511
165618
168252
168322
168323
166207
166185
166192
166223
166200
166230
166232
131827
166293
166641
166430
166623
166626
248192
134110
170373
134112
387434
170425
170432
170437
170455
170470
170478
170485
170566
169016
169121
164900
165675
DMO
DMO
DMO
DMO
WSX
WSX
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
XAL
XAL
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
ZHL
ZHL
ZHL
ZHL
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
2016
2016
2006b
1990
2016
2006b
2006b
2006b
2006b
2016
2016
2006b
2006b
2016
2006b
2006
2016
2006b
2016
0
2016
2006b
2016
2016
2006b
2016
2006b,c
0
2016
2016
2016
2006
0
2016
2016
2016
2006b,c
2006b
2016
2016
2016
2006b
2006b
2006b
2016
2016
2016
FAO
OBIS
GBIF
0
0
0
0
0
0
2010
0
2010
0
0
0
0
0
0
2010
1880
0
0
2010
0
0
2010
0
2020
0
0
2010
0
0
0
2010
0
0
0
0
2010
0
0
0
0
0
0
0
0
0
0
2010
0
0
0
0
0
0
1
1
0
2010
1
2010
1
0
1
0
0
0
2010
1880
0
0
0
0
0
2010
0
2010
0
0
1859
1
0
0
0
0
0
0
0
2010
0
0
0
0
0
0
0
0
0
0
2010
0
0
0
Pplt
p6
p1
p4
p4
p3
p3
p3
p3
p3
p1
p4
p3
p3
�211
famille
Nom scientifique
Porifères Desmospongia - Éponges (suite)
Dictyonellidae (suite)
Dictyonellidae sp. van Soest, Diaz & Pomponi, 1990
Dysideidae
Dysidea dubia (Hyatt, 1877)
Dysidea etheria Laubenfels, 1936
Dysidea janiae (Duchassaing & Michelotti, 1864)
Pleraplysilla Topsent, 1905
Geodiidae
Erylus formosus Sollas, 1886
Geodia gibberosa Lamarck, 1815
Geodia neptuni (Sollas, 1886)
Geodia papyracea Hechtel, 1965
Halichondriidae
Topsentia ophiraphidites (Laubenfels, 1934)
Halisarcidae
Halisarca caerulea Vacelet & Donadey, 1987
Heteroxyidae
Myrmekioderma gyroderma (Alcolado, 1984)
Myrmekioderma rea (Laubenfels, 1934)
Hymedesmiidae
Phorbas amaranthus Duchassaing & Michelotti, 1864
Iotrochotidae
Iotrochota arenosa Rützler, Maldonado, Piantoni & Riesgo, 2007
Iotrochota birotulata (Higgin, 1877)
Irciniidae
Ircinia campana (Lamarck, 1814)
Ircinia felix (Duchassaing & Michelotti, 1864)
Ircinia strobilina (Lamarck, 1816)
Microcionidae
Clathria (Thalysias) curacaoensis Arndt, 1927
Clathria (Microciona) echinata (Alcolado, 1984)
Clathria (Clathria) faviformis Lehnert & van Soest, 1996
Clathria (Thalysias) minuta (van Soest, 1984)
Clathria (Thalysias) virgultosa (Esper, 1806)
Echinochalina sp. Thiele, 1903
Pandaros acanthifolium Duchassaing & Michelotti, 1864
Mycalidae
Mycale (Mycale) laevis (Carter, 1882)
Mycale (Arenochalina) laxissima (Duchassaing & Michelotti, 1864)
Mycale (Carmia) microsigmatosa Arndt, 1927
Niphatidae
Amphimedon compressa Duchassaing & Michelotti, 1864
Amphimedon viridis Duchassaing & Michelotti, 1864
Cribrochalina vasculum (Lamarck, 1814)
Niphates digitalis (Lamarck, 1814)
Niphates erecta Duchassaing & Michelotti, 1864
Niphates recondita (Wiedenmayer, 1977)
Petrosiidae
Neopetrosia carbonaria (Lamarck, 1814)
Neopetrosia proxima (Duchassaing & Michelotti, 1864)
Neopetrosia rosariensis (Zea & Rützler, 1983)
Neopetrosia subtriangularis (Duchassaing, 1850)
Petrosia (Petrosia) pellasarca (Laubenfels, 1934)
Petrosia (Petrosia) weinbergi van Soest, 1980
Xestospongia muta (Schmidt, 1870)
Xestospongia testudinaria (Lamarck, 1815)
Phloeodictyidae
Oceanapia bartschi (Laubenfels, 1934)
Siphonodictyon xamaycaense Pulitzer-Finali, 1986
Placospongiidae
Placospherastra micraster
Raspailiidae
Didiscus oxeatus Hechtel, 1983
Ectyoplasia ferox (Duchassaing & Michelotti, 1864)
Scopalinidae
Scopalina ruetzleri (Wiedenmayer, 1977)
Svenzea flava (Lehnert & van Soest, 1999)
Svenzea zeai (Alvarez, van Soest & Rützler, 1998)
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES INVÉRTÉBRÉS (suite)
Dictyonelle
Heavenly blue sponge (En)
Éponge de Neptune
Star encrusting sponge (En)
Convoluted orange sponge (En)
Green finger sponge (En)
Vase garlic sponge (En)
Stinker sponge (En)
Éponge-balle noire
Orange icing sponge (En)
Strawberry vase sponge (En)
Éponge-corde rouge sang
Green sponge (En)
Éponge-bol brune
Éponge-vase rose
Lavender rope sponge (En)
Éponge-flute marron
Éponge-pierre
Baril de rhum
baril de rhum
Éponge -volcans brune
Orange lumpy encrusting sponge
(En)
Éponge de Zea
AphiaID
Alph3
131632
164936
164941
164951
131743
170070
170126
418825
170154
165956
166037
166019
166023
169306
240545
169379
165009
165020
165051
765193
167636
167522
167759
1424390
167806
167841
168638
168561
168590
166666
166701
166708
166775
166776
166786
166799
378581
385326
166814
166852
166867
166894
166902
166946
178377
1033361
168021
165702
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
PFR
DMO
DMO
165716
165717
DMO
DMO
FB-SLB
2016
2016
2016
2016
0
0
2016
0
2006b
2016
0
2016
2016
2006b
2016
2016
2006b
2016
2016
2016
2016
2016
2016
2006b
2016
2016
2006b
2016
2006
2006b
2006b
2016
2006b
2016
2016
0
2016
0
2006b
0
2016
2016
2016
0
2006b
2016
2016
2002
FAO
OBIS
GBIF
1
0
0
0
1
1
0
0
0
0
2010
0
2010
0
0
2010
0
0
0
0
0
2010
0
0
0
0
0
1
0
0
0
0
2010
0
0
2010
0
0
0
0
0
0
0
2010
2010
2010
0
0
0
1933
2010
0
2010
0
0
2010
0
0
0
0
0
2010
0
0
0
0
0
1
0
0
0
0
2010
0
0
2010
0
0
0
0
0
1
0
1
2010
0
0
0
2010
2010
0
2010
2010
0
0
2010
0
2010
Pplt
p3
p3
p4
p3
p3
p3
p4
p3
p3
p3
p3
�212
famille
Nom scientifique
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES INVÉRTÉBRÉS (suite)
Porifères Desmospongia - Éponges (suite)
Spirastrellidae
Spirastrella coccinea (Duchassaing & Michelotti, 1864)
Spirastrella hartmani Boury-Esnault, Klautau, Bézac, Wulff & Solé-Cava, 1999
Spirastrella mollis Verrill, 1907
Spongiidae
Hippospongia gossypina (Duchassaing & Michelotti, 1864)
Hyattella cavernosa (Pallas, 1766)
Spongia (Spongia) cookii Hyatt, 1877
Spongia (Spongia) graminea Hyatt, 1877
Spongia (Spongia) obscura Hyatt, 1877
Spongia (Spongia) tubulifera Lamarck, 1814
Suberitidae
Aaptos Gray, 1867
Aaptos pernucleata (Carter, 1870)
Aaptos tuberculate
Tedaniidae
Tedania (Tedania) ignis (Duchassaing & Michelotti, 1864)
Tedania (Tedania) klausi Wulff, 2006
Tethyidae
Tectitethya crypta (de Laubenfels, 1949)
Cinachyrella alloclada (Uliczka, 1929)
Tetillidae
Cinachyrella apion (Uliczka, 1929)
Cinachyrella kuekenthali (Uliczka, 1929)
Theneidae
Thenea fenestrata (Schmidt, 1880)
Thorectidae
Hyrtios cavernosus (Vacelet, Vasseur & Lévi, 1976)
Hyrtios violaceus (Duchassaing & Michelotti, 1864)
Smenospongia aurea (Hyatt, 1875)
Smenospongia conulosa Pulitzer-Finali, 1986
Porifères Calcarea - Éponges
Leucettidae
Leucetta floridana (Haeckel, 1872)
Leucetta primigenia Haeckel, 1872
Porifères Homoscleromorpha- Éponges
Plakinidae
Plakinastrella onkodes Uliczka, 1929
Plakortis angulospiculatus (Carter, 1879)
Plakortis halichondrioides (Wilson, 1902)
Cnidaires
Coraux durs (Scleractinia)
Acroporidae
Acropora cervicornis (Lamarck, 1816)
Acropora muricata (Linnaeus, 1758)
Acropora palmata (Lamarck, 1816)
Acropora prolifera (Lamarck, 1816)
Agariciidae
Agaricia agaricites (Linnaeus, 1758)
Agaricia fragilis Dana, 1848
Agaricia humilis Verrill, 1902
Agaricia lamarcki Milne Edwards & Haime, 1851
Agaricia tenuifolia Dana, 1846
Agaricia undata (Ellis & Solander, 1786)
Helioseris cucullata (Ellis & Solander, 1786)
Leptoseris cailleti (Duchassaing & Michelotti, 1864)
Astrocoeniidae
Stephanocoenia intersepta (Esper, 1795)
Caryophylliidae
Caryophyllia (Caryophyllia) ambrosia Alcock, 1898
Caryophyllia (Caryophyllia) ambrosia caribbeana Cairns, 1979
Caryophyllia (Caryophyllia) antillarum Pourtalès, 1874
Cladocora arbuscula (Le Sueur, 1820)
Dasmosmilia variegata (Pourtalès, 1871)
Paracyathus pulchellus (Philippi, 1842)
AphiaID
Alph3
FB-SLB
170705
170709
170712
165107
165122
165175
165189
165218
165244
132064
170741
2016
2016
0
0
0
Éponge-balle orange
169565
234206
170927
171291
171294
171308
170294
165346
165359
184445
165392
DMO
DMO
DMO
SPO
SPO
QGX
QGG
QGX
QGT
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
DMO
ZTH
DMO
DMO
DMO
DMO
0
2016
2016
2016
2016
2016
2006b,c
2016
0
2006
2016
0
0
2016
2016
2016
0
Éponge calcaire
éponge calcaire
174278
164760
PFR
PFR
Plakortis
169757
169759
169763
206989
207007
288227
288235
287911
287912
287914
287915
287916
287917
290083
288718
291119
135135
286726
286727
286778
135153
135163
Pink and red encrusting sponge (En)
Éponge encroutante
Éponge de velours
Éponge-gant
Grass sponge (En)
Reef sponge (En)
Fire sponge (En)
éponge-balle orange
Corail Corne de Cerf
Corail branchu
Corail Corne d'Élan
Corne de cerf diffuse
Corail laitue
Agarice fragile
Agarice
Agarice de Lamarck
Thin leaf lettuce coral (En)
Scroll coral (En)
Corail laitue rayon de soleil
Corail laitue en dentelle
Corail étoile rougissant
Corail arbuscule
Corail coupe papilleuse
FAO
OBIS
GBIF
0
0
2010
0
0
0
0
0
0
0
0
2010
1859
1
1
1
0
0
0
0
0
0
2010
0
0
2010
0
0
0
0
2010
0
0
2010
0
0
2010
1878
0
0
0
2010
0
0
2010
2010
2010
0
PFR
PFR
PFR
2016
2006b,c
0
0
0
2010
0
0
2010
CSS
KQM
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
2000
0
2000
2000
2006b,c
2006b
2016
2006b
2006b
2013
2006b
2010
2006b,c
2010
1
0
2000
0
2012
1962
0
0
0
0
0
0
0
0
0
0
1
0
1963
1
1
0
1
0
1
1
1
1
1859
0
0
0
0
0
0
0
1
1963
0
1
0
0
0
Pplt
p4
p3
p3
p1
p3
p3
p3
p10
p1
p6
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
�213
famille
Nom scientifique
Cnidaires (suite)
Coraux durs (Scleractinia) (suite)
Caryophylliidae (suite)
Phyllangia americana Milne Edwards & Haime, 1849
Polycyathus mayae Cairns, 2000
Rhizosmilia maculata (Pourtalès, 1874)
Stephanocyathus (Odontocyathus) coronatus (Pourtalès, 1867)
Stephanocyathus (Stephanocyathus) diadema (Moseley, 1876)
Stephanocyathus (Stephanocyathus) laevifundus Cairns, 1977
Tethocyathus recurvatus (Pourtalès, 1878)
Trochocyathus (Trochocyathus) rawsonii Pourtalès, 1874
Deltocyathidae
Deltocyathus agassizi Pourtalès, 1867
Deltocyathus italicus (Michelotti, 1838)
Dendrophylliidae
Cladopsammia Lacaze-Duthiers, 1897
Enallopsammia rostrata (Pourtalès, 1878)
Tubastraea coccinea Lesson, 1830
Faviidae
Colpophyllia breviserialis Milne Edwards & Haime, 1849
Colpophyllia natans (Houttuyn, 1772)
Diploria labyrinthiformis (Linnaeus, 1758)
Favia fragum (Esper, 1795)
Isophyllia rigida (Dana, 1846)
Isophyllia sinuosa (Ellis & Solander, 1786)
Manicina areolata (Linnaeus, 1758)
Mussa angulosa (Pallas, 1766)
Mycetophyllia aliciae Wells, 1973
Mycetophyllia danaana Milne Edwards & Haime, 1849
Mycetophyllia ferox Wells, 1973
Mycetophyllia lamarckiana Milne Edwards & Haime, 1849
Mycetophyllia reesi Wells, 1973
Pseudodiploria clivosa (Ellis & Solander, 1786)
Pseudodiploria strigosa (Dana, 1846)
Scolymia cubensis (Milne Edwards & Haime, 1848) incertae sedis
Scolymia lacera (Pallas, 1766)
Solenastrea bournoni Milne Edwards & Haime, 1849 incertae sedis
Solenastrea hyades (Dana, 1846)
Flabellidae
Javania cailleti (Duchassaing & Michelotti, 1864)
Fungiacyathidae
Fungiacyathus (Bathyactis) marenzelleri (Vaughan, 1906)
Meandrinidae
Dendrogyra cylindrus (Ehrenberg, 1834)
Dichocoenia stokesii (Milne Edwards & Haime, 1849)
Eusmilia fastigiata (Pallas, 1766)
Meandrina jacksoni Weil & Pinzón, 2011
Meandrina mammosa Dana, 1846
Meandrina meandrites (Linnaeus, 1758)
Merulinidae
Favites abdita (Ellis & Solander, 1786) *
Orbicella annularis (Ellis & Solander, 1786)
Orbicella faveolata (Ellis & Solander, 1786)
Orbicella franksi (Gregory, 1895)
Montastraeidae
Montastraea cavernosa (Linnaeus, 1767)
Oculinidae
Madrepora carolina (Pourtalès, 1871)
Madrepora oculata Linnaeus, 1758
Oculina diffusa Lamarck, 1816
Oculina valenciennesi Milne Edwards & Haime, 1850
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES INVÉRTÉBRÉS (suite)
Phyllange américaine
Cauliflower En)
Corail ramifié profond
Tubastrée orange
Corail-cerveau géant
Corail cerveau de Neptune
Corail balle de golf
Corail étoile rugueux
Corail cactus sinueux
Corail rose
Corail fleur épineux
Corail cactus rugueux
Corail cactus à crêtes basses
Corail cactus rugueux
Corail cactus ride
Corail cactus à bulbes
Corail cerveau bosselé
Corail cerveau symétrique
Corail cœur d'artichaut
Corail champignon de l'Atlantique
Smooth star coral (En)
Corail noueux
Corail Cierge
Corail étoilé elliptique
Corail fleur doux
Corail méandreux
Corail méandreux
Grand Corail étoile
Corail étoilé lobé
Corail étoile massif
Corail étoile en bloc
Grand Corail étoile
Pourtalès fan coral (En)
Corail en zigzag
Oculine diffuse
ivory tree coral (En)
AphiaID
Alph3
FB-SLB
346430
286842
290974
286851
286852
286855
286865
286893
286789
135156
135109
135190
291251
289696
289697
289826
207432
287850
216134
290327
216135
290424
290425
290426
290427
290428
828326
718718
287852
287853
291054
291055
135198
135205
418865
289807
289939
742401
1383388
289232
207449
758260
758261
758262
287962
287092
135209
287097
287101
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
FEY
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
MVI
CSS
CSS
FAO
OBIS
GBIF
Pplt
2016
0
0
2007
2007
2007
0
0
0
2012
2016
1
2016
2006b
2006b,c
2006b,c
2000
2000
2000
2000
2000
2000
2006b
2000
2000
2000
0
2006b,c
2000
2016
0
0
0
0
2006b
2000
2006b
2016
0
0
1970
1970
1970
1970
1988
1
1988
1970
0
0
1970
1970
1970
1970
1988
1
1988
1970
p3
p3
p3
p3
p3
p3
p3
p3
p3
1970
0
0
0
0
1
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1970
0
0
0
0
0
2000
0
2006bc
2006b
2006b
2006b,c
0
1
0
2000
0
0
0
0
0
0
0
1970
0
0
1970
0
0
1
1
1859
0
0
1859
0
0
0
0
0
0
1859
1859
0
0
1
1
1970
1958
1
1
1
0
1829
1
1858
1858
0
0
1
1
1970
1946
0
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
�214
famille
Nom scientifique
nom vernaculaire français
nom créole Haïtien
LA FAUNE MARINE – LES INVÉRTÉBRÉS (suite)
Cnidaires (suite)
Coraux durs (Scleractinia) (suite)
Pocilloporidae
Madracis auretenra Locke, Weil & Coates, 2007
Madracis carmabi Vermeij, Diekmann & Bak, 2003
Madracis decactis (Lyman, 1859)
Madracis formosa Wells, 1973
Madracis myriaster (Milne Edwards & Haime, 1850)
Madracis pharensis (Heller, 1868)
Madracis senaria Wells, 1973
Poritidae
Porites astreoides Lamarck, 1816
Porites branneri Rathbun, 1888
Porites divaricata Le Sueur, 1820
Porites furcata Lamarck, 1816
Poritidae (suite)
Porites nodifera Klunzinger, 1879
Porites porites (Pallas, 1766)
Rhizangiidae
Astrangia solitaria (Le Sueur, 1818)
Siderastreidae
Siderastrea radians (Pallas, 1766)
Siderastrea siderea (Ellis & Solander, 1786)
Siderastrea stellata Verrill, 1868
Stenocyathidae
Stenocyathus vermiformis (Pourtalès, 1868)
Algues vertes
Anadyomenaceae
Boodleaceae
Bryopsidaceae
Caulerpaceae
Characeae
Cladophoraceae
Anadyomene lacerata D.S.Littler & M.M.Littler, 1991
Anadyomene saldanhae A.B.Joly & E.C.Oliveira, 1969
Anadyomene stellata (Wulfen) C.Agardh, 1823
Microdictyon umbilicatum (Velley) Zanardini, 1862
Cladophoropsis membranacea (Hofman Bang ex C.Agardh) Børgesen, 1905
Bryopsis halliae W.R.Taylor, 1962
Bryopsis pennata J.V.Lamouroux, 1809
Caulerpa chemnitzia (Esper) J.V.Lamouroux, 1809
Caulerpa cupressoides (Vahl) C.Agardh, 1817
Caulerpa cupressoides var. lycopodium Weber Bosse, 1898
Caulerpa cupressoides var. mamillosa (Montagne) Weber-van Bosse, 1898
Caulerpa fastigiata Montagne, 1837
Caulerpa mexicana Sonder ex Kützing, 1849
Caulerpa microphysa (Weber Bosse) Feldmann, 1955
Caulerpa racemosa (Forsskål) J.Agardh, 1873
Caulerpa sertularioides (S.G.Gmelin) M.Howe, 1905
Caulerpa verticillata J.Agardh, 1847
Chara hornemannii J.Wallman, 1853
Chaetomorpha aerea (Dillwyn) Kützing, 1849
Chaetomorpha antennina (Bory) Kützing, 1847
Chaetomorpha brachygona Harvey, 1858
Chaetomorpha clavata Kützing, 1847
Chaetomorpha gracilis Kützing, 1845
Chaetomorpha linum (O.F.Müller) Kützing, 1845
Cladophora catenata Kützing, 1843
Cladophora crispula Vickers, 1905
Cladophora dalmatica Kützing, 1843
Cladophora fracta (O.F.Müller ex Vahl) Kützing, 1843
Cladophora fuliginosa Kützing, 1849
Cladophora glomerata (Linnaeus) Kützing, 1843
Madrace jaune
Madrace à dix rayons
Madrace profond
Madrace jaune
Madrace étoile
Corail crayon jaune
Porite étoile
Porite mauve
Porite digitée
Porite digitée
Corail dôme poreux
Porite digitée
Corail nain
Petit corail starlette
Corail starlette massif
Worm coral (En)
LA FLORE MARINE
Papyrus print alga (En)
Flattop seagrape (En)
Toothed stolon (En)
Mexican seaweed (En)
Grape caulerpa (En)
Green sea feather (En)
Floating chaetomorpha (En)
AphiaID
Alph3
FB-SLB
430664
287106
287107
287108
287111
135212
287112
288889
288892
411268
288902
207224
207238
287125
207517
207516
430680
135208
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
CSS
373222
145011
145012
145017
145875
373253
144456
700395
144467
381810
381807
211471
144468
211489
144472
144474
211483
623885
145020
145021
157103
214376
145024
145027
1313157
373235
145042
145046
660377
145048
SWG
SWG
UYH
SWG
SWG
SWG
SWG
CAU
KQC
KQC
KQC
CAU
CAU
CAU
KQR
KQT
CAU
SWG
KMW
SWG
SWG
SWG
SWG
KMH
SWG
SWG
SWG
SWG
SWG
SWG
FAO
OBIS
GBIF
Pplt
2008
2010
2000
2000
2006b
2016
2000
2006b,c
2013
2000
2000
0
,c
2012
2000
2000
2000
0
0
0
0
0
1970
0
0
0
0
0
0
0
0
1
0
0
0
0
0
0
1
0
1970
0
0
1
0
0
1942
1
1
1863
1
2018
0
1867
p3
p3
p3
p3
p3
0
2006b
0
0
0
0
0
0
0
1929
1981
1929
1981
1929
1929
1941
1929
1925
1
1
1929
1937
1981
1927
1926
1929
2019
1929
1929
1926
1929
1929
1927
1929
1929
1941
1929
1937
1917
0
0
2006b,c
0
0
0
2006b
2006c
2006b
0
0
0
0
0
0
0
0
1993
1993
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
p3
p3
p3
p3
p3
p3
p3
p3
p3
p3
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
�215
famille
Nom scientifique
nom vernaculaire français
LA FLORE MARINE (suite)
Algues vertes (suite)
Cladophoraceae (suite
Cladophora glomerata var. crassior (C.Agardh) C.Hoek, 1963
Cladophora lehmanniana (Lindenberg) Kützing, 1843
Cladophora sericea (Hudson) Kützing, 1843
)
Cladophora socialis Kützing, 1849
Cladophora submarina P.Crouan & H.Crouan, 1865
Cladophora vagabunda P.Crouan & H.Crouan, 1865
Willeella brachyclados (Montagne) M.J.Wynne, 2016
Codiaceae
Codium dichotomum S.F.Gray, 1821
Codium intertextum Collins & Hervey, 1917
Codium isthmocladum Vickers, 1905
Codium repens P.Crouan & H.Crouan, 1905
Dasycladaceae
Batophora occidentalis (Harvey) S.Berger & Kaever ex M.J.Wynne, 1998
Batophora oerstedi J.Agardh, 1854
Dasycladus vermicularis (Scopoli) Krasser, 1898
Neomeris annulata Dickie, 1874
Dichotomosiphonaceae
Avrainvillea digitata D.S.Littler & M.M.Littler, 1992
Dichotomosiphonaceae (suite) Avrainvillea levis M.A.Howe, 1905
Avrainvillea rawsonii (Dickie) M.A.Howe, 1907
Halimedaceae
Halimeda discoidea Decaisne, 1842
Halimeda goreaui W.R.Taylor, 1962
Halimeda gracilis Harvey ex J.Agardh, 1887
Halimeda incrassata (J.Ellis) J.V.Lamouroux, 1816
Halimeda monile (J.Ellis & Solander) J.V.Lamouroux, 1816
Halimeda opuntia (Linnaeus) J.V.Lamouroux, 1816
Halimeda simulans M.A.Howe, 1907
Halimeda tuna (J.Ellis & Solander) J.V.Lamouroux, 1816
Polyphysaceae
Acetabularia crenulata J.V.Lamouroux, 1816
Siphonocladaceae
Chamaedoris peniculum (J.Ellis & Solander) Kuntze, 1898
Dictyosphaeria cavernosa (Forsskål) Børgesen, 1932
Dictyosphaeria ocellata (M.A.Howe) Olsen-Stojkovich, 1985
Ernodesmis verticillata (Kützing) Børgesen, 1912
Udoteaceae
Penicillus capitatus Lamarck, 1813
Penicillus dumetosus (J.V.Lamouroux) Blainville, 1830
Penicillus pyriformis A.Gepp & E.S.Gepp, 1905
Rhipocephalus phoenix (J.Ellis & Solander) Kützing, 1843
Udotea cyathiformis Decaisne, 1842
Udotea dixonii D.S.Littler & Littler, 1990
Udotea dotyi D.S.Littler & M.M.Littler, 1990
Udotea fibrosa D.S.Littler & M.M.Littler, 1990
Udotea flabellum (J.Ellis & Solander) M.Howe, 1904
Ulvaceae
Ulva clathrata (Roth) C.Agardh, 1811
Ulva fenestrata Postels & Ruprecht, 1840
Ulva flexuosa Wulfen, 1803
Ulva flexuosa subsp. paradoxa (C.Agardh) M.J.Wynne, 2005
Ulva lactuca Linnaeus, 1753
Ulva prolifera O.F.Müller, 1778
Ulva rigida C.Agardh, 1823
Ulvellaceae
Ulvella scutata (Reinke) R.Nielsen, C.J.O'Kelly & B.Wysor, 2013
Ulvella udoteae (Borgesen) R.Nielsen, C.J.O'Kelly & B.Wysor, 2013
Valoniaceae
Valonia aegagropila C.Agardh, 1823
Valonia macrophysa Kützing, 1843
Dead man's fingers (En)
Caterpillar weed (En)
Coralline alga (En)
Prostrate sea cactus (En)
Sea cactus
Mermaid's wine glass (En)
Algue à bulles
Entéromorphe vert claire
Laitue de mer
Winding nori (En)
Laitue de mer
Branched string lettuce (En)
Chicory sea lettuce (En)
Green sea vesicles (En)
Elongated sea pearls (En)
nom créole Haïtien
AphiaID
Alph3
550739
145052
145065
145067
373243
145070
1307176
239147
145088
373715
145090
146247
145299
145301
211533
373270
373275
221171
144481
373716
211529
211519
373717
144482
211527
144483
494919
373250
214395
145879
145880
144484
373286
373288
373295
373300
373301
373302
373303
211535
156078
211462
234468
382510
145984
234476
145990
732330
732331
145881
145883
SWG
SWG
SWG
SWG
SWG
SWG
SWG
SWG
SWG
SWG
KIE
SWG
SWG
SWG
SWG
SWG
SWG
SWG
SWG
SWG
SWG
SWG
SWG
SWG
HMW
SWG
SWG
UYH
SWG
SWG
SWG
SWG
SWG
SWG
SWG
SWG
SWG
SWG
SWG
EOW
UYH
EBL
UYH
UVU
UYH
UVQ
SWG
SWG
SWG
SWG
FB-SLB
FAO
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
2010
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
2006b,c
0
0
0
0
2006b
0
2006c
2006b,c
2006b,c
0
2006b
2006b
2006b,c
0
0
2006c
2006c
2006b,c
2006b,c
2006b
2006b,c
0
0
0
1993
0
0
0
0
0
OBIS
1993
0
0
0
0
0
0
0
0
0
0
0
GBIF
1
1929
1929
1941
1941
1926
1909
1933
1929
1929
1998
0
1917
1929
0
1929
1941
1929
1981
1981
1981
1925
1925
1927
1929
1927
1926
1927
1926
1929
1929
1929
1927
1927
1929
1981
1981
1981
0
1927
1929
1929
1904
1
1929
1929
1929
1927
1927
1927
1929
Pplt
p1
p1
p1
p1
p1
p3
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
�216
famille
Algues vertes (suite)
Valoniaceae (suite)
Algues rouges
Ahnfeltiaceae
Callithamniaceae
Ceramiaceae
Champiaceae
Compsopogonaceae
Corallinaceae
Cystocloniaceae
Dasyaceae
Delesseriaceae
Galaxauraceae
Gelidiaceae
Gelidiellaceae
Gigartinaceae
Gracilariaceae
Nom scientifique
nom vernaculaire français
LA FLORE MARINE (suite)
Valonia ventricosa J.Agardh, 1887
Valoniopsis pachynema (G.Martens) Børgesen, 1934
Ahnfeltia plicata (Hudson) Fries, 1836
Crouania elisiae C.W.Schneider, 2004
Centroceras clavulatum (C.Agardh) Montagne, 1846
Ceramium cimbricum H.E.Petersen, 1924
Ceramium cruciatum Collins & Hervey, 1917
Ceramium nitens (C.Agardh) J.Agardh, 1851
Ceramium sinicola Setchell & Gardner, 1924
Ceramium subtile J.Agardh, 1851
Dohrniella antillara (W.R.Taylor) Feldmann-Mazoyer, 1941
Gayliella transversalis (F.S.Collins & Hervey) T.O.Cho & Fredericq, 2008
Haloplegma duperreyi Montagne, 1842
Champia parvula (C.Agardh) Harvey, 1853
Coelothrix irregularis (Harvey) Børgesen, 1920
Compsopogon Montagne, 1846
Corallina officinalis Linnaeus, 1758
Jania adhaerens J.V.Lamouroux, 1816
Jania capillacea Harvey, 1853
Jania cubensis Montagne ex Kützing, 1849
Jania pumila J.V.Lamouroux, 1816
Jania rosea (Lamarck) Decaisne, 1842
Jania rubens (Linnaeus) J.V.Lamouroux, 1816
Jania subulata (Ellis & Solander) Sonder, 1848
Hypnea cervicornis J.Agardh, 1851
Hypnea cornuta (Kützing) J.Agardh, 1851
Hypnea musciformis (Wulfen) J.V.Lamouroux, 1813
Hypnea spinella (C.Agardh) Kützing, 1847
Dasya corymbifera J.Agardh, 1841
Dasya haitiana S.Fredericq & J.N.Norris, 1986
Heterosiphonia crispella (C.Agardh) M.J.Wynne, 1985
Caloglossa leprieurii (Montagne) J.Agardh, 1876
Hypoglossum heterocystideum (J.Agardh) J.Agardh, 1898
Martensia pavonia (J.Agardh) J.Agardh, 1863
Dichotomaria marginata (J.Ellis & Solander) Lamarck, 1816
Dichotomaria obtusata (J.Ellis & Solander) Lamarck, 1816
Galaxaura rugosa (J.Ellis & Solander) J.V.Lamouroux, 1816
Tricleocarpa cylindrica (J.Ellis & Solander) Huisman & Borowitzka, 1990
Tricleocarpa fragilis (Linnaeus) Huisman & R.A.Townsend, 1993
Gelidium crinale (Hare ex Turner) Gaillon, 1828
Gelidiella acerosa (Forsskål) Feldmann & Hamel, 1934
Chondracanthus acicularis (Roth) Fredericq, 1993
Chondracanthus saundersii C.W.Schneider & C.E.Lane, 2005
Crassiphycus caudatus (J.Agardh) Gurgel, J.N.Norris & Fredericq, 2018
Crassiphycus corneus (J.Agardh) Gurgel, J.N.Norris & Fredericq, 2018
Crassiphycus crassissimus (P.Crouan & H.Crouan) Gurgel, J.N.Norris & Fredericq,
2018
Gracilaria blodgettii Harvey, 1853
Gracilaria cervicornis (Turner) J.Agardh, 1852
Gracilaria damicornis J.Agardh, 1852
Gracilaria debilis (Forsskål) Børgesen, 1932
AphiaID
Alph3
FB-SLB
Sailor's eyeball (En)
211680
211673
SWG
SWG
Fil de fer
144422
376535
144531
144538
371474
373059
372786
373060
371339
377237
214429
145804
145846
144002
145108
145123
145124
374121
145129
375194
145130
495068
220819
145630
145634
145635
144716
503584
144731
669440
371595
373895
376807
376874
145739
145744
145745
145580
145567
145623
362142
1327787
1327788
1340376
HFH
SWR
KNW
SWR
SWR
KMQ
SWR
SWR
SWR
SWR
SWR
SWR
SWR
SWR
SWR
JNA
SWR
SWR
SWR
SWR
JNR
SWR
SWR
YNQ
YNF
YAH
SWR
SWR
SWR
SWR
SWR
SWR
SWR
SWR
SWR
SWR
SWR
GJC
GJO
GJA
GHG
GLS
GLS
GLS
211566
145694
372996
211564
GLS
GLS
GLS
GLS
Red panache (En)
Barrel weed (En)
Pacific coral moss (En)
Fine coral moss
Hooked weed (En)
Menue paille marine
nom créole Haïtien
FAO
OBIS
GBIF
Pplt
2006b,c
0
0
0
1929
1929
p1
p1
0
0
p1
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1
1927
1903
1929
1929
1927
1926
1926
1927
1927
1998
1903
1926
1
1
1927
1929
1929
1929
1940
1929
1929
1929
1929
1925
1929
1929
1981
1927
1903
1998
1981
1926
1929
1914
1929
1906
1927
1927
1941
1941
1941
1925
1929
1
0
0
0
0
0
0
0
0
0
.
0
0
0
0
0
1993
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
2006b
0
2006b
0
2004
0
0
0
0
0
0
0
0
0
1993
1993
0
0
0
1993
0
0
0
0
0
0
1926
1927
1929
1925
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p4
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
�217
famille
Algues rouges (suite)
Gracilariaceae (suite)
Halymeniaceae
Hapalidiaceae
Hydrolithaceae
Liagoraceae
Lithophyllaceae
Lomentariaceae
Mastoporaceae
Mesophyllaceae
Peyssonneliaceae
Phyllophoraceae
Porolithaceae
Pterocladiaceae
Rhizophyllidaceae
Rhodomelaceae
Nom scientifique
Gracilaria domingensis (Kützing) Sonder ex Dickie, 1874
Gracilaria foliifera (Forsskål) Børgesen, 1932
Gracilaria gracilis (Stackhouse) Steentoft, L.M.Irvine & Farnham, 1995
Gracilaria isabellana Gurgel, Fredericq & J.N.Norris, 2004
Gracilaria longissima (S.G.Gmelin) Steentoft, L.M.Irvine & Farnham, 1995
Gracilaria mammillaris (Montagne) M.Howe, 1918
Gracilaria ornata J.E. Areschoug, 1854
Gracilariopsis andersonii (Grunow) E.Y.Dawson, 1949
Gracilariopsis longissima (S.G.Gmelin) Steentoft, L.M.Irvine & Farnham, 1995
Gracilariopsis sjoestedtii (Kylin) E.Y.Dawson, 1949
Gracilariopsis tenuifrons (C.J.Bird & E.C.Oliveira) Fredericq & Hommersand, 1989
Cryptonemia crenulata (J.Agardh) J.Agardh, 1851
Cryptonemia seminervis (C.Agardh) J.Agardh, 1846
Grateloupia filicina (J.V.Lamouroux) C.Agardh, 1822
Grateloupia filiformis Kützing, 1849
Halymenia floresii (Clemente) C.Agardh, 1817
Halymenia pseudofloresii Collins & M.Howe, 1916
Melobesia membranacea (Esper) J.V.Lamouroux, 1812
Hydrolithon boergesenii (Foslie) Foslie, 1909
Hydrolithon farinosum (J.V.Lamouroux) Penrose & Y.M.Chamberlain, 1993
Ganonema farinosum (J.V.Lamouroux) K.C.Fan & Yung C.Wang, 1974
Liagora ceranoides J.V.Lamouroux, 1816
Titanophycus validus (Harvey) Huisman, G.W.Saunders & A.R.Sherwood, 2006
Trichogloeopsis pedicellata (Howe) I.A.Abbott & Doty, 1960
Amphiroa beauvoisii J.V.Lamouroux, 1816
Amphiroa fragilissima (Linnaeus) J.V.Lamouroux, 1816
Amphiroa hancockii W.R.Taylor, 1942
Amphiroa rigida J.V.Lamouroux, 1816
Amphiroa tribulus (J.Ellis & Solander) J.V.Lamouroux, 1816
Goniolithon decutescens (Heydrich) Foslie ex M.A.Howe, 1918
Titanoderma pustulatum (J.V.Lamouroux) Nägeli, 1858
Ceratodictyon planicaule (W.R.Taylor) M.J.Wynne, 2011
Pneophyllum fragile Kützing, 1843
Mesophyllum mesomorphum (Foslie) W.H.Adey, 1970
Peyssonnelia dubyi P.Crouan & H.Crouan, 1844
Peyssonnelia rubra (Greville) J.Agardh, 1851
Gymnogongrus tenuis J.Agardh, 1849
Porolithon antillarum (Foslie & M.Howe) Foslie & M.Howe, 1909
Pterocladiella bartlettii (W.R.Taylor) Santelices, 1998
Pterocladiella caerulescens (Kützing) Santelices & Hommersand, 1997
Pterocladiella capillacea (S.G.Gmelin) Santelices & Hommersand, 1997
Ochtodes secundiramea (Montagne) M.A.Howe, 1920
Acanthophora muscoides (Linnaeus) Bory de Saint-Vincent, 1828
Acanthophora spicifera (M.Vahl) Børgesen, 1910
Alsidium seaforthii (Turner) J.Agardh, 1841
Alsidium triquetrum (S.G.Gmelin) Trevisan, 1845
Amansia multifida J.V.Lamouroux, 1809
Bostrychia binderi Harvey, 1849
Bostrychia moritziana (Sonder ex Kützing) J.Agardh, 1863
Bostrychia radicans (Montagne) Montagne, 1842
Bostrychia tenella (J.V.Lamouroux) J.Agardh, 1863
nom vernaculaire français
LA FLORE MARINE (suite)
Graceful red weed (En)
Gracilaire commune
Slimy liagora (En)
Flat twig alga (En)
Crustose red alga (En)
Spanish agar (En
Purple spiny sea moss (En)
Erect sea moss (En)
nom créole Haïtien
AphiaID
Alph3
372998
145699
145700
377164
145703
372321
373004
373885
146960
498082
373009
145238
145241
145248
372981
371111
372990
145182
372893
145118
145749
145756
526681
145766
145097
145099
372911
145100
211627
372914
145216
624719
145206
213902
145278
145287
145659
372915
376241
374576
145599
372964
146357
211768
650758
654275
213668
211502
211500
157313
211501
GLS
GLS
GZG
GLS
GLS
GLS
GLS
GLS
GJW
GLS
GLS
SWR
SWR
SWR
GLS
SWR
SWR
LIT
SWR
SWR
SWR
SWR
SWR
SWR
SWR
SWR
SWR
SWR
SWR
SWR
SWR
SWR
SWR
LIT
SWR
SWR
YGJ
SWR
SWR
GEL
OKQ
SWR
SWR
KHI
SWR
SWR
SWR
SWR
SWR
SWR
SWR
FB-SLB
FAO
OBIS
GBIF
Pplt
1993
0
0
0
0
1929
1941
1941
1927
1941
1941
1981
1
1941
1929
1
1981
1929
1929
1941
1929
1929
1929
1929
1929
1927
1929
1929
1981
1981
1928
1929
1928
1928
1941
1927
1941
1929
1998
1941
1929
1929
0
1929
1941
1941
1926
1925
1925
1941
1927
1941
1941
1929
1903
1903
p1
0
0
0
0
1993
1993
0
0
0
0
0
0
0
0
0
1993
0
0
2006b
0
0
0
2006b
0
0
2006b
0
0
0
0
1993
2006b
0
0
0
2006b
0
0
1993
1993
1993
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
�218
famille
Algues rouges (suite)
Rhodomelaceae (suite)
Scinaiaceae
Solieriaceae
Spongitaceae
Spyridiaceae
Stylonemataceae
Wrangeliaceae
Algues brunes
Acinetosporaceae
Chordariaceae
Dictyotaceae
Nom scientifique
Chondria atropurpurea Harvey, 1853
Chondria capillaris (Hudson) M.J.Wynne, 1991
Chondria littoralis Harvey, 1853
Chondria sedifolia Harvey, 1853
Digenea simplex (Wulfen) C.Agardh, 1822
Laurencia intricata J.V.Lamouroux, 1813
Laurencia microcladia Kützing, 1865
Laurencia obtusa (Hudson) J.V.Lamouroux, 1813
Leptosiphonia fibrata (C.Agardh) A.M.Savoie & G.W.Saunders, 2019
Lophosiphonia obscura (C.Agardh) Falkenberg, 1897
Melanothamnus ferulaceus (Suhr ex J.Agardh) Díaz-Tapia & Maggs, 2017
Palisada corallopsis (Montagne) Sentíes, Fujii & Díaz-Larrea, 2008
Palisada perforata (Bory) K.W.Nam, 2007
Polysiphonia havanensis Montagne, 1837
Yuzurua poiteaui (J.V.Lamouroux) Martin-Lescanne, 2010
Scinaia caribaea (W.R.Taylor) Huisman, 1985
Agardhiella subulata (C.Agardh) Kraft & M.J.Wynne, 1979
Eucheumatopsis isiformis (C.Agardh) Núñez-Resendiz, Dreckmann & Sentíes,
2019
Solieria filiformis (Kützing) P.W.Gabrielson, 1985
Wurdemannia miniata (Sprengel) Feldmann & Hamel, 1934
Neogoniolithon caribaeum (Foslie) W.H.Adey, 1970
Neogoniolithon fosliei (Heydrich) Setchell & L.R.Mason, 1943
Spyridia clavata Kützing, 1841
Spyridia filamentosa (Wulfen) Harvey, 1833
Spyridia hypnoides (Bory de Saint-Vincent) Papenfuss, 1968
Bangiopsis dumontioides (P.Crouan & H.Crouan) V.Krishnmurthy, 1957
Bangiopsis subsimplex (Montagne) F.Schmitz, 1896
Chroodactylon ornatum (C.Agardh) Basson, 1979
Tiffaniella gorgonea (Montagne) Doty & Meñez, 1960
Wrangelia bicuspidata Børgesen, 1916
Feldmannia mitchelliae (Harvey) H.-S.Kim, 2010
Cladosiphon occidentalis Kylin, 1940
Canistrocarpus cervicornis (Kützing) De Paula & De Clerck, 2006
Dictyopteris delicatula J.V.Lamouroux, 1809
Dictyopteris jolyana E.C.Oliveira & R.P.Furtado, 1978
Dictyopteris justii J.V.Lamouroux, 1809
Dictyopteris plagiogramma (Montagne) Vickers, 1905
Dictyota bartayresiana J.V.Lamouroux, 1809
Dictyota ciliolata Sonder ex Kützing, 1859
Dictyota dichotoma (Hudson) J.V.Lamouroux, 1809
Dictyota guineënsis (Kützing) P.Crouan & H.Crouan, 1878
Dictyota implexa (Desfontaines) J.V.Lamouroux, 1809
Dictyota mertensii (C.Martius) Kützing, 1859
Dictyota pulchella Hörnig & Schnetter, 1988
Lobophora variegata (J.V.Lamouroux) Womersley ex E.C.Oliveira, 1977
Padina boergesenii Allender & Kraft, 1983
Padina gymnospora (Kützing) Sonder, 1871
Padina sanctae-crucis Børgesen, 1914
Stypopodium zonale (J.V.Lamouroux) Papenfuss, 1940
nom vernaculaire français
LA FLORE MARINE (suite)
Plumet de Nérée
Blunt laurenzia (En)
Laurencia poivrée
Agardh's red weed (En)
Hairy Basket Weed (En)
Forded sea tumbleweeds (En)
Leathery lobeweeds (En)
Funnelweed (En)
Peacock's tail (En)
Leafy flat-blade alga (En)
nom créole Haïtien
AphiaID
Alph3
FB-SLB
373118
144795
373122
371059
144808
144823
144825
144827
1333554
146367
1359482
526638
495580
144643
526642
145741
145677
1356578
SWR
SWR
SWR
SWR
DGM
LVB
SWR
LVB
SWR
SWR
SWR
SWR
LVB
SWR
SWR
SWR
SWR
UKI
232604
145684
145192
239328
371535
144706
144707
416964
494812
145685
144710
214147
OKF
GEL
SWR
SWR
SWR
SWR
SWR
SWR
SWR
SWR
SWR
SWR
0
0
699648
144915
377141
145357
373185
373186
145359
145363
145365
145367
494913
145371
145376
373189
145381
145382
145384
373195
145392
SWB
SWB
SWB
SWB
SWB
SWB
YKL
UYH
SWB
IYK
SWB
UCU
SWB
SWB
SWB
SWB
SWB
SWB
UCU
2013
0
0
0
FAO
0
0
0
0
0
0
0
0
0
0
0
0
1993
0
0
0
0
0
0
0
0
0
0
2006b
2006b
0
0
2006b
0
1993
OBIS
GBIF
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1829
1929
1927
1929
1927
1926
1929
1929
1941
1929
1929
1929
1929
1929
1981
1941
1941
1929
0
0
0
0
0
0
0
0
0
0
0
0
1929
1929
1929
1929
1929
1926
1929
1928
1929
1917
1941
1929
0
0
0
0
0
0
0
0
0
0
0
0
0
0
2010
0
0
0
0
0
1981
1927
1927
1998
1929
1941
1929
1929
1981
1929
1941
1929
1929
1929
1941
1933
1925
1929
Pplt
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
p1
�219
famille
Nom scientifique
nom vernaculaire français
LA FLORE MARINE (suite)
AphiaID
Alph3
547680
494799
494800
157202
373201
211957
145560
373203
494914
494915
373207
494801
550889
373209
221475
495552
145861
145866
145904
SWB
QWX
QWX
QWX
QWX
QWX
QWX
QWX
QWX
QWX
QWX
RGV
QWX
SWB
QWX
SWB
YDL
SWB
SWB
Engelmann's sea grass (En)
Grande Naïade
Herbe à tortue
potamot pectiné
Ruppie maritime
208923
208925
374715
145713
374722
416207
374720
588573
234031
APL
APL
APL
APL
APL
APL
APL
APL
APL
2013
0
2006b,c
0
0
Fougère des mangroves
235080
palétuvier noir
palétuvier gris
palétuvier gris
mangrove à boutons
palétuvier blanc
palétuvier rouge
235037
235043
235040
418734
235050
235094
Algues brunes (suite)
Dictyotaceae (suite)
Sargassaceae
Zonaria zonalis (Lamouroux) Howe
Sargassum cymosum C.Agardh, 1820
Sargassum filipendula C.Agardh, 1824
Sargassum fluitans (Børgesen) Børgesen, 1914
Sargassum hystrix J.Agardh, 1847
Sargassum lendigerum (Linnaeus) C.Agardh, 1820
Sargassum natans (Linnaeus) Gaillon, 1828
Sargassum platycarpum Montagne, 1842
Sargassum polyceratium Montagne, 1837
Sargassum pteropleuron Grunow, 1868
Sargassum ramifolium Kützing, 1861
Sargassum vulgare C.Agardh, 1820
Sargassum vulgare var. foliosissimum (J.V.Lamouroux) C.Agardh, 1820
Turbinaria tricostata E.S.Barton, 1891
Turbinaria turbinata (Linnaeus) Kuntze, 1898
Neoralfsiaceae
Neoralfsia expansa (J.Agardh) P.-E.Lim & H.Kawai ex Cormaci & G.Furnari, 2012
Scytosiphonaceae
Hydroclathrus clathratus (C.Agardh) M.A.Howe, 1920
Rosenvingea intricata (J.Agardh) Børgesen, 1914
Sphacelariaceae
Sphacelaria tribuloides Meneghini, 1840
Herbiers – classe des Magnolopsida
Cymodoceaceae
Halodule beaudettei (Hartog) Hartog, 1964
Cymodoceaceae
Halodule wrightii Ascherson, 1868
Syringodium filiforme Kützing, 1860
Hydrocharitaceae
Halophila decipiens Ostenfeld, 1902*
Hydrocharitaceae (suite)
Halophila engelmannii Ascherson, 1875*
Najas marina L.
Thalassia testudinum K.D.Koenig, 1805
Potamogetonaceae
Stuckenia pectinata (L.) Börner, 1912
Ruppiaceae
Ruppia maritima Linnaeus, 1753
Herbiers – classe des Polypodiopsida
Pteridaceae
Acrostichum aureum L.
Mangroves
Acanthaceae
Avicennia germinans (L.) L.
Avicennia schaueriana Stapf & Leechman ex Moldenke
Avicennia marina (Forssk.) Vierh.
Combretaceae
Conocarpus erectus Linnaeus, 1753
Laguncularia racemosa (L.) C.F. Gaertn.
Rhizophoraceae
Rhizophora mangle L.
Sargasso weed (En)
Gulf weed (En)
White-vein sargassum (En)
Common sargassum (En)
Hydroclathrus (En)
Herbe à lamentins
Shoal-grass (En)
Herbe à lamentins
nom créole Haïtien
FB-SLB
OBIS
GBIF
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1929
1927
1929
1941
1965
1927
1819
1927
1926
1929
1929
1929
1
1981
1903
1941
1963
0
1929
0
0
0
0
0
0
0
0
0
1925
1925
1925
0
0
1920
1928
1920
1920
p4
p4
p4
p4
p4
p4
p1
p4
APL
2016
0
1892
p1
APL
APL
APL
APL
APL
APL
0
2016
0
0
0
0
0
0
0
0
0
0
1828
0
1
1927
1901
1829
p1
p1
p1
p1
p1
p1
0
0
0
2006b
FAO
1
0
0
0
0
1
2006b
0
0
0
2006b
0
1
1
2006b,c
Pplt
p3
p1
p1
�220
ANNEXE II
Cartographie de groupes mineurs de crustacés
Figure 110. Cartographie sur l'ensemble de la zone d'étude des occurrences des 15 des 16 espèces d'isopodes
signalées dans la zone d'inventaire (Bathymétrie: GEBCO; 1 254 occurrences: OBIS, GBIF du 23/06/2021).
Figure 111. Cartographie sur l'ensemble de la zone d'étude des occurrences de 7 des 9 espèces de stomatopodes de
la zone d'inventaire (Bathymétrie: GEBCO; 303 occurrences: OBIS, GBIF du 25/06/2021).
�221
ANNEXE III
Affiche de campagne de prévention contre les risques de ciguatera diffusée par l'ARS de Guadeloupe
Figure 112. Affiche de campagne de prévention contre les risques de ciguatera diffusée en Guadeloupe.
�222
ANNEXE IV
Ce complément à l'inventaire principal concerne des espèces qui ne présentent pas d'intérêt direct pour la pêche
mais qui sont essentielles à l'équilibre et à la durabilité de l'écosystème marin, soit par leur rôle dans la chaîne
trophique, soit en tant que prédateurs, soit en tant que proie, entrant dans le régime alimentaire de nombreuses
espèces de l'inventaire; soit par leur rôle dans des associations de type symbiotique avec des espèces de
l'inventaire (par exemple, les anémones et certains poissons ou crustacés); soit qu'elles participent à la
structuration de certains biotopes (par exemple, les gorgones, anémones et le milieu des récifs coralliens); soit
qu'elles fournissent des abris aux espèces, en particulier au stade juvénile (par exemple, les gorgones).
L'inventaire complémentaire de la faune marine est organisé hiérarchiquement selon la taxonomie adoptée
dans cette étude, celle de WoRMS et comprend:
- des chordés vertébrés: reptiles, oiseaux et myxines;
- des chordés non vertébrés: tuniciers;
- des arthropodes, peracarides et ostracodes;
- des mollusques: chitons et scaphopodes;
- des échinodermes: crinoïdes, asteroides, et ophiures;
- des cnidaires: anthozoaires réunissant corallimorphes, coraux mous (ou coraux noirs), anémones, gorgones
et pennatules; méduses, hydrozoaires et cubozoaires;
- des bryozoaires constituant un seul groupe correspondant au phylum;
- des vers marins réunissant plusieurs groupes correspondant à différents phylums: les annélides constitués ici
uniquement de vers polychètes; les nématodes; les némertes et les plathelminthes (ni les priapuliens, ni les
sipunculiens n'ont été signalés dans la zone d'inventaire); et
- des foraminifères qui interviennent dans le régime alimentaire de nombreuses espèces de l'inventaire
principal, en particulier les espèces filtreuses, mais pas seulement (crustacés, céphalopodes, mollusques
gastéropodes et bivalves). La grande majorité des signalements ont concerné des spécimens fossiles, des
traceurs des masses d'eau; ainsi, de nombreuses espèces signalées dans la zone d'inventaire ont leur principale
aire de distribution située en Antarctique ou à la périphérie (îles Kerguelen), la présence de ces fossiles indique
des eaux polaires antarctiques denses issues de l'accumulation de ce type d'eau au fond des plaines abyssales
de Nares et d'Hatteras qui auraient diffusé par le passage du Vent (Cf. §1.2). Seules trois espèces ont pu intégrer
cet inventaire réservé au monde vivant et excluant les formes fossiles.
L'inventaire des échinodermes a bénéficié des apports de deux inventaires réalisés sur l'île d'Hispaniola et dans
la mer des Caraïbes (Herrera-Moreno et Betancourt-Fernández, 2004; Alvarado, 2011) et celui des anémones
de l'inventaire réalisé sur l'île d'Hispaniola (Herrera- Moreno et Betancourt- Fernández, 2002).
Il est à noter que plusieurs de ces espèces sont proposées sur le marché de l'aquariophilie (gorgones, coraux
mous, anémones, etc.).
L'inventaire complémentaire de la flore marine comprend des micro-algues:
- une algue verte: le genre Chlamydomonas, algue verte unicellulaire, flagellée;
- des diatomées, classe des Bacillariophyceae, qui compte quatre espèces; et
- des cyanophycées ou algues bleues, classe des Cyanophyceae, qui comptent 10 taxons: 1 genre et 9 espèces.
Ce dernier groupe regroupe des espèces ubiquistes qui se rencontrent en eau douce, saumâtre et marine.
La taxonomie des algues connaît des révisions fréquentes, en particulier la position phylogénétique des
diatomées est en discussion; rattachées dans WoRMS au phylum Ochrophyta (phylum des algues brunes) ou
au phylum Bacillariophyta dans AlgaeBase. Le choix a été fait de retenir la taxonomie la plus récemment mise
à jour.
�223
Les espèces signalées dans la zone d'inventaire comptaient des espèces d'eau douce ou terrestres ainsi que des
espèces sous forme de fossiles52; ces espèces n'ont pas été retenues, seules les espèces existantes aujourd'hui
ont été retenues.
Les micro-algues constituent le phytoplancton qui est un compartiment essentiel de la chaîne trophique de la
faune marine. Il intervient dans le régime alimentaire de nombreuses espèces, des mammifères (par exemple,
les baleines à fanons) aux poissons, mollusques filtreurs bivalves, gastéropodes, les échinodermes, les
cnidaires, etc. Certaines espèces présentent un intérêt commercial dont les Chlamydomonas pour le biocarburant et la cyanophycée Oscillatoria princeps qui présente des propriétés antimicrobiennes et qui est riche
en acides gras.
Les distributions spatiales des signalements des micro-algues dans la zone d'inventaire comme dans la zone
d'étude (figure 123) rendent compte d'une carence dans l'investissement scientifique sur la connaissance du
phytoplancton, de sa productivité, dans la région. Rappelons que le zooplancton, compartiment également
important de la chaîne trophique, est constitué de formes larvaires des espèces figurant dans l'inventaire de la
faune marine et de son supplément.
La liste des espèces est présentée sous une forme différente de l'inventaire principal (annexe I). Les taxons
sont organisés selon leur classement taxonomique; phylum, classe, sous-classe et ordre déterminant les
différents groupes faunistiques.
Seules les formes existantes et marines ont été prises en compte. Les formes n'existant qu'à l'état fossile
(fréquentes chez les foraminifères) ont été exclues de cet inventaire; il en a été de même des formes terrestres
et d'eau douce, nombreuses dans certains phylums (par exemple, les vers parasites des vertébrés).
La détermination des espèces signalées dans la zone d'inventaire n'a pas toujours été complète, en raison de la
complexité de la taxonomie en évolution et d'une manière générale moins bien maîtrisée par les scientifiques
pour les organismes de ces embranchements. Certaines déterminations s'arrêtent au niveau du genre; de la
famille, de l'ordre, voire de la sous-classe, de la classe ou du phylum.
Le code Alpha3 ne figure pas dans le tableau. Il sera aisé de l'attribuer en se référant à la liste utilisée par la
FAO qui est accessible en ligne53.
Les colonnes SLB (Sealifebase), OBIS et GBIF ont été renseignées suivant les mêmes règles que dans
l'annexe I.
Les profondeurs minimales (P.min) et maximales (P.max) exprimées en mètres de la distribution
bathymétrique des espèces benthiques sont indiquées quand elles avaient un sens (par exemple, chez les
oiseaux, cette information est inutile) et quand elles ont été renseignées; lorsqu'une seule information
ponctuelle est disponible, la profondeur est indiquée entre parenthèses. Les peuplements (Pplt), tels que définis
précédemment (Cf. § 2.3) ont été indiqués lorsque les informations sur l'espèce le permettaient; le cas échéant
son comportement, si l'espèce est benthique (bent.) ou pélagique (pél.) ou quand l'information précise qu'il
s'agit d'une espèce abyssale sans que la gamme de profondeurs soit renseignée (Ab.).
Les occurrences dans la zone d'étude d'espèces de certains groupes importants ont été restituées sous forme
cartographiques à la suite du tableau d'inventaire (figure 113 à figure 123).
52 Au cours d'opérations du BRGM ou du consortium PANGAEA hébergé par
« Alfred Wegener Institute, Helmholtz Center for
Polar and Marine Research (AWI)» et le «Center for Marine Environmental Sciences, University of Bremen (MARUM)» dont un
des programmes vise à carractériser la dynamique climatique entre 18 000 ans avant notre ère et le présent à travers l'analyse de
sédiments.
53 http://www.fao.org/fishery/collection/asfis/fr
�224
Phylum/Classe
Sous-classe
Ordre
Famille
Nom scientifique
LA FAUNE MARINE – LES VERTÉBRÉS
Nom vernaculaire
AlphiaID
SLB
OBIS
GBIF P. min P.max
Crocodylia
Crocodylidae
Crocodylus acutus (Cuvier, 1807)
Crocodile américain
422566
0
0
1
Anseriformes
Anatidae
Anas bahamensis Linnaeus, 1758
Anas platyrhynchos Linnaeus, 1758
Dendrocygna arborea (Linnaeus, 1758)
Lophodytes cucullatus (Linnaeus, 1758)
Charadrius semipalmatus Bonaparte, 1825
Charadrius vociferus Linnaeus, 1758
Charadrius wilsonia Ord, 1814
Haematopus palliatus Temminck, 1820
Pluvialis dominica (Müller, 1776)
Pluvialis squatarola (Linnaeus, 1758)
Anous stolidus (Linnaeus, 1758)
Chlidonias niger (Linnaeus, 1758)
Gelochelidon nilotica (Gmelin, 1789)
Hydroprogne caspia (Pallas, 1770)
Larus argentatus Pontoppidan, 1763
Larus atricilla Linnaeus, 1758
Larus delawarensis Ord, 1815
Larus fuscus Linnaeus, 1758
Larus marinus Linnaeus, 1758
Onychoprion anaethetus (Scopoli, 1786)
Onychoprion fuscatus Linnaeus, 1766
Sterna dougallii Montagu, 1813
Sterna forsteri Nuttall, 1834
Sterna hirundo Linnaeus, 1758
Sterna maxima Boddaert, 1783
Sterna sandvicensis Latham, 1787
Sternula antillarum Lesson, 1847
Himantopus mexicanus (Müller, 1776)
Actitis macularius Linnaeus, 1766
Arenaria interpres (Linnaeus, 1758)
Calidris alba (Pallas, 1764)
Calidris canutus (Linnaeus, 1758)
Calidris fuscicollis (Vieillot, 1819)
Calidris himantopus (Bonaparte, 1826)
Calidris mauri (Cabanis, 1857)
Calidris melanotos (Vieillot, 1819)
Calidris minutilla (Vieillot, 1819)
Calidris pusilla (Linnaeus, 1766)
Limnodromus griseus (Gmelin, 1789)
Numenius phaeopus (Linnaeus, 1758)
Tringa flavipes (Gmelin, 1789)
Tringa melanoleuca (Gmelin, 1789)
Tringa semipalmatus (J. F. Gmelin, 1789)
Ardea alba Linnaeus, 1758
Ardea herodias Linnaeus, 1758
Butorides striata (Linnaeus, 1758)
Butorides virescens (Linnaeus, 1758)
Egretta caerulea (Linnaeus, 1758)
Egretta rufescens (Gmelin, 1789)
Canard des Bahamas
Canard colvert
Dendrocygne des Antilles
Harle couronné
Pluvier semipalmé
Pluvier kildir
Pluvier de Wilson
Huîtrier d'Amérique
Pluvier bronzé
Pluvier argenté
Noddi brun
Guifette noire
Sterne hansel
Sterne caspienne
Goéland argenté
Mouette atricille
Goéland à bec cerclé
Goéland brun
Goéland marin
Sterne bridée
Sterne fuligineuse
Sterne Dougallii
Sterne de Forster
Sterne pierregarin
Sterne royale
Sterne caugek
Petite Sterne
Échasse d'Amérique
Chevalier grivelé
Tournepierre à collier
Bécasseau sanderling
Bécasseau maubèche
Bécasseau à croupion blanc
Bécasseau à échasses
Bécasseau d'Alaska
Bécasseau à poitrine cendrée
Bécasseau minuscule
Bécasseau semipalmé
Bécassin roux
Courlis corlieu
Petit Chevalier
Grand Chevalier
Chevalier semipalmé
Grande Aigrette
Grand Héron
Héron strié
Héron vert, Kayali
Aigrette bleue
Aigrette roussâtre
422573
148791
422568
159094
159126
159127
366844
159128
159136
159137
212629
137137
148798
567825
137138
159074
148797
137142
137146
567792
567827
137160
159057
137162
137163
137166
567797
159131
159081
147431
159084
147433
159050
159051
366588
159053
159054
159055
158955
159040
159030
158967
567466
159381
159382
212661
159112
159114
422580
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
1995
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
2009
0
0
0
0
0
0
0
0
0
1927
2012
1917
2017
1917
1917
1917
2011
2011
1917
1995
2018
1920
1959
2009
1920
2005
2009
2009
2009
1966
2013
2016
1999
1917
1985
1917
1917
1891
1918
1918
2009
2018
2011
1917
2009
1917
1917
2009
2011
1917
1970
1927
1970
1927
1927
1959
1917
1987
Pplt
Tetrapoda
Reptilia
Aves (oiseaux)
Charadriiformes
Charadriidae
Laridae
Recurvirostridae
Scolopacidae
Ciconiiformes
Ardeidae
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
p1
�225
Phylum/Classe
Sous-classe
Ordre
Famille
Nom scientifique
LA FAUNE MARINE – LES VERTÉBRÉS
Nom vernaculaire
AlphiaID
Ciconiiformes (suite)
Ardeidae (suite)
Egretta thula (Molina, 1782)
Egretta tricolor (Müller, 1776)
Nyctanassa violacea (Linnaeus, 1758)
Platalea ajaja (Linnaeus, 1758)
Plegadis falcinellus (Linnaeus, 1766)
Pelecanus occidentalis Linnaeus, 1766
Sula leucogaster (Boddaert, 1783)
Sula sula (Linnaeus, 1766)
Phoenicopterus ruber Linnaeus, 1758
Podilymbus podiceps (Linnaeus, 1758)
Rollandia rolland (Quoy & Gaimard, 1824)
Tachybaptus dominicus (Linnaeus, 1766)
Pterodroma hasitata (Kuhl, 1820)
Puffinus lherminieri Lesson, 1839
Oceanodroma castro (Harcourt, 1851)
LA FAUNE MARINE – LES VERTÉBRÉS AGNATHES
Aigrette neigeuse
Aigrette tricolore
Bihoreau violacé
Spatule rosée
Ibis falcinelle
Pélican brun
Fou brun
Fou à pieds rouges
Flamant des Caraïbes
Grèbe à bec bigarré
Grèbe de Rolland
Grèbe minime
Pétrel diablotin
Puffin d'Audubon
Océanite de Castro
159116
159117
159121
422584
158977
343935
212597
212596
212708
159062
366614
366615
343975
212633
137191
Myxine
279289
SLB
OBIS
GBIF P. min P.max
1997
2007
0
0
0
0
0
0
0
1995
1970
0
0
0
0
0
1995
1995
1917
1917
1917
1987
1918
1915
0
0
1959
1917
1
1917
1939
1985
0
1963
0
1963
2010
0
0
0
0
2010
0
0
0
0
1937
0
0
1937
0
0
0
0
Pplt
Tetrapoda (suite)
Aves – oiseaux (suite)
Threskiornithidae
Pelecaniformes
Pelecanidae
Sulidae
Phoenicopteriformes
Podicipediformes
Phoenicopteridae
Podicipedidae
Procellariidae
Hydrobatidae
Myxini
Myxini
Myxiniformes
Myxinidae
Eptatretus mendozai Hensley, 1985
LA FAUNE MARINE – LES TUNICIERS
Ascidiacea
Ascidiacea
Aplousobranchia
Didemnidae
Trididemnum palmae Monniot F., 1984
Trididemnum solidum (Van Name, 1902)
Clavelina picta (Verrill, 1900)
Distaplia corolla Monniot F., 1974
Rhopalaea abdominalis (Sluiter, 1898)
Ascidia interrupta Heller, 1878
Ascidia sydneiensis Stimpson, 1855
Phallusia nigra Savigny, 1816
Herdmania momus (Savigny, 1816)
Botrylloides niger Herdman, 1886
Polyandrocarpa tumida
Polycarpa spongiabilis Traustedt, 1883
Symplegma viride Herdman, 1886
LA FAUNE MARINE – LES INVERTÉBRÉS
Phlebobranchia
Stolidobranchia
Arthropodes
Crustacea / Malacostraca
Crustacea
Eumalacostraca
Crustacea
Crustacea / Ostracoda
Crustacea
Mollusques
Mollusca/ Polyplacophora (Chitons)
Polyplacophora
Neoloricata
Thermosbaenacea
Clavelinidae
Holozoidae
Diazonidae
Ascidiidae
Pyuridae
Styelidae
Monodellidae
Button tunicate (En)
Reef tunicate (En)
Gray sea squirt (En)
Giant tunicate (En)
Tethysbaena haitiensis Wagner, 1994
Tethysbaena juglandis Wagner, 1994
Saltipedis (Saltipedis) navassensis Hansknecht, Heard & Martin,
2001
251520
251537
250323
103606
251318
103706
215940
103725
103830
252289
251069
212501
2016
2016
2016
2016
0
2016
0
0
2016
2016
2016
2016
412769
412771
739724
Tanaidacea
Parapseudidae
Podocopida
Cyprididae
Strandesia longula Broodbakker, 1983
Ostracode
714339
Chitonida
Callistoplacidae
Ceratozona squalida (C. B. Adams, 1845)
Ischnoplax pectinata (G. B. Sowerby II, 1840)
Acanthopleura granulata (Gmelin, 1791)
Chiton marmoratus Gmelin, 1791
Chiton squamosus Linnaeus, 1764
Chiton tuberculatus Linnaeus, 1758
Chiton viridis Spengler, 1797
Eastern surf chiton (En)
386149
386152
386270
386780
848071
152651
386788
Chitonidae
0
0
1987
West Indian fuzzy chiton (En)
Marbled chiton (En)
Squamous chiton (En)
West Indian green chiton (En)
Green chiton (En)
0
1937
0
0
0
0
1979
0
0
17
0
35
1
0
112
12
0
40
0
0
60
32
0
1
0
0
0
0
0
1
1
3
4
4
p1
1979
1979
2000
1984
0
0
0
0
0
0
0
0
0
0
0
0
1888
0
1
1
1858
1979
1
1928
1927
p1
p1
�226
Phylum/Classe
Sous-classe
Mollusques (suite)
Mollusca/ Polyplacophora (Chitons) (suite)
Polyplacophora (suite)
Neoloricata (suite)
Mollusca/ Scaphopoda (Scaphopodes)
Scaphopoda
Ordre
Famille
Nom scientifique
LA FAUNE MARINE – LES INVERTÉBRÉS (suite)
Chitonida (suite)
Ischnochitonidae
Mopaliidae
Stenoplax limaciformis (G. B. Sowerby I, 1832)
Stenoplax purpurascens (C. B. Adams, 1845)
Plaxiphora aurata (Spalowsky, 1795)
Tonicellidae
Tonicella marmorea (O. Fabricius, 1780)
Dentaliidae
Antalis antillarum (d'Orbigny, 1847)
Graptacme semistriata (W. Turton, 1819)
Graptacme semistriolata (Guilding, 1834)
Fustiaria stenoschiza (Pilsbry & Sharp, 1897)
Dentaliida
Fustiariidae
Échinodermes
Crinoïdes
Crinoidea
Étoiles de mer
Asteroidea
Articulata
Comatulida
Antedonidae
Colobometridae
Comatulidae
Cyrtocrinida
Isocrinida
Rhizocrinidae
Zenometridae
Holopodidae
Isselicrinidae
Brisingida
Forcipulatida
Notomyotida
Brisingidae
Zoroasteridae
Benthopectinidae
Paxillosida
Astropectinidae
Luidiidae
Pseudarchasteridae
Spinulosida
Valvatida
Echinasteridae
Goniasteridae
Ophidiasteridae
Oreasteridae
Caymanostellidae
Trichometra cubensis (Pourtalès, 1869)
Analcidometra armata (Pourtalès, 1869)
Comactinia echinoptera (Müller, 1840)
Comactinia meridionalis meridionalis (L. Agassiz, 1865)
Comissia venustus (AH Clark, 1909)
Davidaster rubiginosus (Pourtalès, 1869)
Democrinus conifer (AH Clark, 1909)
Zenometra columnaris (Carpenter, 1881)
Holopus rangii Orbigny, 1837
Endoxocrinus (Endoxocrinus) parrae parrae (Gervais in Guérin,
1835)
Brisinga costata Verrill, 1884
Zoroaster fulgens Wyville Thomson, 1873
Benthopecten simplex (Perrier, 1881)
Benthopecten simplex simplex (Perrier, 1881)
Cheiraster (Christopheraster) blakei A.M. Clark, 1981
Astropecten antillensis Lütken, 1859
Persephonaster patagiatus (Sladen, 1889)
Psilaster cassiope Sladen, 1889
Luidia senegalensis (Lamarck, 1816)
Echinaster (Othilia) guyanensis A.M. Clark, 1987
Echinaster (Othilia) sentus (Say, 1825)
Pseudarchaster gracilis (Sladen, 1889)
Pseudarchaster gracilis gracilis (Sladen, 1889)
Henricia downeyae A.M. Clark, 1987
Ceramaster grenadensis (Perrier, 1881)
Ceramaster grenadensis grenadensis (Perrier, 1881)
Litonotaster intermedius (Perrier, 1884)
Nymphaster arenatus (Perrier, 1881)
Peltaster placenta (Müller & Troschel, 1842)
Pillsburiaster geographicus Halpern, 1970
Linckia guildingi Gray, 1840
Ophidiaster guildingi Gray, 1840
Tamaria halperni Downey, 1971
Oreaster reticulatus (Linnaeus, 1758)
Caymanostella spinimarginata Belyaev, 1974
Nom vernaculaire
Purplish slender chiton (En)
Camouflaged spiny sea
cradle(En)
Mottled red chiton (En)
Antillean tuskshell (En)
Scratched tuskshell (En)
Narrow-slit tuskshell (En)
Swimming sea lily (En)
Striped feather star (En)
étoile de mer sénégalaise
étoile-biscuit
comet starfish (En)
Étoile de Guilding
cushioned star (En)
AlphiaID
SLB
OBIS
848059
848074
817223
0
0
0
0
0
0
1984
1927
1
0
0
0
90
3
30
140151
0
0
1
2
91
1433335
344517
421012
344264
0
0
0
0
0
0
0
0
1
1
1
1
0
3
2
35
45
164
130
400
1970
0
1970
1970
1970
0
1970
1970
1970
0
1970
0
1970
1927
1970
1970
2014
1970
3
2
148
508
p3
p3
.
0
.
50
p1
124232
422445
246740
393549
246782
246784
124183
163758
422454
242117
178255
123826
123837
125198
178245
178646
123899
123909
178641
178750
178752
178133
178134
178756
124021
125211
178122
124048
124055
178132
178188
178193
178197
178210
177891
2016
0
.
0
1970
0
2011
2011
.
2011
2011
2011
0
2011
0
2011
0
2011
2011
0
GBIF P. min P.max
1970 1970
1970 1970 220
1970 1970
1
1
0
11
250
0
1800
0
0
0
18001 450
0
0
0
0
0
12
000
0
0
1970 1970
1970
1970 1970
1970 1878
70
1970
0
0
1 960
1970 1963
58
0
0
2
0
1970
1937 1937
0
0
0
0
0
0
(311)
1988 1930
0
1970 1970
Pplt
3000
1030
Ab. p10
703
46
113
13
p1
p1
p4
2500
3 050
3000
1 007
p10
298
323
p3
p6
p6
p4
69
p6
�227
Phylum/Classe
Sous-classe
Échinodermes (suite)
Étoiles de mer (suite)
Asteroidea (suite)
Ophiures
Ophiuroidea
Myophiuroidea
Ordre
Famille
Nom scientifique
LA FAUNE MARINE – LES INVERTÉBRÉS (suite)
Valvatida (suite)
Pterasteridae
Calyptraster personatus (Perrier, 1885)
Hymenaster rex Perrier, 1885
Pteraster abyssorum (Verrill, 1895)
178547
124139
178559
244939
242991
246078
243453
125122
1326974
243695
124887
124833
243892
244020
244162
244182
244148
243214
243573
1306698
1307747
245143
245515
245516
245142
243863
123554
123566
2011
2011
Ophiomyxidae
Ophiopyrgidae
Ophiosphalmidae
Amphiodia riisei (Lütken, 1859)
Amphiura stimpsonii Lütken, 1859
Ophiozonella marmorea (Lyman, 1883)
Ophiactis ljungmani Marktanner-Turneretscher, 1887
Ophiactis savignyi (Müller & Troschel, 1842)
Ophiolepis buitronae Pineda-Enriquez et al., 2018
Ophiolepis impressa Lütken, 1859
Ophiolepis paucispina (Say, 1825)
Ophionereis reticulata (Say, 1825)
Ophionereis squamulosa Koehler, 1914
Ophiopsila riisei Lütken, 1859
Ophiothrix (Ophiothrix) angulata (Say, 1825)
Ophiothrix (Ophiothrix) oerstedii Lütken, 1856
Ophiothrix (Acanthophiothrix) suensoni Lütken, 1856
Astrophyton muricatum (Lamarck, 1816)
Ophiocoma echinata (Lamarck, 1816)
Ophiocomella pumila (Lütken, 1856)
Ophiomastix wendtii (Müller & Troschel, 1842)
Ophioderma appressum (Say, 1825)
Ophioderma brevicaudum Lütken, 1856
Ophioderma brevispinum (Say, 1825)
Ophioderma cinereum Müller & Troschel, 1842
Ophiomyxa flaccida (Say, 1825)
Amphiophiura Matsumoto, 1915
Ophiomusium Lyman, 1869
Corallimorphidae
Discosomidae
Pseudocorynactis caribbeorum Den Hartog, 1980
Discosoma carlgreni (Watzl, 1922)
101017
289830
2006b
2006b
0
0
Ricordeidae
Discosoma neglecta (Duchassaing & Michelotti, 1860)
Rhodactis osculifera (Le Sueur, 1817)
Ricordea florida Duchassaing & Michelotti, 1860
Corallimorphaire jongleur
Forked-tentacle
corallimorpharian (En)
Coralimporphaire- ombrelle
Coralimporphaire verruqueux
Anémone corallimorphe de
Floride
289834
456765
290995
2002
2002
2002
Corail noir
Corail fil de fer
Amphilepidida
Amphiuridae
Hemieuryalidae
Ophiactidae
Ophiolepididae
Ophionereidoidea
Ophiopsilidae
Ophiotrichidae
Euryalida
Ophiacanthida
Gorgonocephalidae
Ophiocomidae
Ophiodermatidae
Ophiurida
Cnidaires - Anthozoaires
Corallimorphes
Anthozoa
Hexacorallia
Coraux mous (noirs)
Anthozoa
Hexacorallia
Corallimorpharia
Antipatharia
Antipathidae
Zoantharia
Cladopathidae
Schizopathidae
Parazoanthidae
Sphenopidae
Antipathes rhipidion Pax, 1916
Stichopathes luetkeni Brook, 1889
Heteropathes americana (Opresko, 2003)
Bathypathes Brook, 1889
Bergia puertoricense (West, 1979)
Parazoanthus swiftii (Duchassaing de Fonbressin & Michelotti,
1860)
Umimayanthus parasiticus (Duchassaing de Fonbressin &
Michelotti, 1860)
Palythoa caribaeorum Duchassaing & Michelotti, 1860
Palythoa grandis (Verrill, 1900)
Nom vernaculaire
AlphiaID
SLB
OBIS
GBIF P. min P.max
2011
19701 1970 2 150
0
19701
0
0
0
0
0
0
0
1877
2006
1
0
1870
0
1927
0
1937
1937 1937
1937 1936
1937 1936
1937 1937
1937 1927
1937 1870
0
18771
1988
0
1937 1937
1937 1937
1937 1937
1937 1937
1937 1937
1
1
1937 1937
0
1977
0
1977
Pplt
6 560 Ab. p10
1
986
p3
0
550
p3
0
1
1
1
1
0
0
0
2
0
10
1
0
1
1
0
0
24
37
221
40
366
540
31
479
500
24
368
27
180
18
223
173
320
p3
p4
p3
p4
p3
p3
p4
p4
p6
p4
p4
p3
p3
p4
p3
p3
p3
0
0
50
100
p3
0
0
0
0
0
0
5
5
0
30
30
160
p3
p3
p3
0
0
1
1
125
1 737
p3
p10
0
1933
0
1
1
2004
0
15
1 682
Zoanthaire-éponge doré
283919
0
1287835 2006b
723294
0
103304
853593
283872 2006b
Zoanthaire-éponge grisâtre
847839
2006b
0
0
7.5
30
p3
Zoanthaire caraïbe
288456
288461
2002
2016
0
0
0
0
5
12
p3
p3
Ophiure de Savigny
Brittlestar (En)
Brittlestar (En)
Ophiure des crevasses
Brittlestar (En)
Angular brittle star (En)
Ophiure d’Oersted
Ophiure des éponges
Gorgonocéphale géant
Black brittle star (En)
Petites ophiure épineuse
Red ophiocoma (En)
Harlequin brittle star (En)
Short spined ophioderma (En)
ophiure à courts piquants
Chocolate brittle star (En)
Limy brittle star (En)
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
�228
Phylum/Classe
Sous-classe
Cnidaires - Anthozoaires (suite)
Coraux mous (noirs) (suite)
Anthozoa (suite)
Hexacorallia (suite)
Ordre
Famille
Nom scientifique
LA FAUNE MARINE – LES INVERTÉBRÉS (suite)
Nom vernaculaire
AlphiaID
SLB
OBIS
Zoantharia (suite)
Zoanthidae
Isaurus tuberculatus Gray, 1828
Anémone coloniale de
Duchassaing
Mat zoanthid (En)
Anémone de mer tapis
101058
2006b
0
0
288840
288843
2006b
0
0
0
1
289496
1264073
888639
290277
742298
289355
2002
2016
2002
2016
2002
0
0
1
0
0
0
0
0
1
0
0
0
1895
592948
283419
290216
100971
283507
289350
287166
283624
100775
283712
291135
0
2002
0
2016
2016
2016
2016
2002
0
0
0
1
0
0
0
0
0
0
0
0
1
1895
1
2018
0
0
0
0
0
1
1895
1
289919
289534
125294
125295
125290
125325
125298
520722
286177
367982
708859
520685
290029
290032
2006b
2006b
290045
286273
267781
290922
290925
290927
125303
125305
2006b
2016
Zoanthus pulchellus (Duchassaing & Michelotti, 1860)
Zoanthus sociatus (Ellis, 1768)
Anémones
Anthozoa
Hexacorallia
Actiniaria
Aiptasiidae
Actiniidae
Bartholomea annulata (Le Sueur, 1817)
Exaiptasia diaphana (Rapp, 1829)
Laviactis lucida (Duchassaing de Fombressin & Michelotti, 1860)
Lebrunia coralligens (Wilson, 1890)
Lebrunia neglecta Duchassaing & Michelotti, 1860
Actinostella flosculifera (Le Sueur, 1817)
Andvakiidae
Boloceroididae
Capneidae
Cassiopeidae
Hormathiidae
Phelliidae
Phymanthidae
Stichodactylidae
Bunodosoma granuliferum (Le Sueur, 1817)
Condylactis gigantea (Weinland, 1860)
Isoaulactinia stelloides (McMurrich, 1889)
Telmatactis cricoides (Duchassaing, 1850)
Bunodeopsis globulifera (Duchassaing, 1850)
Actinoporus elegans Duchassaing, 1850
Cassiopea frondosa (Pallas, 1774)
Calliactis tricolor (Le Sueur, 1817)
Phellia Gosse, 1858
Phymanthus crucifer (Le Sueur, 1817)
Stichodactyla helianthus (Ellis, 1768)
Aliciidae
Gorgones
Anthozoa
Octocorallia
Alcyonacea
Anthothelidae
Briareidae
Chrysogorgiidae
Clavulariidae
Coralliidae
Ellisellidae
Gorgoniidae
Isididae
Erythropodium caribaeorum (Duchassaing & Michelotti, 1860)
Briareum asbestinum (Pallas, 1766)
Chrysogorgia Duchassaing & Michelotti, 1864
Iridogorgia Verrill, 1883
Telestula Madsen, 1944
Corallium Cuvier, 1798
Ellisella Gray, 1858
Ellisella elongata (Pallas, 1766)
Nicella obesa Deichmann, 1936
Antillogorgia acerosa (Pallas, 1766)
Antillogorgia americana (Gmelin, 1791)
Filigorgia sanguinolenta (Pallas, 1766)
Gorgonia flabellum Linnaeus, 1758
Gorgonia mariae Bayer, 1961
Gorgonia ventalina Linnaeus, 1758
Leptogorgia rigida Verrill, 1864
Pseudopterogorgia Kükenthal, 1919
Pterogorgia anceps (Pallas, 1766)
Pterogorgia citrina (Esper, 1792)
Pterogorgia guadalupensis Duchassaing & Michelin, 1846
Acanella Gray, 1870
Isidella Gray, 1857
Anémone transparente
Anémone à boutons
Hidden anemone (En)
Anémone à rameaux
Anémone- carpette, anémone
des sables
Giant Caribbean anemone En)
Club tipped anemone (En)
Turtle grass anemone (En)
Upside down (En)
Anémone tricolore
Beaded anemone (En)
Caribbean sun anemone (En)
Gorgone encroûtante.
Corky seafinger (En)
Long fouet de mer
Purple sea plume (En)
Slimy sea plume (En)
Éventail de Venus
Éventail de mer à grandes
mailles
Éventail de mer commun
Gorgone en lambeaux
Gorgone-fouet jaune
Gorgone martinet
2016
2016
2006b
0
20
Pplt
p3
p3
p3
2
2
25
30
6
20
p3
p1
p1
p3
p3
p3
0
1
10
2,5
p1
p1
p3
0
1
25
55
p3
p3
3
3
37
7
p3
p3
p3
0
16
p3
0
1927
1850
1
1
1
1
1
0
1988
1
1970
1859
1
0
1
0
0
0
0
0
1
1
0
5
4
30
p3
0
1
0
0
0
1
1
1
1
9
27
p3
p3
1
1
1
1
2016
.
2006b
2006b
.
0
2006b
GBIF P. min P.max
0
1988
0
2010
�229
Phylum/Classe
Sous-classe
Cnidaires - Anthozoaires (suite)
Gorgones (suite)
Anthozoa (suite)
Octocorallia (suite)
Ordre
Famille
Nom scientifique
LA FAUNE MARINE – LES INVERTÉBRÉS (suite)
Alcyonacea (suite)
Isididae (suite)
Nephtheidae
Nidaliidae
Keratoisis grayi (Wright, 1869)
Stereonephthya portoricensis (Hargitt, 1901)
Chironephthya agassizii (Deichmann, 1936)
Siphonogorgia caribaea (Deichmann, 1936)
Eunicea asperula Milne Edwards & Haime, 1857
Eunicea calyculata (Ellis & Solander, 1786)
Eunicea clavigera Bayer, 1961
Eunicea colombiana
Eunicea flexuosa (Lamouroux, 1821)
Eunicea fusca Duchassaing & Michelotti, 1860
Eunicea laciniata Duchassaing & Michelotti, 1860
Eunicea laxispica (Lamarck, 1815)
Eunicea mammosa Lamouroux, 1816
Eunicea pallida Garcia Parrado & Alcolado, 1996
Eunicea succinea (Pallas, 1766)
Plexauridae
Plexauridae (suite)
Primnoidae
Pennatules
Anthozoa
Octocorallia
Cnidaires - Hydrozoaires
Méduses
Hydrozoa
Hydroidolina
Eunicea tourneforti Milne Edwards & Haime, 1857
Muricea atlantica (Kükenthal, 1911)
Muricea laxa Verrill, 1864
Muricea muricata (Pallas, 1766)
Muricea pinnata Bayer, 1961
Muriceopsis bayeriana Sánchez, 2007
Muriceopsis flavida (Lamarck, 1815)
Paramuricea Kölliker, 1865
Plexaura flavida (Lamarck, 1815)
Plexaura homomalla (Esper, 1794)
Plexaura kukenthali Moser, 1921
Plexaurella dichotoma (Esper, 1791)
Plexaurella nutans (Duchassaing & Michelotti, 1860)
Pseudoplexaura flagellosa (Houttuyn, 1772)
Pseudoplexaura wagenaari (Stiasny, 1941)
Pseudoplexaura porosa (Houttuyn, 1772)
Scleracis guadalupensis (Duchassaing & Michelotti, 1860)
Villogorgia nigrescens Duchassaing & Michelotti, 1860
Allogorgia acerosa
Allogorgia elisabethae
Allogorgia rigida
Allotogorgia bipinatta
Callogorgia americana Cairns & Bayer, 2002
Calyptrophora antilla Bayer, 2001
Candidella imbricata (Johnson, 1862)
Pennatulacea
Umbellulidae
Umbellula Gray, 1870
Anthoathecata
Milleporidae
Millepora alcicornis Linnaeus, 1758
Millepora complanata Lamarck, 1816
Millepora squarrosa Lamarck, 1816
Pennaria disticha Goldfuss, 1820
Stylaster roseus (Pallas, 1766)
Pennariidae
Stylasteridae
Nom vernaculaire
Corail pastel
Knobby candelabra (En)
Warty sea rod (En)
AlphiaID
SLB
OBIS
GBIF P. min P.max
Pplt
125376
418848
418845
955044
283234
283235
283238
.
1970
0
0
0
0
0
0
1970
1877
1877
1877
0
0
0
0
0
0
0
0
0
0
0
0
0
0
0
Bent sea rod (En)
Doughnut sea rod (En)
834203
283242
283250
283251
Swollen knob candelabrum(En) 283254
283256
Gorgone arborescente
283262
rugueuse
knobby candelabra (En)
283263
Prickly sea whip (En)
287554
delicate spiny sea rod (En)
287567
spiny sea fan (En)
287569
longspine sea fan (En)
287570
517747
Gorgone Violacée
290417
125311
290792
black sea rod (En)
290797
290798
Slit-pore sea rod (En)
290812
giant split-pore sea rod (En)
290819
porous sea rod (En)
290880
290882
Dry sea feather (En)
290881
418854
286471
177832
287650
125406
0
2016
2016
2016
2016
0
2016
2016
2016
2006b
2016
2016
13
4
0
27
33
27
p3
p3
p3
1889
0
0
0
1970
0
0
1
4
3
27
27
19
p3
p3
1
5
1
6
p3
3
3
18
1
16
0
3
17
18
128
4
27
4
15
p3
p3
p5
p3
p3
p3
p3
1
15
p3
0
0
0
2010
0
1988
0
0
0
0
0
0
1970
1
1
0
0
1
0
0
0
2010
1877
1988
2
13
3
2
3
51
101
27
27
27
27
283
120
478
p3
p3
p3
p5
p5
p5
0
1970
1970
0
1970
1970
1
1
2006b,c
2006b,c
0
0
2016
2006b
0
1970
1859
2018
1
0
1970
0
0
1
0
0
55
45
25
29
73
p4
p3
p3
p1
p3
2016
2016
2016
2016
2016
2016
0
.
2006b
2016
0
2016
2016
2016
0
0
0
2016
2016
2016
2016
2016
.
.
128499
Fire coral (En)
bladed fire coral (En)
Cristal fire coral (En)
Feather hydroid (En)
Corail-dentelle rose
210726
287421
287425
117802
285905
1970
1
0
0
�230
Phylum/Classe
Sous-classe
Cnidaires – Hydrozoaires (suite)
Méduses (suite)
Hydrozoa (suite)
Hydroidolina (suite)
Ordre
Famille
Nom scientifique
LA FAUNE MARINE – LES INVERTÉBRÉS (suite)
Nom vernaculaire
AlphiaID
SLB
OBIS
Leptothecata
Aequoreidae
Campanulariidae
Lafoeidae
Plumulariidae
Sertularellidae
Thyroscyphidae
Aequorée
0
0
0
0
0
2016
0
0
0
0
Physalie, Galère portugaise
117270
117372
284975
285201
285502
203893
292444
284994
135479
2006b
0
0
0
2016
Zygophylacidae
Physaliidae
Aequorea forskalea Péron & Lesueur, 1810
Clytia noliformis (McCrady, 1859) sensu Calder, 1991
Lafoea coalescens Allman, 1877
Nemertesia simplex (Allman, 1877)
Sertularella diaphana (Allman, 1885)
Thyroscyphus Allman, 1877
Thyroscyphus marginatus (Allman, 1877)
Zygophylax convallaria (Allman, 1877)
Physalia physalis (Linnaeus, 1758)
Carybdeidae
Tamoyidae
Carybdea Péron & Lesueur, 1810
Tamoya haplonema F. Müller, 1859
Méduses-boîtes
Box jelly (En)
135247
288081
0
0
Adeonidae
Bugulidae
Cupuladriidae
Adeonellopsis subsulcata (Smitt, 1873)
Bugula minima Waters, 1909
Cupuladria biporosa (Canu & Bassler, 1923)
Discoporella umbellata (Defrance, 1823)
Exechonella pumicosa Canu & Bassler, 1928
Metrarabdotos Canu, 1914
Bryozoaire Buisson blanc
852853 2006b
422275
2016
111345
471745
0
1027142
415631
Hermodice carunculata (Pallas, 1766)
Eurythoe complanata (Pallas, 1766)
Eunice articulata Ehlers, 1887
Eunice floridana (Pourtalès, 1867)
Eunice fucata Ehlers, 1887
Leodice antennata Savigny in Lamarck, 1818
Marphysa sanguinea (Montagu, 1813)
Paucibranchia miroi Molina-Acevedo, 2018
Anchinothria glutinatrix (Ehlers, 1887)
Hesione picta Müller in Grube, 1858
Lopadorrhynchus uncinatus Fauvel, 1915
Nereis nigripes Ehlers, 1868
Nereis riisei Grube, 1857
Pseudonereis atopodon Chamberlin, 1919
Harmothoe benthophila Ehlers, 1913
Tomopteris planktonis Apstein, 1900
Laonome Malmgren, 1866
Bispira brunnea (Treadwell, 1917)
Anamobaea orstedii Krøyer, 1856
Sabellastarte magnifica (Shaw, 1800)
Pomatostegus kroyeri Mörch, 1863
Serpula cereolus Linnaeus, 1788
Spirobranchus giganteus (Pallas, 1766)
Eupolymnia crassicornis (Schmarda, 1861)
Terebellobranchia hiata (Treadwell, 1931)
Thelepus haitiensis Treadwell, 1931
Ver de feu barbu, ver barbelé
Ver de feu
Ver polychète
Ver polychète
Ver polychète
Ver polychète
mouron, ver de roche, pistiche
Ver polychète
Ver polychète
129831 2006b,c
129829 2006b
0
327635
130056
0
327684
0
336660
0
1933
130075
0
1305453
736492
0
328339
0
130214
0
334191
329735
0
331403
174465
0
131566
0
129534
421069 2006b,c
0
326435 2006b,c
0
334717 2006b,c
0
335049
331821
209944 2006b
0
333396 2006b
0
994010
1927
340135
1927
Siphonophorae
Cubuzoaires - Méduses - boîtes
Cubozoa
Bryozoaires
Gymnolaemata
Carybdeida
Cheilostomatida
Exechonellidae
Metrarabdotosidae
VERS MARINS
Annélides
Polychaeta
Errantia
Amphinomida
Amphinomidae
Eunicida
Eunicidae
Phyllodocida
Sedentaria
Sabellida
Onuphidae
Hesionidae
Lopadorrhynchidae
Nereididae
Polynoidae
Tomopteridae
Sabellidae
Serpulidae
Terebellida
Terebellidae
T
Nématodes
Chromadorea
Chromadoria
Desmodorida
Desmodoridae
Acanthopharynx micans Eberth, 1863
Branching hydroid (En)
Hydrozoaire séssile
Ver polychète
Ver polychète
Ver polychète
Ver polychète
Ver polychète
Ver polychète
Ver polychète
Sabelle sociale
Sabelle fendue
Sabelle magnifique
Ver polychète
Ver polychète
Ver arbre de Noël
Térébelle spaghetti
Ver polychète
Ver polychète
120956
0
0
GBIF P. min P.max
Pplt
0
1921
1981
1
0
1
0
1981
1
0
0
25
63
5
200
40
256
683
306
p7
p4
p3
p3
p3
1
126
805
413
p3
p6
p8
0
85
p7
0
0
1
1
1914
1
15
18
15
.
45
?
1473
.
p1
1859
0
1
1
1
1933
1
1969
1878
1
1
1
1930
1930
1
1
1
0
0
0
2010
1
0
0
3
1
109
1 100
p3
p6
210
500
0
1
?
501
60
65
p6
p10
p1
p1
.
.
p2
.
.
p7
(152)
.
p6
.
.
p7
p7
2
5
2
35
35
20
p1
p1
p1
0
3
35
40
p3
p1
1
1957
1
�231
Phylum/Classe
Sous-classe
Ordre
Famille
Nom scientifique
LA FAUNE MARINE – LES INVERTÉBRÉS (suite)
VERS MARINS (suite)
Nématodes (suite)
Chromadorea (suite)
Chromadoria (suite)
Rhabditida
Acuariidae
Tetrameridae
Acuariidae Railliet, Henry & Sisoff, 1912
Tetrameres Creplin, 1846
Némerte
Nemertea
Pilidiophora
Heteronemertea
Lineidae
Cerebratulus lacteus (Leidy, 1851)
Tricladida
Geoplanidae
Microplana Vejdovsky, 1889
879329
Rotaliida
Candeinidae
Globigerinidae
Homotrematidae
Rotaliidae
Cymbaloporetta squammosa (d'Orbigny, 1839)
Turborotalita humilis (Brady, 1884)
Homotrema rubrum (Lamarck, 1816)
Rotorbinella rosea (d'Orbigny in Guérin-Méneville, 1832)
LA FLORE MARINE – Micro- Algues (Phytoplancton)
113134
113461
585257
557021
Chlamydomonadaceae
Chlamydomonas Ehrenberg, 1833
Biddulphiaceae
Eupodiscaceae
Biddulphia fractosa Mann, 1925
Entogoniopsis tabellaria (T.Brightwell) J.Witkowski, P.A.Sims,
N.I.Strelnikova & D.M.Williams, 2015
Stictodiscus jeremianus Schmidt in Schmidt et al., 1882
Tabularia parva (Kützing) Williams & Round, 1986
Plathelminthes
Platyhelminthes
Chromista- FORAMINIFÈRES
Globothalamea
Rotaliana
Algues vertes
Chlorophyceae
Chromista- Diatomées
Bacillariophyceae
Chlamydomonadales
Coscinodiscophycidae Biddulphiales
Triceratiales
Bacillariophyceae
Fragilariophycidae
Fragilariales
Eubacteria - Algues bleues (procaryotes) ou cyanophycées
Cyanophyceae
Nostocophycidae
Nostocales
Cyanophyceae
Cyanophyceae
Cyanophyceae
Cyanophyceae
Cyanophyceae
Cyanophyceae
Cyanophyceae
Cyanophyceae
Cyanophyceae
Cyanophyceae
Oscillatoriophycidae
Oscillatoriales
Synechococcophycidae Synechococcales
Triceratiaceae
Fragilariaceae
Calothrix C.Agardh ex Bornet & Flahault, 1886
Scytonematopsis crustacea (Thuret ex Bornet & Flahault) Koválik
& Komárek 1988
Microcoleaceae
Microcoleus lyngbyaceus Kützing ex Forti 1907
Symploca hydnoides Kützing ex Gomont 1892
Oscillatoriaceae
Lyngbya confervoides C.Agardh ex Gomont, 1892
Lyngbya majuscula Harvey ex Gomont 1892
Oscillatoria princeps Vaucher ex Gomont 1892
Phormidiaceae
Symplocastrum coccineum (Gomont) Anagnostidis, 2001
Leptolyngbyaceae
Leptolyngbya crosbyana (Tilden) Anagnostidis & Komárek 1988
familia incertae sedis Schizothrix calcicola Gomont 1892
familia incertae sedis Schizothrix mexicana Gomont 1892
Nom vernaculaire
AlphiaID
SLB
OBIS
22851
22942
Ver de ruban laiteuse, Lait
némertien
147322
2006b
0
Brush weed (En)
01
2006b
1959
0
1
0
0
1
p3
1
1
1
980639
646659
1938
1
660756
178513
211665
660754
177516
619680
618948
608237
240536
p1
1
637523
1013059
146624
625763
Pplt
1
1
178583
Calothricaceae
GBIF P. min P.max
1
1929
0
0
0
0
0
2006b
0
0
0
1929
1937
1929
1929
1903
0
1941
1941
1929
pél.
.
.
p3
bent.
.
.
0
0
.
.
2
2.
p1
p3
.
.
.
.
bent.
�232
Figure 113. Cartographie sur l'ensemble de la zone d'étude des occurrences de 10 des 11
taxons de crinoïdes de l'inventaire (Bathymétrie: GEBCO; 766 occurrences: OBIS, GBIF du
21/06/2021).
Figure 115. Cartographie sur l'ensemble de la zone d'étude des occurrences de 27 des 28
espèces d'étoiles de mer de l'inventaire (Bathymétrie: GEBCO; 1 251 occurrences: OBIS,
GBIF du 19/06/2021).
Figure 114. Cartographie sur l'ensemble de la zone d'étude des occurrences de 24 des 25
taxons d'ophiures de l'inventaire (Bathymétrie: GEBCO; 4 435 occurrences: OBIS, GBIF
du 23/06/2021).
Figure 116. Cartographie sur l'ensemble de la zone d'étude des occurrences 11 des 12
taxons de coraux mous (noirs) de l'inventaire (Bathymétrie: GEBCO; 2 885 occurrences:
OBIS, GBIF du 21/06/2021).
�233
Figure 117. Cartographie sur l'ensemble de la zone d'étude des occurrences de 18 des 19
taxons d'anémones de l'inventaire (Bathymétrie: GEBCO; 2 404 occurrences: OBIS, GBIF
du 19/06/2021).
Figure 118. Cartographie sur l'ensemble de la zone d'étude des occurrences de 13 des 16
taxons de méduses de l'inventaire (Bathymétrie: GEBCO; 8 092 occurrences: OBIS, GBIF
du 23/06/2021).
Figure 119. Cartographie sur l'ensemble de la zone d'étude des occurrences de 53 des
62 taxons de gorgones de l'inventaire (Bathymétrie: GEBCO; 24 527 occurrences: OBIS,
GBIF du 23/06/2021).
Figure 120. Cartographie sur l'ensemble de la zone d'étude des occurrences de 5 des 6
taxons de bryozoaires de l'inventaire (Bathymétrie: GEBCO; 123 occurrences: OBIS, GBIF
du 21/06/2021).
�234
Figure 121. Cartographie sur l'ensemble de la zone d'étude des occurrences de 12 des 15
espèces de tuniciers de l'inventaire (Bathymétrie: GEBCO; 746 occurrences: OBIS, GBIF
du 25/06/2021).
Figure 122. Cartographie des occurrences de 5 des 11 taxons de cyanophycées de
l'inventaire sur l'ensemble de la zone d'étude (Bathymétrie: GEBCO; 186 occurrences:
OBIS, GBIF du 21/06/2021).
Figure 123. Cartographie sur l'ensemble de la zone d'étude des occurrences de 16 des 26
taxons d'annélides de l'inventaire (Bathymétrie: GEBCO; 1 133 occurrences: OBIS, GBIF
du 19/06/2021).
�ISBN 978-92-5-136174-0
9
789251
ISSN 2070-7045
361740
CC0012FR/1/06.22
�